การปิดใช้งาน RPX1 ใน Arabidopsis ทำให้เกิดความต้านทานต่อ Plutella Xylostella ผ่านการสะสมของ Homotropene DMNT
Dec 12, 2023
เชิงนามธรรม
ศัตรูพืชจำพวก Lepidopteran Plutella xylostella ทำให้เกิดข้อจำกัดอย่างรุนแรงในการเพาะปลูก Brassica ที่นี่เรารายงานบทบาทใหม่ของ RPX1 (ความต้านทานต่อ P. xylostella ) ในการต้านทานศัตรูพืชใน Arabidopsis thaliana การกลายพันธุ์ของ rpx1‐1 จะขับไล่ตัวอ่อนของ P. xylostella และการกินอาหารของการกลายพันธุ์ของ rpx1‐1 จะสร้างความเสียหายอย่างรุนแรงต่อโครงสร้างเมทริกซ์ peritrophic ในช่วงกลางของตัวอ่อน ซึ่งส่งผลเสียต่อการเจริญเติบโตของตัวอ่อนและดักแด้ การต้านทานนี้เป็นผลมาจากการสะสมของสารประกอบป้องกัน ซึ่งรวมถึงโมโนเทอร์พีน (3E)−4,8‐ไดเมทิล‐1,3,7‐โนนาไตรอีน (DMNT) เนื่องจากการเพิ่มขึ้นของ PENTACYCLIC TRITERPENE SYNTHASE 1 (PEN1) ซึ่งเข้ารหัส เอนไซม์สังเคราะห์ทางชีวภาพ DMNT ที่สำคัญ การแพร่กระจายของเชื้อ P. xylostella และบาดแผลทำให้เกิดการย่อยสลายโปรตีน RPX1 ซึ่งอาจทำให้เกิดการตอบสนองต่อการระบาดของแมลงอย่างรวดเร็ว การปิดใช้งาน RPX1 และการแสดงออกที่มากเกินไปของ PEN1 ไม่เกี่ยวข้องกับการแลกเปลี่ยนเชิงลบสำหรับการเจริญเติบโตของพืช แต่มีการผลิตเมล็ดพันธุ์ที่สูงกว่าพันธุ์ป่ามากเมื่อมีการระบาดของ P. xylostella การศึกษานี้นำเสนอกลยุทธ์ใหม่สำหรับการปรับปรุงพันธุ์โมเลกุลพืชเพื่อต่อต้านเชื้อ P. xylostella

cistanche tubulosa-ปรับปรุงระบบภูมิคุ้มกัน
คำสำคัญ
ความต้านทานต่อศัตรูพืช, เมตาบอลิซึมทุติยภูมิ, การปล่อยสารระเหย
1|การแนะนำ
แมลงศัตรูพืชไม่เพียงแต่ลดผลผลิตพืชผลเท่านั้น แต่ยังส่งผลต่อคุณภาพของผลผลิตพืชผลด้วย (Johnson & Züst, 2018; Wu et al., 2016; Zhao et al., 2016) ในบรรดาผีเสื้อกลางคืนเพชร Plutella xylostella เป็นศัตรูพืชจำพวกผีเสื้อที่มีการกระจายอย่างกว้างขวางและเป็นอันตราย ซึ่งกินพืชตระกูลกะหล่ำ เช่น ดอกกะหล่ำและกะหล่ำปลี ทำให้เกิดความสูญเสียทางเศรษฐกิจอย่างมาก ในปัจจุบัน ในการจัดการทางการเกษตร การควบคุมสัตว์รบกวนโดยใช้สารเคมีทางการเกษตร (เช่น ยาฆ่าแมลง) ประสบความสำเร็จอย่างมากและมีการนำไปใช้อย่างมาก แต่แนวทางนี้กำลังกลายเป็นปัญหาเนื่องจากการปนเปื้อนในสิ่งแวดล้อมที่อาจเกิดขึ้นและภัยคุกคามต่อสุขภาพของมนุษย์ (Shakeel et al., 2017) อีกทางเลือกหนึ่งในการผลิตพืชผลคือการใช้พืชดัดแปลงพันธุกรรมที่มีความต้านทานต่อศัตรูพืชเพิ่มขึ้น ตัวอย่างเช่น ในการแสดงออกของพืชของ Bacillus thuringiensis (Jouzani et al., 2017) หรือโปรตีนที่เป็นพิษต่อแมลงชนิดอื่น (Douglas, 2018) มีความพยายามอย่างกว้างขวางในการระบุแนวทางใหม่ในการควบคุม P. xylostella ในการเกษตร; อย่างไรก็ตาม ยีนที่มีประสิทธิภาพ ยาฆ่าแมลงตามธรรมชาติ และเชื้อพันธุกรรมที่ต้านทานยังคงมีจำกัด (Zhou & Jander, 2021) ด้วยการแข่งขันทางอาวุธกับแมลงศัตรูพืชอย่างต่อเนื่อง พืชได้พัฒนาความสามารถที่หลากหลายเพื่อต่อสู้กับการโจมตีของแมลง ดังนั้น พืชจึงสังเคราะห์อาร์เรย์ของสารป้องกัน เช่น เบนโซซาซินอยด์ (Handrick et al., 2016; Varsani et al., 2019), เมทิลเบนโซเอต (Feng & Zhang, 2017) และ serotonin (Lu et al., 2018) เพื่อตอบสนองต่อ การบาดเจ็บจากศัตรูพืช กรด Jasmonic (JA) หรือที่เรียกว่า 'ฮอร์โมนของบาดแผล' มีบทบาทสำคัญในการตอบสนองต่อความเสียหายที่เกี่ยวข้องกับบาดแผลต่างๆ ที่เกิดจากการรบกวนของแมลง (Lortzing & Steppuhn, 2016) หลักฐานที่เพิ่มขึ้นชี้ให้เห็นว่า JA ทำหน้าที่เสริมฤทธิ์กันและ/หรือเป็นปฏิปักษ์กับฮอร์โมนไฟโตฮอร์โมนอื่น ๆ เช่น กรดซาลิไซลิก (SA) และเอทิลีน (Costarelli et al., 2020; Ma et al., 2019) นอกเหนือจากการป้องกันโดยตรงแล้ว พืชที่ได้รับความเสียหายจากการโจมตีของแมลงยังปล่อยสารประกอบระเหยต่างๆ ที่ดึงดูดศัตรูตามธรรมชาติของสัตว์กินพืช (Gols, 2014). ในบรรดาส่วนผสมระเหยที่ซับซ้อนเหล่านี้ สารประกอบโฮโมเทอร์พีน (3E)−4,8‐ไดเมทิล‐1,3,7‐โนนาไตรอีน (DMNT) และ (E, E) −4,8,12‐ไตรเมทิล‐1,3,7, มีรายงาน 11‐tridecatetraene (TMTT) ในพืชหลายชนิด เช่น Arabidopsis (Lee et al., 2010; Sohrabi et al., 2015), ข้าว (Li et al., 2018), ข้าวโพด (Gouinguené et al., 2005) ; Richter et al., 2016) และฝ้าย (Liu et al., 2018) การศึกษาหลายชิ้นยังชี้ให้เห็นว่า DMNT ทำหน้าที่เป็นโมเลกุลสัญญาณที่กระตุ้นการป้องกันสัตว์กินพืชในระหว่างการสื่อสารระหว่างพืชและพืช (Arimura et al., 2000; Meents et al., 2019) ตัวอย่างเช่น หลังจากที่แมลงเคี้ยวได้รับความเสียหาย มันเทศบางชนิดปล่อย DMNT ซึ่งส่งผลให้เกิดการเหนี่ยวนำให้เกิดการแพลงของตัวยับยั้งโปรตีเอสอย่างเป็นระบบในต้นมันเทศที่อยู่ใกล้เคียง และทำให้แมลงไม่สามารถย่อยได้ (Meents et al., 2019) มีการสังเกตผลลัพธ์ที่คล้ายกันสำหรับต้นชา (Jing et al., 2020) เมื่อเร็ว ๆ นี้ เราพบว่า DMNT มีบทบาทในการฆ่าตัวอ่อนของ P. xylostella โดยการรบกวนสิ่งกีดขวางเมทริกซ์ peritrophic (PM) ในกระเพาะแมลง (Chen et al., 2021)
ในพืชชั้นสูง เส้นทางการสังเคราะห์ทางชีวเคมีของ DMNT และ TMTT มีลักษณะเฉพาะที่ดีผ่านการถ่ายทอดทางพันธุกรรมแบบย้อนกลับและการวิเคราะห์ทางชีวเคมี ในข้าวโพด DMNT และ TMTT ผลิตขึ้นจากการย่อยสลายแบบออกซิเดชันของ (E)‐nerolidol และ (E, E)‐geranyl linalool โดย P450 monooxygenases สองตัวคือ CYP92C5 และ CYP92C6 (Richter et al., 2016) ในฝ้าย ยีน CYP สองตัว (GhCYP82L1 และ GhCYP82L2) มีหน้าที่ในการแปลง (E) ‐nerolidol เป็น DMNT และ (E, E) ‐geranyl linalool เป็น TMTT (Liu et al., 2018) ในรากของอาราบิดอปซิส DMNT จะถูกเร่งปฏิกิริยาจากสารตั้งต้น C30 triterpene diol, cannabidiol โดยไซโตโครม P450 monooxygenase ที่เข้ารหัสโดยยีนเฉพาะราก CYP705A1 (Sohrabi et al., 2015) การศึกษาโดยใช้ยีสต์เป็นสิ่งมีชีวิตต้นแบบได้นำเสนอหลักฐานว่า cannabidiol ผลิตจาก 2,3 ‐oxidosqualene โดย cannabidiol synthase PEN1 (Xiang et al., 2006) และการแสดงออกซึ่งสัมพันธ์กันในการทำงานร่วมกันกับ CYP705A1 (Sohrabi et al.) ., 2558). อย่างไรก็ตามการควบคุมของยีนสำคัญในการสังเคราะห์ DMNT ยังคงไม่เป็นที่ทราบแน่ชัด ยีน RPX1 ที่อธิบายไว้ในการศึกษานี้เข้ารหัสโปรตีนที่จับกับหมวก (CBP) ซึ่งเป็นสมาชิกของตระกูลยีน 4E (eIF4E) สำหรับการเริ่มต้นยูคาริโอต ในพืช ตระกูล eIF4E ประกอบด้วย eIF4E1, eIF4E2, eIF(iso)4E และ nCBP ซึ่งมีบทบาทสำคัญในการเริ่มต้นการแปล mRNA ที่ขึ้นกับแคป (Rhoads, 2009) สมาชิกในครอบครัว eIF4E เป็นแหล่งหลักของการดื้อต่อไวรัสมันฝรั่ง Y (PVY) ซึ่งเป็นเชื้อโรคที่อันตรายที่สุดที่ส่งผลต่อผลผลิตและคุณภาพของมันฝรั่ง และการใช้เทคโนโลยี CRISPR‐Cas9 ที่กำหนดเป้าหมายยีน eIF4E1 จะขยายสเปกตรัมการต้านทาน Y ของไวรัสมันฝรั่งของ Solanum tuberosum (ลูซิโอลี และคณะ 2022) ในทำนองเดียวกัน การแก้ไขโดยใช้ CRISPR/Cas9 ของไอโซฟอร์มมันสำปะหลัง eIF4E nCBP‐1 และ nCBP‐2 ช่วยลดความรุนแรงและอุบัติการณ์ของอาการที่เกิดจากโรคริ้วน้ำตาลมันสำปะหลัง (Gomez et al., 2019) นอกจากนี้ การศึกษาใน Arabidopsis แสดงให้เห็นว่าการขาด nCBP มีบทบาทในการจำกัดการเคลื่อนที่ของเซลล์สู่เซลล์ของไวรัสพืช (Keima et al., 2017) อย่างไรก็ตาม ยังไม่มีการรายงานการทำงานของ nCBPs ในการป้องกันสัตว์กินพืช ที่นี่เราใช้วิธีการบูรณาการเพื่อกำหนดลักษณะการทำงานของยีน Arabidopsis RPX1 ซึ่งมีบทบาทสำคัญในการต้านทานพืชต่อ P. xylostella ผลลัพธ์ของเราระบุว่าการล้มลงของ RPX1 ส่งผลให้เกิดยีนที่แสดงออกแตกต่างกัน (DEGs) และการสะสมของสารประกอบ หนึ่งในยีนที่ได้รับการควบคุมคือ PEN1 ซึ่งเป็นกุญแจสำคัญสำหรับการสังเคราะห์ทาง DMNT การแพร่กระจายของการกลายพันธุ์ rpx1 และการสะสม DMNT ส่งผลต่อโครงสร้าง PM ของ P. xylostella และทำให้เกิดความบกพร่องในการพัฒนาตัวอ่อนและการเสียชีวิต หลักฐานเพิ่มเติมแสดงให้เห็นว่าการเข้าทำลายของ P. xylostella และบาดแผลทำให้เกิดการย่อยสลายโปรตีน RPX1 ซึ่งอาจนำไปสู่ความต้านทานต่อแมลงของพืชในทางกลับกัน
2|วัสดุและวิธีการ
2.1|วัสดุพืชและสภาพการเจริญเติบโต
สั่งซื้อเมล็ดพันธุ์อาราบิดอปซิสจากศูนย์สต็อกสินค้าอาราบิดอปซิสของน็อตติงแฮม (NASC, http://Arabidopsis.info/) เมล็ดถูกฆ่าเชื้อบนพื้นผิว หว่านบนอาหาร Murashige และ Skoog (MS) และแบ่งชั้นที่ 5 องศาในห้องปลูกภายใต้ช่วงแสงวันสั้น (แสง 8 ชั่วโมง มืด 16 ชั่วโมง) เป็นเวลา 3 วัน จากนั้นจึงย้ายไปที่อุณหภูมิ 22 องศาในเรือนกระจกภายใต้ช่วงแสงกลางวันที่ยาวนาน (แสง 16 ชั่วโมง มืด 8 ชั่วโมง) โดยมีการบำรุงรักษาพืชตามปกติ
2.2|การทดลองและการทดสอบทางชีวภาพแบบเลือก (ความชอบ) และแบบไม่มีทางเลือก
ซื้อไข่ P. xylostella จากบริษัท Henan Jiyuan Baiyun (แมว: HJB004 พัฒนาขึ้นในปี 2009 เผยแพร่เพื่อการวิจัยทางวิทยาศาสตร์ในสภาพแวดล้อมที่มีการควบคุม) และบ่มในห้องเพาะเลี้ยงที่ตั้งอุณหภูมิ 26 องศา 16 ชั่วโมงแสง/8 ชั่วโมงมืด สำหรับการทดลองทางเลือก เราได้ย้ายต้น Arabidopsis อายุ 3 สัปดาห์ (พืชป่าและพืชกลายพันธุ์ 8 ต้น ตามลำดับ) ลงในถังทดสอบที่เชื่อมต่อกับปลายแต่ละด้านของหลอดแก้ว และขั้นตอนการทดลองที่เหลือได้ดำเนินการตามที่อธิบายไว้ก่อนหน้านี้ ( เฉิน และคณะ 2021) มีการใช้ตัวอ่อนระยะที่สี่และมีตัวอ่อน 15 ตัวรวมอยู่ในการทดลองซ้ำทุกครั้ง
สำหรับการทดลองแบบไม่มีทางเลือก พืชป่าและพืชกลายพันธุ์อายุ 3 สัปดาห์ถูกย้ายไปยังจานเพาะเชื้อแบบแยกและกึ่งเปิดซึ่งมีตัวอ่อน P. xylostella ในจำนวน 15 วินาทีเท่ากัน ขั้นตอนที่ตามมาได้ดำเนินการตามที่อธิบายไว้ก่อนหน้า (Chen et al., 2021)

ประโยชน์ของซิสตานช์สำหรับระบบภูมิคุ้มกันของผู้ชาย
2.3|การคัดกรองพันธุ์กลายพันธุ์อาราบิดอปซิสที่ต้านทานต่อเชื้อ P. xylostella
เรารวบรวมการกลายพันธุ์ของการแทรก T‐DNA ของ Arabidopsis จำนวน 179 ตัวสำหรับการคัดกรองความต้านทานต่อ P. xylostalle พันธุ์กลายถูกปลูกบนอาหาร MS และย้ายลงในกระถาง P7 (ขนาด: 7 × 7 ซม.) ภายใต้สภาวะการเจริญเติบโตตลอดทั้งวัน (22 องศา, 16 ชั่วโมงแสง/8 ชั่วโมงมืด) เพื่อหลีกเลี่ยงอิทธิพลด้านสิ่งแวดล้อมที่อาจเกิดขึ้น เราจึงย้ายและหมุนกระถางทุกวัน สำหรับการคัดกรองสายพันธุ์กลายเบื้องต้น เราได้ตั้งค่าการจำลองสองรายการโดยการปลูกพืชกลายพันธุ์แต่ละตัวในกระถางสองใบ โดยมีพืช Col‐{7}} เป็นตัวควบคุม หลังจากการเจริญเติบโตเป็นเวลา 2 สัปดาห์หลังการปลูกถ่าย สารกลายพันธุ์ทั้งหมดได้รับการทดสอบตามความชอบของตัวอ่อน P. xylostella ในดาวลำดับที่ 3 โดยการเปรียบเทียบกับ Col‐0 ตามที่อธิบายไว้ข้างต้น สายพันธุ์กลายที่แสดงความชอบของตัวอ่อนที่แตกต่างจาก Col‐0 ถือเป็นสายพันธุ์กลายที่ต้านทานต่อผู้สมัครหรือมีความละเอียดอ่อน และได้รับเลือกสำหรับการตรวจสอบการทดลองและการศึกษาเชิงฟังก์ชันเพิ่มเติม
2.4|การสร้างพลาสมิดและการเปลี่ยนแปลงของยีน
สำหรับโครงสร้าง RPX1pro: RPX1 พื้นที่การเข้ารหัสจีโนม RPX1 ที่มีลำดับอัปสตรีม 1.6 kb และลำดับดาวน์สตรีม 1 kb ได้รับการขยาย PCR จาก DNA จีโนมที่สกัดจาก Col‐ 0 ชิ้นส่วน DNA ที่ประกอบเข้าด้วยกันถูกโคลนเป็นเวกเตอร์ pGreenII‐0179 และแปลงเป็น rpx1‐1 กลายพันธุ์โดยใช้วิธีจุ่มดอกไม้ (Clough & Bent, 1998) ในการสร้าง RPX1pro: RPX1‐GFP, โปรโมเตอร์ RPX1 (1.6 kb), พื้นที่การเข้ารหัส และลำดับที่ไม่แปล 1 kb 3′ ได้รับการขยาย PCR จาก Col‐{25}} DNA จีโนม แฟรกเมนต์ GFP ถูกขยายจากพลาสมิดที่มีลำดับ GFP ชิ้นส่วน DNA เหล่านี้ถูกประกอบเข้าด้วยกันเป็นเวกเตอร์ pGreenII‐0179 โดยใช้วิธีการตัดและผูก จากนั้นจึงแปลงเป็นการกลายพันธุ์ rpx1‐1 สำหรับ 35Spro: โครงสร้าง RPX1‐FLAG ลำดับการเข้ารหัส RPX1 ถูกขยาย PCR จาก cDNA แบบย้อนกลับที่ถอดความจาก Col‐{35}} mRNA ชิ้นส่วน PCR ถูกโคลนเป็นเวกเตอร์ pCambia1300‐FLAG โดยใช้วิธีการแช่ (Clontech) และแปลงเป็น Col‐0 35Spro: PEN1, 35Spro: MRN1 (MARNERAL SYNTHASE 1) และ 35Spro: THAS (THALIANA THALIANOL SYNTHASE 1): ลำดับการเข้ารหัสของยีนเหล่านี้ได้รับการขยาย PCR จาก Col‐0 cDNA และรวมเข้ากับเวกเตอร์ pLGNL‐35S การกำหนดเป้าหมาย microRNA (amiR) เทียม PEN1 ได้รับการออกแบบตามที่อธิบายไว้ก่อนหน้านี้ (Schwab et al., 2006) ขยายโดยใช้พลาสมิด pRS300 เป็นเทมเพลตและรวมเข้ากับเวกเตอร์ pCambia1300m เวอร์ชันดัดแปลง ลำดับไพรเมอร์ทั้งหมดแสดงอยู่ในข้อมูลสนับสนุน: ตาราง S1
2.5|การตรวจสอบฤทธิ์ของกลูตาไธโอนเอสทรานสเฟอเรส (GST) และไซโตโครม P450 (CYP450) ในตัวอ่อนของ P. xylostella
หลังจากที่ตัวอ่อน P. xylostella วัยที่สองถูกเลี้ยงด้วยต้นกล้า Col‐0 หรือ rpx1‐1 เป็นเวลา 72 ชั่วโมง พวกมันจะถูกรวบรวมและบดเป็นผงละเอียดในไนโตรเจนเหลว การตรวจวิเคราะห์ดำเนินการโดยใช้ GST (Nanjing Jiancheng Biology Company, cat: A004) และชุดวิเคราะห์กิจกรรม CYP450 (Beijing Huabaitai Biology Company, cat: P450) ตามคำแนะนำของผู้ผลิต การทดสอบแต่ละครั้งมีการจำลองทางชีวภาพสามรายการ และแต่ละการจำลองประกอบด้วยตัวอ่อน P. xylostella 30 ตัว
2.6|สเมิร์ฟตรวจ
ใช้ต้นกล้า Col‐0 หรือ rpx1‐1 อายุสามสัปดาห์เพื่อเลี้ยงตัวอ่อน P. xylostella ระยะที่สอง การทดสอบดำเนินการตามที่อธิบายไว้ก่อนหน้านี้ โดยมีการดัดแปลงเล็กน้อย (Chen et al., 2021) มีการใช้การจำลองทางชีวภาพหกรายการ และแต่ละการจำลองมีตัวอ่อน P. xylostella 15 ตัว
2.7|การสังเกตโครงสร้าง PM ของตัวอ่อนด้วยกล้องจุลทรรศน์
การวิเคราะห์ทางกายวิภาคของโครงสร้าง PM ของตัวอ่อนและการวิเคราะห์ภาคตัดขวางพาราฟินของลำไส้ของตัวอ่อนได้ดำเนินการตามที่อธิบายไว้ก่อนหน้า (Chen et al., 2021)
2.8|การวิเคราะห์การแสดงออกของยีนและการจัดลำดับการถอดเสียง (RNA‐seq)
ต้นกล้า Col‐{{0}} และ rpx1‐1 ปลูกภายใต้สภาพการเจริญเติบโตที่ยาวนาน (แสง 16 ชั่วโมง, มืด 8 ชั่วโมง) ที่ 22 องศา ต้นกล้า Col‐0 และ rpx1‐1 อายุสองสัปดาห์ถูกนำมาใช้ในการหาลำดับการถอดเสียง แต่ละตัวอย่างมีการจำลองทางชีวภาพสามรายการ RNA ทั้งหมดถูกสกัดโดยใช้ RNAprep Pure Plant Kit (TIANGEN, หมายเลขแค็ตตาล็อก: DP441) cDNA สายแรกถูกสังเคราะห์โดยการถอดรหัสแบบย้อนกลับโดยใช้ระบบ One‐Step RT (Takara Bio) ตามคำแนะนำของผู้ผลิต qRT‐PCR ดำเนินการโดยใช้ไพรเมอร์เฉพาะยีนที่ระบุไว้ในข้อมูลสนับสนุน: ตาราง S1 บนอุปกรณ์ Roche Light Cycler 480 การสร้างและการจัดลำดับไลบรารี RNA‐seq ดำเนินการโดยใช้ Biomarker (ปักกิ่ง, จีน) บนแพลตฟอร์ม Illumina HiSeq ในที่สุด เราใช้ edgeR เพื่อทำการวิเคราะห์นิพจน์เชิงอนุพันธ์ (ตั้งค่าเกณฑ์ของความแตกต่างที่มีนัยสำคัญ:|log2foldchange|มากกว่าหรือเท่ากับ 1, p < 0.05) มีการจำลองแบบทางชีวภาพสามครั้งสำหรับ Col‐0 และ rpx1‐1 และยีนที่แสดงออกแตกต่างกันแสดงอยู่ในชุดข้อมูล S1
2.9|การสกัดและแก๊สโครมาโตกราฟีและการวิเคราะห์แมสสเปกโตรเมทรี (GC‐MS) ของ DMNT และ DMNT‐ 2 H ใน Arabidopsis
การสกัดและการวิเคราะห์ DMNT ดำเนินการตามที่อธิบายไว้ก่อนหน้านี้ โดยมีการดัดแปลงเล็กน้อย (Sohrabi et al., 2015) ในการทดสอบ มีการใช้ต้นกล้า Arabidopsis อายุ 3 สัปดาห์จำนวน 2 กรัมในการสกัดและการวัดค่า DMNT

cistanche tubulosa-ปรับปรุงระบบภูมิคุ้มกัน
คลิกที่นี่เพื่อดูผลิตภัณฑ์ Cistanche Enhance Immunity
【สอบถามเพิ่มเติม】 อีเมล:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2.10|การเตรียมและการกำหนดลักษณะเฉพาะของ DMNT
DMNT ถูกสังเคราะห์ตามที่อธิบายไว้ก่อนหน้านี้ โดยมีการดัดแปลงเล็กน้อย (HJ Huang & Yang, 2007) โดยสรุป ขวดก้นกลมขนาด 500 มล. ที่ติดตั้งแท่งกวนแม่เหล็กเคลือบเทฟลอนถูกชาร์จด้วยอัลลิลิกแอลกอฮอล์ 1 กรัม (6.48 มิลลิโมล) และไดคลอโรมีเทน 50 มล. สารละลายถูกกวนอย่างแรงและบำบัดด้วยแมงกานีสไดออกไซด์ที่มีฤทธิ์ 3.6 กรัม ตามด้วยการเติมสารออกซิแดนท์ 1−2 กรัมทุกๆ 2−3 ชั่วโมงจนกระทั่งปฏิกิริยาเสร็จสิ้น ต่อจากนั้นผลิตภัณฑ์ถูกใช้เพื่อสร้างสารประกอบที่ต้องการผ่านปฏิกิริยาโดยเจตนา โครงสร้างและความบริสุทธิ์ของ DMNT ได้รับการยืนยันด้วยวิธีเรโซแนนซ์แม่เหล็กนิวเคลียร์ (NMR) 1 H และวิธีสเปกโทรสโกปี 13C NMR
2.11|การรักษา DMNT ของ P. xylostella
การทดสอบดำเนินการในจานเพาะเชื้อที่หุ้มด้วยฟิล์มพลาสติกใสที่มีรูหลายรู DMNT ถูกเจือจางในน้ำมันพาราฟิน (Sigma‐Aldrich) ตามปริมาณที่ต้องการ (2.5 nmol/L−25 μmol/L) และฉีดเข้าไปในอาหารสัตว์ตามที่อธิบายไว้ในข้อความ การทดสอบทั้งหมดดำเนินการในการจำลองทางชีวภาพหกครั้ง โดยแต่ละการจำลองประกอบด้วยตัวอ่อน 15 ตัว การเจริญเติบโตของตัวอ่อนถูกบันทึกโดยเอกสารภาพถ่าย สัตว์อาหารสัตว์ที่ฉีดด้วยตัวทำละลายน้ำมันพาราฟินที่มีปริมาตรเท่ากันถูกใช้เป็นตัวควบคุม
2.12|การวัดปริมาณ JA และ SA ในต้นกล้า Arabidopsis
การตรวจวิเคราะห์ดำเนินการโดยบริษัทเทคโนโลยีทดสอบที่น่าเชื่อถือที่หนานจิง ต้นกล้า Col‐{0}} และ rpx1‐1 อายุสองสัปดาห์ถูกรบกวนด้วยตัวอ่อน P. xylostella 15 วินาที โดยมีต้นกล้าที่ไม่มีการรบกวนเป็นตัวควบคุม เราวางตัวอ่อนสองตัวไว้บนต้นไม้แต่ละต้นของกลุ่มการแพร่กระจายเพื่อให้แน่ใจว่าพืชทั้งหมดถูกรบกวน หลังจากผ่านไป 24 ชั่วโมง ตัวอย่างพืชจะถูกเก็บและแช่แข็งอย่างรวดเร็วในไนโตรเจนเหลวเพื่อการหาค่า JA และ SA ตัวอย่างถูกบดให้เป็นผงละเอียดในไนโตรเจนเหลวและสกัดด้วยสารละลายสกัดกรดไอโซโพรพานอล-น้ำ-ไฮโดรคลอริก ตามด้วยการเติมกรดดิวเทอเรตซาลิไซลิก (D‐SA) และกรดไดไฮโดร แจสโมนิก (2HJA) 8 ul (1 ไมโครกรัม) /มล.) ตามมาตรฐานภายใน จากนั้นจึงเติมไดคลอโรมีเทน และสารละลายถูกผสมให้เข้ากันบนเครื่องโรเตเตอร์เป็นเวลา 30 นาที หลังจากได้เฟสอินทรีย์ตอนล่างโดยการปั่นแยกที่ 13,{{1{20}}} รอบต่อนาทีเป็นเวลา 5 นาที มันถูกเป่าให้แห้งด้วยไนโตรเจน แล้วละลายอีกครั้งในเมทานอล (0 .1% ของกรดฟอร์มิก) จากนั้นปั่นแยกที่ 13,000 กรัมเป็นเวลา 10 นาที สุดท้าย ส่วนลอยเหนือตะกอนถูกกรองผ่านเมมเบรนกรองอินทรีย์ 0.22 ไมโครเมตร และวิเคราะห์โดยโครมาโตกราฟีของเหลวประสิทธิภาพสูงควบคู่ไปกับแมสสเปกโตรเมทรี (HPLC‐MS/MS) ขั้นตอนการสกัดทั้งหมดดำเนินการที่ 4 องศา ข้อมูลเฉพาะตัวของ JA และ SA ถูกกำหนดตามเวลาสูงสุดของสารเป้าหมายและอัตราส่วนมวลต่อประจุ (m/z) ของไอออนที่เกี่ยวข้อง การหาปริมาณของ JA และ SA ได้รับการติดตั้งโดยใช้สมการการถดถอยเชิงเส้นที่ได้รับจากเส้นโค้งมาตรฐานภายใน สำหรับการได้มาของเส้นโค้งมาตรฐานภายใน สารละลายมาตรฐาน SA และ JA ที่มีการไล่ระดับ 0.1, 0.2, 0.5, 2, 5, 20, 50 และ 200 นาโนกรัม/มิลลิลิตร ถูกเตรียมโดยใช้เมทานอล (กรดฟอร์มิก 0.1%) เป็นตัวทำละลาย และสารละลายมาตรฐานภายในที่มีความเข้มข้นสุดท้าย 20 ng/ml ถูกเติมลงในพล็อตจริง ความผิดปกติเชิงเส้นถูกลบออกจากสมการของเส้นโค้งมาตรฐาน จ.อ: ย=0.853 x + 0.00152 (ร=0.9958); SA: y=1.76 x + 0.0403 (r=0.9936)
2.13|การวิเคราะห์การขนส่ง DMNT ใน Arabidopsis
DMNT ถูกละลายใน DMSO และเติมไปยังอาหารเลี้ยงเชื้อ MS ที่ไม่มีกลูโคส พืช Arabidopsis อายุสามสัปดาห์ถูกย้ายไปยังหลอดทดลอง และรากของพวกมันถูกแช่ในอาหารเลี้ยงเชื้อ MS ด้วย DMNT หรือ DMSO (กลุ่มควบคุม) เพื่อป้องกันการปนเปื้อน หลอดทดลองจึงถูกคลุมด้วยพาราฟิล์ม 2 ชั้น และทำรูเล็กๆ ไว้ในฟิล์ม โดยให้รากพืชอยู่ในอาหาร MS เพื่อการเจริญเติบโตต่อไป หลังจากผ่านไป 24 ชั่วโมง รากของพืชที่บำบัดจะถูกเอาออก และใช้ใบของพวกมันเพื่อเลี้ยง P. xylostella จากนั้นจึงวิเคราะห์อัตราการอยู่รอดของตัวอ่อนและอัตราการดักแด้ การทดลองเดียวกันนี้ถูกทำซ้ำด้วยอาหารเลี้ยงเชื้อที่มี DMNT หรือ DMSO ที่มีป้ายกำกับ 2 H เป็นตัวควบคุม หลังจากการฟักตัวเป็นเวลา 24 ชั่วโมง ใบไม้จะถูกรวบรวมและประมวลผลสำหรับการวิเคราะห์ GC‐MS เพื่อแยกแยะความเป็นไปได้ที่ DMNT อาจระเหยจากตัวกลาง DMNT ไปยังชิ้นส่วนทางอากาศ และทำให้เกิดการปนเปื้อนในการติดตาม จึงมีการจัดตั้งกลุ่มควบคุมในลักษณะเดียวกัน แต่รากพืชถูกฝังด้วยสำลีชื้น และไม่ได้แช่อยู่ในตัวกลาง DMNT หลังจากผ่านไป 24 ชั่วโมง ชิ้นส่วนทางอากาศจะถูกเก็บเกี่ยวเพื่อการทดสอบทางชีวภาพเพิ่มเติมหรือการตรวจจับ DMNT โดยใช้ GC‐MS

ประโยชน์ของ Cistanche Tubulosa-เสริมสร้างระบบภูมิคุ้มกัน
2.14|การสกัดโปรตีนและการวิเคราะห์อิมมูโนลอตต์ของ RPX1 ใน Arabidopsis หลังจากการแพร่กระจายของ P. xylostella และการรักษาบาดแผล
เราตั้งค่าการรักษาสองประเภทสำหรับ RPX1pro ดัดแปลงพันธุกรรม: RPX1‐GFP และ 35Spro: RPX1‐FLAG ต้นกล้า Arabidopsis: การรบกวนของ P. xylostella และการกระทบกระทั่ง สำหรับการแพร่กระจายของตัวอ่อน เราปลูกต้นกล้า Arabidopsis เป็นเวลา 2 สัปดาห์และเลี้ยงพวกมันให้กับตัวอ่อนระยะที่สอง (วางตัวอ่อนอย่างน้อยหนึ่งตัวบนต้นกล้าแต่ละต้น) หลังจากผ่านไป 15−120 นาที ตัวอ่อนจะถูกกำจัดออก และต้นกล้าที่ถูกรบกวนจะถูกเลือกและเก็บเกี่ยวสำหรับ การทดลองเพิ่มเติม เพื่อเลียนแบบบาดแผล เราใช้เข็มฉีดยาขนาด 1 มล. เพื่อสร้างรูในใบ Arabidopsis แต่ละใบ หลังจากเติบโตเป็นเวลา 15−120 นาที ต้นกล้าก็จะถูกรวบรวม
เพื่อตรวจสอบว่าพืชที่ถูกรบกวนด้วย P. xylostella สามารถทำให้เกิดการย่อยสลาย RPX1 ได้หรือไม่ เราได้ทำการรบกวนต้นกล้า Col‐0 ด้วย P. xylostella เป็นเวลา 15−120 นาที และทดสอบอิทธิพลของมันต่อ RPX1‐GFP ในพืชดัดแปรพันธุกรรม ตัวอย่างทั้งหมดบดเป็นผงในไนโตรเจนเหลว จากนั้นนำ Col‐0 ที่มีการรบกวนและไม่มีการรบกวนในปริมาณเท่ากันมาผสมแยกกันกับเนื้อเยื่อ RPX1‐GFP ในปริมาณเท่ากัน และบ่มในสารละลายที่ 4 องศาเป็นเวลา 15 นาที ในที่สุด ของผสมถูกปั่นแยก และส่วนลอยเหนือตะกอนถูกนำไปวิเคราะห์อิมมูโนล็อตติง สำหรับการวิเคราะห์เวสเทิร์นบล็อต โปรตีนทั้งหมดถูกสกัดด้วยบัฟเฟอร์การสกัดโปรตีน [50 มิลลิโมล/ลิตร Tris‐HCl pH8.0, 2.5 มิลลิโมล/ลิตร EDTA pH8.0, 150 มิลลิโมล/ลิตร NaCl, 1/1000 IGPAL ( v/v), กลีเซอรอล 10% (ปริมาตร/ปริมาตร), 7% 2‐เมอร์แคปโตเอทานอล (ปริมาตร/ปริมาตร), 1 มิลลิโมล/ลิตร PMSF และ 1×ค็อกเทลตัวยับยั้งโปรตีน (โรช)] จากนั้นสารสกัดโปรตีนถูกนำมาใช้สำหรับการแยก PAGE และการวิเคราะห์อิมมูโนลอตต์ด้วยแอนติบอดีต่อ GFP (Roche, การเจือจาง: 1/1000) และ FLAG (Abcam, การเจือจาง: 1/2000) ภาพถูกถ่ายโดยใช้ระบบวิเคราะห์เคมีเรืองแสงของ Tanon 5200
3|ผลลัพธ์
3.1|การกลายพันธุ์ของ Arabidopsis rpx1 มีการปรับปรุงความต้านทานต่อ P. xylostella
เพื่อระบุยีนที่เกี่ยวข้องกับการต้านทาน P. xylostella เราได้รวบรวมสายพันธุ์กลายของ Arabidopsis 179 ตัวและเลี้ยงพวกมันในเรือนกระจกที่มีการควบคุม สองสัปดาห์หลังการปลูกถ่าย เราทำการทดสอบความชอบของตัวอ่อน P. xylostella ในวัยที่สาม เพื่อตอบสนองต่อ Col‐0 ชนิดพันธุ์กลายและพันธุ์ป่า ในการทดลองแบบคัดกรองนี้ สายพันธุ์กลาย 15 ตัวมีอิทธิพลที่แตกต่างกันต่อการตั้งค่าตัวอ่อน (ไม่แสดงข้อมูล) และหนึ่งในนั้นได้รับเลือกสำหรับการศึกษานี้และกำหนดให้เป็น rpx1‐1 (ความต้านทานต่อ P. xylostella) RPX1 เข้ารหัสสำหรับโปรตีนที่จับกับหมวกแบบใหม่ (nCBP) (Ruud et al., 1998) การกลายพันธุ์ของการแทรก T ‐ DNA คือ SALK _131503 และการแสดงออกของยีนของ RPX1 ลดลงอย่างมีนัยสำคัญเมื่อเทียบกับ Col ‐ ประเภท wild ‐ 0 (รูปที่ 1a ข้อมูลสนับสนุน: รูปที่ S1a ข้อมูลสนับสนุน: ตาราง S1) เมื่อปลูกในบริเวณใกล้เคียง ต้น rpx1‐1 มีระดับความเสียหายที่ต่ำกว่าอย่างมีนัยสำคัญจากตัวอ่อน P.xylostella เมื่อเปรียบเทียบกับพืชประเภทป่า (ข้อมูลสนับสนุน: รูปที่ S1b)

รูปที่ 1 การปิดใช้งาน RPX1 ทำให้เกิดการต้านทานต่อ Plutella xylostella ใน Arabidopsis ( a ) โครงสร้างยีนของ RPX1 (At5g1811 0) กล่องสีส้มหมายถึงเอกซอน และเส้นทึบแสดงถึงอินตรอนและขอบเขตที่ยังไม่แปล การแทรก T‐DNA ใน SALK_131503 ชื่อ rpx1‐1 อยู่ใน exon ที่สี่ (b) ตัวอ่อนของ P. xylostella เคลื่อนที่ไปทาง Col‐ ประเภทไวด์เป็นพิเศษ 0 และสายเสริม RPX1 (RPX1pro: RPX1/rpx1‐1, RPX1com) เมื่อเปรียบเทียบกับ rpx1‐ 1 (c) การเปรียบเทียบ Col‐ 0, rpx1‐1 และ RPX1com ใบไม้ที่เต็มไปด้วย P. xylostella (d) ตัวอ่อนของ P. xylostella ได้รับผลกระทบอย่างรุนแรงจาก rpx1‐1 เมื่อเปรียบเทียบกับตัวอ่อนใน Col‐{27}} และสาย RPX1com เกี่ยวกับขนาด ขนาด และสีของตัวอ่อน (e, f) ตัวอ่อน P. xylostella ที่เลี้ยงด้วย rpx1‐1 แสดงอัตราการตายที่สูงขึ้น (e) และอัตราการดักแด้ที่ต่ำกว่า (f) เมื่อเทียบกับสายพันธุ์ Col‐{34}} และ RPX1com แบบไวด์ (g, h) ตัวอ่อน P. xylostella ที่ได้รับอาหารด้วยพืช rpx1‐1 ได้เพิ่มกิจกรรมกลูตาไธโอน S‐transferase (GST, g) และ cytochrome P450 (CYP450, h) ในขณะที่ตัวอ่อนที่เลี้ยงด้วย RPX1com กิจกรรมดังกล่าวไม่แสดงความแตกต่างจากสิ่งเหล่านั้น บน Col‐0 ใน (b, e–h) ข้อมูลจะแสดงเป็นค่าเฉลี่ย ± sem ตัวอักษรที่แตกต่างกันในการรักษาแต่ละครั้งบ่งบอกถึงความแตกต่างที่มีนัยสำคัญ (การวิเคราะห์ความแปรปรวนทางเดียว n=3 สำหรับ b, g, h, n {{ 36}} สำหรับ e, f)
เพื่อตรวจสอบกลไกที่เป็นพื้นฐานของการต้านทาน rpx1‐1 ต่อการแพร่กระจายของ P. xylostella เราได้ทำการทดสอบตามความชอบและไม่มีทางเลือก ในการทดลองตามความชอบ ตัวอ่อนของ P. xylostella ถูกวางไว้ที่ศูนย์กลางของหลอดทดลองแก้วที่ระยะห่างเท่ากันจากต้นกล้า Col‐0 และ rpx1‐1 หลังจากต้นกล้า 10–6{{11} } นาที มีตัวอ่อนรวมตัวกันที่ด้าน Col‐0 มากกว่าตัวอ่อนที่อยู่ด้าน rpx1‐1 อย่างมีนัยสำคัญ (รูปที่ 1b) ในการทดลองแบบไม่มีทางเลือก เราให้อาหารต้นกล้า Col‐0 และ rpx1‐1 แยกจากกันกับตัวอ่อน P. xylostella และสังเกตว่า Col‐0 สูญเสียเนื้อเยื่อใบมากกว่าการกลายพันธุ์ rpx1‐1 (รูปที่ 1c) เพื่อยืนยันว่า RPX1 เป็นยีนเชิงสาเหตุของการต้านทานที่สังเกตได้ เราได้แนะนำโครงสร้างการเสริมของ RPX1 ในการกลายพันธุ์ของ rpx1‐1 เส้นเสริม RPX1 เหล่านี้ (RPX1pro: RPX1 / rpx1‐1, RPX1com) มีความอ่อนไหวต่อการแพร่กระจายของ P. xylostella ตามที่กำหนดโดยการทดสอบการตั้งค่าและไม่มีทางเลือก (รูปที่ 1b, c) ซึ่งแนะนำว่า RPX1 เกี่ยวข้องกับการต้านทานของ Arabidopsis พี.ไซโลสเตลลา.
3.2|การเจริญเติบโตของตัวอ่อน P. xylostella ได้รับผลกระทบทางลบจากการกลายพันธุ์ rpx1‐1
เพื่อตรวจสอบการตอบสนองทางสรีรวิทยาของ P. xylostella ต่อการให้อาหารด้วยสายพันธุ์กลาย rpx1‐1 เราได้ตรวจสอบการพัฒนาของตัวอ่อนหลังจากให้อาหารด้วยพืชอายุ 3 สัปดาห์ของสายพันธุ์ Col‐0, rpx1‐1 และ RPX1com ตัวอ่อนที่เลี้ยงด้วยพืช rpx1‐1 มีการพัฒนาที่ลดลงอย่างรุนแรงในแง่ของขนาดของร่างกาย สีลำตัวของตัวอ่อนยังแตกต่างจากตัวอ่อนที่เลี้ยงด้วยพืช Col‐{9}} อย่างไรก็ตาม เราไม่ได้สังเกตการเปลี่ยนแปลงดังกล่าวในตัวอ่อนที่เลี้ยงด้วยต้นกล้า RPX1com (รูปที่ 1d) การวิเคราะห์ฟีโนไทป์เพิ่มเติมแสดงให้เห็นว่าตัวอ่อน P. xylostella ที่ได้รับอาหารด้วย rpx1‐1 มีอัตราการตายที่สูงขึ้นอย่างเห็นได้ชัดและอัตราการเกิดดักแด้ต่ำกว่าตัวอ่อนที่เลี้ยงด้วย Col‐0 หรือ RPX1com (รูปที่ 1e,f) นอกจากนี้ ตัวอ่อนที่เลี้ยงด้วย rpx1‐1 มีฤทธิ์ของเอนไซม์ที่สูงกว่าของ GST และ CYP450 ซึ่งเป็นตัวชี้วัดทางชีวภาพสำหรับความเสียหายของอวัยวะหรือเนื้อเยื่อ (Cheng et al., 2018; Mikstacki et al., 2015) มากกว่าตัวอ่อน Col‐0 และ RPX1com (รูปที่ 1g,h) แสดงให้เห็นว่าเนื้อเยื่อตัวอ่อนอาจได้รับบาดเจ็บจากการให้อาหารของ rpx1‐1
3.3|ลำไส้ของตัวอ่อน P. xylostella ได้รับความเสียหายหลังจากให้อาหารด้วยพืช rpx1‐1
เราสังเกตว่าตัวอ่อนที่เลี้ยงด้วย rpx1‐1‐1‐กินเนื้อเยื่อพืชน้อยกว่าและผลิตอุจจาระน้อยกว่าตัวอ่อนที่เลี้ยงด้วย Col‐type แบบป่า0; ดังนั้นเราจึงตั้งสมมติฐานว่าการย่อยของตัวอ่อนที่เลี้ยงด้วย rpx1‐1 อาจได้รับผลกระทบ เพื่อตรวจสอบว่าการรั่วไหลเกิดขึ้นในลำไส้ของตัวอ่อนที่เลี้ยงด้วย rpx1‐1 หรือไม่ เราได้ดำเนินการ 'การทดสอบ Smurf' ตัวอ่อนที่เลี้ยงด้วยสายพันธุ์ Col‐0 และ RPX1com แบบไวด์จะถ่ายอุจจาระของสีย้อม และไม่มีสีย้อมหลงเหลืออยู่ในร่างกายของตัวอ่อนทางสายตา ในขณะที่ตัวอ่อนที่เลี้ยงด้วย rpx1‐1 ยังคงมีสีย้อมจำนวนมากอยู่ใน กระเพาะและเนื้อเยื่อรอบๆ และตัวอ่อนเปลี่ยนเป็นสีน้ำเงิน (รูปที่ 2a) การวิเคราะห์เชิงปริมาณของตัวอ่อนสีน้ำเงิน ('สเมิร์ฟ') และตัวอ่อนปกติ ('ไม่มีสเมิร์ฟ') แสดงให้เห็นว่าการให้อาหารพืช rpx1‐1 ส่งผลให้บุคคลมากกว่าสามเท่าแสดงอาการ 'สเมิร์ฟ' เมื่อเทียบกับตัวอ่อนที่เลี้ยงด้วย Col‐ ประเภทป่า 14}} หรือ RPX1com (รูปที่ 2b) ผลลัพธ์เหล่านี้ชี้ให้เห็นว่าการให้อาหาร rpx1‐1 สามารถทำให้เกิดรอยโรคและการซึมผ่านที่สูงขึ้นในช่วงกลางของตัวอ่อน
3.4|เมทริกซ์ Peritrophic ของ P. xylostella ได้รับความเสียหายจากการป้อนต้นกล้า rpx1‐1
เรายังผ่าและแยกเมทริกซ์เพอริโทรฟิก (PM) จากตัวอ่อนที่เลี้ยงด้วยต้นกล้า Col‐{0}}, rpx1‐1 และ RPX1com สำหรับการวิเคราะห์โครงสร้างภายใต้กล้องจุลทรรศน์สเตอริโอ เมื่อเปรียบเทียบกับ PM ที่ไม่บุบสลายและเป็นลูกดิ่งของตัวอ่อนที่เลี้ยงด้วย Col‐0 และ RPX1com ตัวอ่อนที่เลี้ยงด้วย rpx1‐1 มีลักษณะความเสียหายและมีลักษณะบาง หลวม และไม่ต่อเนื่อง (รูปที่ 2c–f) เพื่อยืนยันลักษณะความเสียหายของ PM เพิ่มเติม เราได้รับส่วนขวางของตัวอย่างตัวอ่อน ผลการย้อมสี Hematoxylin‐eosin (HE) เผยให้เห็นว่า PM ของตัวอ่อนที่เลี้ยงด้วย Col‐0 มีความหนาและไม่บุบสลาย และมีช่องว่าง ectoperitrophic (ES) ระหว่าง PM และเซลล์ผิวหนังชั้นกลางของลำไส้ (รูปที่ 2g) ในทางตรงกันข้าม PM ในช่วงกลางของตัวอ่อนที่เลี้ยงด้วย rpx1‐1 นั้นถูกรบกวนอย่างรุนแรง และเนื้อหาในลำไส้อยู่ใกล้กับผนังลำไส้ (no es, รูปที่ 2 ชม.) เมื่อเลี้ยงตัวอ่อนด้วยต้นกล้า RPX1com PM และ ES ของพวกมันจะไม่เปลี่ยนแปลงอย่างมีนัยสำคัญ (รูปที่ 2i, j) ผลลัพธ์เหล่านี้ยืนยันว่าการล้มลงของ RPX1 ส่งผลกระทบต่อ PM ของตัวอ่อน P. xylostella
3.5|การสะสมของเนื้อหา DMNT ใน rpx1‐1 ทำให้เกิดการต้านทานต่อตัวอ่อน P. xylostella
เพื่อตรวจสอบว่าการล้มลงของ RPX1 เปลี่ยนรูปร่างของสารอาราบิดอปซิสและนำไปสู่การดื้อต่อตัวอ่อนของ P. xylostella หรือไม่ เราเปรียบเทียบสารประกอบอินทรีย์ระเหยง่าย (VOCs) ที่ปล่อยออกมาจากพืช rpx1‐ 1 และพืช Col‐{3}} ชนิดป่า VOC สี่ชนิด (Hexanol, 3‐ethyl‐5methyl, Octance,2,6‐dimethyl, Nonane,2,6‐dimethyl และ DMNT) ได้รับการสะสมที่แตกต่างกันระหว่าง rpx1‐1 และ Col‐0 (รูปที่ 3a) เพื่อวิเคราะห์กลไกระดับโมเลกุลของ rpx1‐1 ในการต้านทาน P. xylostella เพิ่มเติม เราทำการวิเคราะห์ RNA seq เมื่อเปรียบเทียบกับ Col‐0 การกลายพันธุ์ rpx1‐1 มียีนที่แสดงออกแตกต่างกัน 211 ยีน (DEGs) (ข้อมูลสนับสนุน: ชุดข้อมูล S1) การวิเคราะห์การเพิ่มคุณค่าของ KEGG ระบุว่า DEG เหล่านี้เป็นของวิถีเมตาบอลิซึมที่แตกต่างกันมากกว่า 20 เส้นทาง รวมถึงการสังเคราะห์เซสควิเทอร์พีนอยด์และไตรเทอร์พีนอยด์ เมแทบอลิซึมของกรดอัลฟ่าไลโนเลนิก และวิถีเมแทบอลิซึมของไทโรซีน (รูปที่ 3b ข้อมูลสนับสนุน: ตาราง S2) sesquiterpenoids และ triterpenoids ซึ่งประกอบด้วยสาม DEGs: At4g15340, At5g42600 และ At5g48010 (รูปที่ 3b ข้อมูลสนับสนุน: รูปที่ S2a – c) มีรายงานว่า At4g15340 เข้ารหัสสำหรับ PEN1 ซึ่งเป็น oxidosqualene cyclase ที่แปลง 2,3 oxidosqualene เป็น arabidiol และนำไปสู่การสังเคราะห์ DMNT ที่ออกฤทธิ์ทางชีวภาพผ่าน CYP705A1 (Field & Osbourn, 2008; Sohrabi et al., 2015) At5g42600 เข้ารหัสแร่สังเคราะห์ 1 (MRN1) ซึ่งเป็นองค์ประกอบสำคัญในการสังเคราะห์แร่ธาตุ At5g48010 เข้ารหัสสำหรับ thalianol synthase (THAS) ซึ่งเป็นเอนไซม์ที่เกี่ยวข้องกับการสังเคราะห์ทางชีวภาพของ thalianol มีรายงานว่า Marneral และ thalianol มีส่วนร่วมในการบำรุงรักษาการพัฒนาพืช (Field & Osbourn, 2008; Go et al., 2012) (ข้อมูลสนับสนุน: รูปที่ S3) เราศึกษาบทบาทที่เป็นไปได้ของ MRN1 และ THAS ในการต้านทานแมลงโดยการตรวจสอบความชอบ การตาย และอัตราการดักแด้ของ P. xylostella โดยการให้อาหารพวกมันด้วยต้นกล้า Arabidopsis ดัดแปรพันธุกรรมที่แสดงออกมากเกินไป MRN1 (35Spro: MRN1) และ THAS (35Spro: THAS) (สนับสนุน ข้อมูล: รูปที่ S4a,b) ไม่พบความแตกต่างที่มีนัยสำคัญระหว่างยีนทั้งสองและ Col‐0 ชนิด wild (ข้อมูลสนับสนุน: รูปที่ S4c–n) ซึ่งบ่งชี้ว่าความต้านทานต่อแมลงของ rpx1‐1 นั้นไม่น่าจะขึ้นอยู่กับยีนทั้งสองนี้

รูปที่ 2 การปิดใช้งาน RPX1 สร้างความเสียหายให้กับโครงสร้างเมทริกซ์เพอริโทรฟิก (PM) ในลำไส้ของตัวอ่อน (a) ภาพตัวแทนของตัวอ่อนที่เลี้ยงด้วยเส้น Col‐0, rpx1‐1 และ RPX1com แสดงการคงสีย้อม ซึ่งเห็นได้จากลักษณะสีน้ำเงินของพวกมัน เช่น ตัวการ์ตูน Smurf (b) ปริมาณของผลลัพธ์แสดงไว้ใน (a) ข้อมูลถูกนำเสนอเป็นค่าเฉลี่ย ± sem; ตัวอักษรที่แตกต่างกันบ่งบอกถึงความแตกต่างที่มีนัยสำคัญ (การวิเคราะห์ความแปรปรวนทางเดียว n=6) (c – f) โครงสร้างพิเศษ PM ของตัวอ่อนที่เลี้ยงด้วย Col‐ 0 (c), rpx1‐1 (d) และบรรทัด RPX1com (e, f) โปรดทราบว่า PM ของตัวอ่อนที่เลี้ยงด้วย Col‐0 และ RPX1com นั้นอวบอ้วนและไม่บุบสลาย แต่ PM ของตัวอ่อนที่เลี้ยงด้วย rpx1‐1 นั้นบาง บอบบาง และไม่ต่อเนื่องในบางภูมิภาค ( g – j ) ส่วนตามขวางและการย้อมสี hematoxylin ‐ eosin แสดงความเสียหายของ PM จากตัวอ่อนที่เลี้ยงด้วย Col‐ 0 ( g ), rpx1 ‐ 1 ( h ) หรือเส้น RPX1com ( i, j ) [สามารถดูรูปสีได้ที่ wileyonlinelibrary.com]
การเพิ่มประสิทธิภาพของการสังเคราะห์เทอร์พีนอยด์ในการวิเคราะห์ KEGG (รูปที่ 3b) และการสะสมที่แตกต่างกันของ DMNT ที่ตรวจพบใน rpx1‐1 (รูปที่ 3a) ชี้ให้เห็นว่า DMNT อาจเป็นหนึ่งในสารประกอบที่เกี่ยวข้องกับการต้านทานพืชต่อ P. xylostella คล้ายกับรายงานก่อนหน้านี้ที่แทบจะไม่ตรวจพบ DMNT โดยการวิเคราะห์ GC‐MS ใน Col‐0 (Liu et al., 2018; Sohrabi et al., 2015) เราสามารถตรวจจับจำนวน DMNT จำนวนเล็กน้อยใน Col‐0 ที่ไม่มีการรบกวน (รูปที่ 4a,b) ในทางตรงกันข้าม ระดับ DMNT ได้รับการเสริมสมรรถนะอย่างมาก (~8 ng/g) ใน rpx1‐1 และสาย RPX1com แสดงระดับ DMNT ที่ต่ำมาก ซึ่งคล้ายกับในพืช Col‐0 (รูปที่ 4) นอกจากนี้ เมื่อการระบาดของ P. xylostella ระดับ DMNT เพิ่มขึ้น (~20 ng/g) ใน rpx1‐1 ซึ่งสูงกว่านั้นในบรรทัด Col‐0 และ RPX1com (รูปที่ 4) . เราสังเคราะห์ DMNT ในหลอดทดลอง โดยใช้วิธีการดัดแปลง (Chen et al., 2021) สอดคล้องกับข้อสังเกตก่อนหน้านี้ (Chen et al., 2021) DMNT ระงับการเจริญเติบโตของ P. xylostella ตามที่เห็นได้จากความชอบ (2.5 μmol/L) และประสิทธิภาพที่ไม่มีทางเลือก (0.25–25 μmol/L) ( ข้อมูลประกอบ: รูปที่ S5a,b) ยิ่งไปกว่านั้น ผลการย้อมสี HE เผยให้เห็นว่า PM ของตัวอ่อนควบคุมมีความหนาและไม่บุบสลาย (ข้อมูลสนับสนุน: รูปที่ S5c) ในขณะที่ PM ของตัวอ่อนที่บำบัดด้วย DMNT 2.5 μmol/L เป็นเวลา 48 ชั่วโมงนั้นบางและไม่ต่อเนื่องในบางภูมิภาค (ข้อมูลสนับสนุน: รูปที่ S5d) เมื่อนำมารวมกัน การค้นพบของเราชี้ให้เห็นว่าการกลายพันธุ์ rpx1-1 ทำให้เกิดการสะสม DMNT ซึ่งมีส่วนช่วยในการฆ่าตัวอ่อนของ P. xylostella ใน Arabidopsis JA และ SA เป็นสารทุติยภูมิของพืชที่เกี่ยวข้องอย่างใกล้ชิดกับความเครียดจากสิ่งมีชีวิต เพื่อตรวจสอบว่าสารเหล่านี้มีส่วนช่วยในการต้านทานแมลงของ rpx1‐1 หรือไม่ เราได้ตรวจสอบระดับ JA และ SA ของ Col‐0 และ rpx1‐1 ก่อนและหลังการระบาดของ P. xylostella ภายใต้สภาวะที่ไม่ได้รับการรักษา ไม่มีความแตกต่างอย่างมีนัยสำคัญในระดับ JA และ SA ระหว่างต้น rpx1‐1 และ Col‐0 (ข้อมูลสนับสนุน: รูปที่ S6) และระดับของฮอร์โมนทั้งสองเพิ่มขึ้นอย่างมีนัยสำคัญที่ 24 ชั่วโมงหลังจากการรบกวนด้วย P. xylostella . โดยเฉพาะอย่างยิ่ง หลังจากการรบกวน เนื้อหา SA ลดลงอย่างมีนัยสำคัญใน rpx1‐1 เมื่อเทียบกับ Col‐0 ในขณะที่เนื้อหา JA ใน rpx1‐1 สูงกว่าใน Col‐0 มาก (ข้อมูลสนับสนุน: รูปที่ S6)

รูปที่ 3 การเปรียบเทียบสารประกอบระเหยและการแสดงออกของยีนที่ได้รับการเสริมสมรรถนะอย่างแตกต่างระหว่าง Col‐0 และ rpx1‐1 (a) สารประกอบระเหยที่ได้รับการเสริมสมรรถนะที่แตกต่างกันใน Col‐0 และ rpx1‐1 ถูกตรวจพบโดยวิธี gas chromatography‐mass spectrometry (GC‐MS) ข้อมูลถูกนำเสนอเป็นค่าเฉลี่ย ± sem; เครื่องหมายดอกจันบ่งบอกถึงความแตกต่างที่มีนัยสำคัญ (*p < 0.05, **p < 0.01, การทดสอบ t แบบ unpaired แบบสองด้าน) (b) การวิเคราะห์การถอดเสียงของ Col‐0 และ rpx1‐1 การวิเคราะห์ KEGG ของการเสริมสมรรถนะวิถีจากยีนที่แสดงออกแตกต่างกันระหว่าง Col‐0 และ rpx1‐1 กลายพันธุ์ วิถีทางหนึ่งที่ได้รับการเสริมสมรรถนะ (ลูกศรสีแดง) เกี่ยวข้องกับการสังเคราะห์ทางชีวภาพของเซสควิเทอร์พีนอยด์และไตรเทอร์พีนอยด์ และประกอบด้วยยีนสามยีน ดังแสดงในรูป [สามารถดูรูปสีได้ที่ wileyonlinelibrary.com]
3.6|RPX1 ควบคุมการสะสม DMNT โดยขึ้นอยู่กับ PEN1
ในการตรวจสอบการมีส่วนร่วมของ PEN1 ในการสะสม DMNT ที่ควบคุมด้วย rpx1‐1 เราได้สร้างโครงสร้างที่มี miRNA เทียม (PEN1amiR) และแปลงเป็นการกลายพันธุ์ของ rpx1‐1 นอกจากนี้เรายังสร้างโครงสร้างการแสดงออกมากเกินไปของ PEN1 ซึ่งถูกแปลงเป็น Col‐0 (35pro: PEN1/Col‐{{10}}) การวิเคราะห์การแสดงออกของยีนแสดงให้เห็นว่า PEN1 ถูกล้มลง (4‐7 เท่า) ใน PEN1amiR/rpx1‐1 เมื่อเทียบกับ rpx1‐1 และมีการแสดงออกมากเกินไป (~ 2.5 เท่า) ใน 35Spro: PEN1 เมื่อเทียบกับ Col‐0 (รูปที่ 5ก) ในสายพันธุ์ดัดแปรพันธุกรรมเหล่านี้ การแสดงออกของ RPX1 ไม่ได้รับอิทธิพลจากการล้มลงของ PEN1 หรือการแสดงออกมากเกินไป (รูปที่ 5b) เมื่อถูกรบกวนด้วย P. xylostella เป็นเวลา 6-24 ชั่วโมง การแสดงออกของ PEN1 ได้รับการควบคุมอย่างมีนัยสำคัญใน Col‐ 0 และ rpx1‐1 และการแสดงออกของ PEN1 ที่สูงขึ้นมากนั้นทำได้ใน rpx1‐1 หลังจากผ่านไป 24 ชั่วโมงของการแพร่กระจาย (รูปที่ 5c) . ต่อไป เราวัดเนื้อหา DMNT ใน Col‐0, rpx1‐1, PEN1amiR/rpx1‐1 และ 35Spro: PEN1/Col‐{{50}} หากไม่มีการแพร่กระจายของ P. xylostella rpx1‐1 จะสร้าง DMNT ในระดับที่สูงกว่า Col‐0 (รูปที่ 5d,e,f,k,l) และเมื่อ PEN1 ถูกทำให้ล้มลงโดย microRNA เทียมใน rpx1‐1 (PEN1amiR /rpx1‐1) ระดับ DMNT ถูกลดระดับลง ซึ่งแสดงระดับที่ต่ำกว่าใน rpx1‐1 มาก (รูปที่ 5d,g,h,m,n) จากการแพร่กระจายของตัวอ่อน ระดับ DMNT ในต้นกล้า Col‐0 และ rpx1‐1 ได้รับการควบคุมอย่างมีนัยสำคัญ แต่ในต้นกล้า PEN1amiR/rpx1‐1 นั้น ไม่สามารถกระตุ้นระดับ DMNT ได้และต่ำกว่าระดับนั้นใน rpx1‐1 มาก (รูปที่ 5d, g, h, m, n) แนะนำว่า PEN1 อาจมีบทบาทสำคัญในการสังเคราะห์ DMNT ที่ควบคุมโดย RPX1 ดังแสดงในข้อมูลสนับสนุน: รูปที่ S3 เพื่อให้สอดคล้องกับสิ่งนี้ DMNT ได้รับการสะสมอย่างสูงในต้นกล้า 35Spro: PEN1/Col‐0 (รูปที่ 5d, i,j,o,p)

รูปที่ 4 การสูญเสีย RPX1 เพิ่มการสะสมไดเมทิล‐1,3,7‐โนนาไตรอีน (DMNT) (a) การวิเคราะห์แก๊สโครมาโตกราฟี ‐ แมสสเปกโตรเมทรี (GC‐MS) ของ DMNT ในบรรทัด Col‐ 0, rpx1‐1 และ RPX1com (RPX1pro: RPX1/rpx1‐1) มาตรฐาน DMNT จะแสดงอยู่ที่ด้านล่าง (b) โครมาโตกราฟีไอออนรวม (TIC) ของ DMNT ที่บันทึกจาก Col‐ 0, rpx1‐1 และ RPX1com (c) เนื้อหา DMNT เพิ่มขึ้นในการกลายพันธุ์ rpx1‐ 1 แต่กลับไปสู่ระดับชนิดป่าในพืชดัดแปรพันธุกรรม RPX1com ข้อมูลถูกนำเสนอเป็นค่าเฉลี่ย ± sem; ตัวอักษรที่แตกต่างกันบ่งบอกถึงความแตกต่างที่มีนัยสำคัญ (การวิเคราะห์ความแปรปรวนทางเดียว n=3) [สามารถดูรูปสีได้ที่ wileyonlinelibrary.com]
3.7|PEN1 มีส่วนช่วยในการฆ่า P. xylostella ใน rpx1‐1
จากการสังเกตว่าการล้มลงของ PEN1 สามารถลดการสะสม DMNT ที่เกิดจากการปิดใช้งาน RPX1 (รูปที่ 5) เราดำเนินการตรวจทางชีวภาพในการล้มลงของ PEN1 และการแสดงออกที่มากเกินไปของ Arabidopsis ดัดแปลงพันธุกรรมเพื่อแสดงให้เห็นถึงบทบาททางชีวภาพของมัน เราพบว่าตัวอ่อนของ P. xylostella ไม่แสดงความพึงพอใจต่อพืช amiR‐PEN1/rpx1‐1 เมื่อเปรียบเทียบกับ Col‐0 (ข้อมูลสนับสนุน: รูปที่ S7) ในขณะเดียวกัน ตัวอ่อน P. xylostella ที่เลี้ยงด้วย PEN1‐amiR/rpx1‐1 มีอัตราการตายที่ต่ำกว่าและมีอัตราการเกิดดักแด้สูงกว่า rpx1‐1 อย่างมีนัยสำคัญ ในขณะที่ตัวอ่อนที่เลี้ยงด้วย 35Spro: PEN1/Col‐0 มีอัตราการตายสูงกว่าและดักแด้น้อยกว่า อัตราที่มากกว่าที่เลี้ยงด้วย Col‐0 (รูปที่ 6a,b) สอดคล้องกับผลลัพธ์เหล่านี้ 'การทดสอบ Smurf' เพิ่มเติมและการทดลองการผ่าตัดแสดงให้เห็นว่า PEN1 ‐ amiR / rpx1 ‐ 1 มีลำไส้และ PM ปกติและไม่บุบสลายเมื่อเปรียบเทียบกับตัวอ่อนที่เลี้ยงด้วย rpx1 ‐ 1 (รูปที่ 6c, d, g, h) และการแสดงออกของ PEN1 ที่มากเกินไปทำให้เกิดความเสียหายอย่างรุนแรงต่อกระเพาะและ PM ของตัวอ่อน P. xylostella (รูปที่ 6c, d, i, j) ผลลัพธ์เหล่านี้ชี้ให้เห็นว่าการล้มลงของ PEN1 สามารถระงับผลกระทบด้านลบต่อการเติบโตของตัวอ่อนที่เกิดจากการหยุดการทำงานของ RPX1 ได้ ดังนั้นจึงมีบทบาทสำคัญในการชักนำ rpx1-1-อิทธิพลที่เป็นพิษต่อตัวอ่อนของ P. xylostella
3.8|DMNT ขนส่งจากรากไปยังส่วนทางอากาศของ Arabidopsis
PEN1 ได้รับการรายงานว่าแสดงออกเป็นหลักในรากของ Arabidopsis (AC Huang et al., 2019; Sohrabi et al., 2015) (ข้อมูลสนับสนุน: รูปที่ S8a) ซึ่งแตกต่างจากผลลัพธ์ที่ส่วนทางอากาศของ rpx1‐1 แสดง ความเป็นพิษต่อ P. xylostella ในลักษณะที่ขึ้นกับ PEN1 (รูปที่ 6) ดังนั้นเราจึงกำหนดสมมติฐานทางเลือก: พืชสังเคราะห์ DMNT เป็นหลักในรากและส่งไปยังส่วนทางอากาศ ซึ่งส่งเสริมความต้านทานต่อแมลง เพื่อทดสอบสมมติฐานนี้ เราทำการทดสอบการขนส่ง DMNT สองครั้ง ในการทดสอบครั้งแรก (รูปที่ 7a) เราได้ฟักรากของต้นกล้า Arabidopsis อายุ 3‐ 3- สัปดาห์ในอาหารเลี้ยงพืชที่เป็นของเหลวซึ่งมี DMNT 2.5 μmol/L โดยใช้ DMSO เป็นตัวควบคุม หลังจากการเพาะเลี้ยงเป็นเวลา 24 ชั่วโมง เราก็ตัดใบอาราบิดอปซิสออกและมอบให้กับตัวอ่อนของ P. xylostella เมื่อเปรียบเทียบกับการควบคุม DMSO ใบไม้จากพืชที่ได้รับ DMNT ทำให้เกิดการตายของตัวอ่อนที่สูงขึ้นอย่างมีนัยสำคัญและอัตราการเกิดดักแด้ต่ำกว่าการควบคุม (รูปที่ 7b, c) ในการทดลองครั้งที่สองโดยมีเป้าหมายเพื่อให้ได้รับการตรวจสอบความถูกต้องของการขนส่ง DMNT อย่างอิสระเพิ่มเติม เราติดป้ายกำกับ DMNT ด้วย 2 H และเพิ่ม DMNT‐ 2 H ลงในอาหารเลี้ยงเชื้อสำหรับการเจริญเติบโตของพืชที่เป็นของเหลว หลังจากการฟักตัวเป็นเวลา 24 ชั่วโมง DMNT‐ 2 H ได้รับการเสริมสมรรถนะอย่างมากในใบ (รูปที่ 7d–i) เพื่อแยกแยะความเป็นไปได้ที่ DMNT อาจระเหยจากตัวกลางการเจริญเติบโตของของเหลวสู่อากาศและปนเปื้อนส่วนทางอากาศของพืช เราได้ตั้งค่าการควบคุมแบบขนาน ซึ่งดำเนินการในลักษณะเดียวกับในรูปที่ 7a ยกเว้นว่ารากของ Arabidopsis ไม่ได้ถูกแช่อยู่ในของเหลว สื่อการเจริญเติบโต ผลลัพธ์แสดงให้เห็นว่าตรวจไม่พบ DMNT‐ 2 H ในส่วนทางอากาศของพืช (ข้อมูลสนับสนุน: รูปที่ S8b,c) ดังนั้นเราจึงเสนอว่า DMNT ย้ายจากรากซึ่งเป็นแหล่งผลิต ไปยังใบอาราบิดอปซิส ซึ่งเป็นสาเหตุให้ศัตรูพืชตาย

รูปที่ 5 PEN1 มีบทบาทสำคัญในการสะสมไดเมทิล ‐ 1, 3, 7 โนนาไตรอีน (DMNT) ใน rpx1 ‐ 1 (a) การวิเคราะห์การแสดงออกของ PEN1 ใน Col‐0, rpx1‐1, PEN1 น็อคดาวน์ในพื้นหลัง rpx1‐1 (PEN1‐amiR/rpx1‐1) และ PEN1 การแสดงออกมากเกินไป (35Spro:PEN1/Col‐{{2{{ 22}}}}) บรรทัด (b) การแสดงออก RPX1 ใน Col‐{{30}}, rpx1‐1, PEN1‐amiR/rpx1‐1 และ 35Spro:PEN1/Col‐0 ( c ) การแสดงออกของ PEN1 เกิดจากการรบกวนของ Plutella xylostella ใน Col 0 และ rpx1‐1 (d) การเปรียบเทียบการสะสม DMNT ระหว่าง Col‐0, rpx1‐1, PEN1‐amiR/rpx1‐1 และ 35Spro:PEN1/Col‐0 (e–j) การวิเคราะห์แก๊สโครมาโตกราฟี‐แมสสเปกโตรเมทรี (GC‐MS) ของสารระเหยที่ปล่อยออกมาจาก Col‐0 (e), rpx1‐1 (f), PEN1‐amiR/rpx1‐1 (g, h) และ 35Spro: เส้น PEN1/ Col‐0 (i, j) (k–p) TIC ของ DMNT ที่บันทึกจาก Col‐0 (k), rpx1‐1 (l), PEN1‐amiR/rpx1‐1 (m, n) และ 35Spro: PEN1/Col‐0 (o, p) เส้น ซึ่งสอดคล้องกับข้อมูลใน (e–j) ใน (a – d) ข้อมูลจะถูกนำเสนอเป็นค่าเฉลี่ย ± sem; ตัวอักษรที่แตกต่างกันบ่งบอกถึงความแตกต่างที่มีนัยสำคัญ (การวิเคราะห์ความแปรปรวนทางเดียว n=3) [สามารถดูรูปสีได้ที่ wileyonlinelibrary.com]
3.9|RPX1 ถูกสลายโดยการติดเชื้อ P. xylostella และการรักษาบาดแผล
เราแสดงให้เห็นว่าการแสดงออกของ PEN1 ได้รับการควบคุมใน rpx1‐1 และต้นกล้า Arabidopsis ที่เต็มไปด้วยตัวอ่อน P. xylostella (รูปที่ 5a, c) ทำให้มีความเป็นไปได้ที่ RPX1 อาจตอบสนองต่อการแพร่กระจายของตัวอ่อนด้วย เพื่อตรวจสอบความถูกต้องของการทำนายนี้ เราได้ตรวจสอบการตอบสนองที่เป็นไปได้ของ RPX1 ต่อการแพร่กระจายของ P. xylostella การวิเคราะห์การแสดงออกของยีนแสดงให้เห็นว่า RPX1 แสดงออกในเนื้อเยื่อต่าง ๆ (ข้อมูลสนับสนุน: รูปที่ S9a) แต่ไม่มีการตอบสนองอย่างมีนัยสำคัญต่อการแพร่กระจายของตัวอ่อนเป็นเวลา 6–24 ชั่วโมง (ข้อมูลสนับสนุน: รูปที่ S9b) ดังนั้นเราจึงตรวจสอบระดับโปรตีน RPX1 ใน RPX1pro: พืชดัดแปรพันธุกรรม RPX1 ‐ GFP โดยดำเนินการอิมมูโนล็อตติง ผลการศึกษาพบว่าหากไม่มีการแพร่กระจายของตัวอ่อน RPX1‐GFP จะคงตัวในช่วง 0‐12{{40}} นาที; ในทางตรงกันข้าม หลังจากตัวอ่อนเข้าไปรบกวนเป็นเวลา 15 นาที RPX1‐GFP ก็เริ่มสลายตัว หลังจาก 120 นาที โปรตีน RPX1‐GFP จะลดลงอย่างต่อเนื่องจนถึงประมาณ 6% ของจุดเริ่มต้น (รูปที่ 8a ข้อมูลสนับสนุน: รูปที่ S10a) จากการควบคุม ในต้นกล้า Arabidopsis ที่มียีน GFP นั้น GFP ค่อนข้างเสถียรหลังจากการรบกวนของตัวอ่อน (รูปที่ 8b) เพื่อแยกแยะอิทธิพลที่เป็นไปได้ของแท็ก GFP ต่อความเสถียรของ RPX1 เราได้สร้างพืช RPX1 ดัดแปลงพันธุกรรมด้วยแท็ก FLAG (35Spro: RPX1 ‐FLAG) เพื่อทำการทดลองการรบกวนของตัวอ่อน ซึ่งแสดงผลลัพธ์ที่สอดคล้องกันว่า RPX1 ‐FLAG สามารถย่อยสลายได้ด้วยตัวอ่อน การรบกวน คล้ายกับ RPX1‐GFP (รูปที่ 8c) แมลงรบกวนมักทำให้เกิดบาดแผลในพืช และความเสียหายทางกายภาพบางส่วนสามารถจำลองกระบวนการให้อาหารของแมลงที่กินพืชเป็นอาหารได้ เพื่อแสดงให้เห็นว่าบาดแผลสามารถทำให้เกิดการย่อยสลาย RPX1 ได้หรือไม่ เราใช้เข็มเพื่อสร้างรูในใบพืชเพื่อเลียนแบบบาดแผลและพบว่า RPX1‐GFP เสื่อมสภาพหลังจากการรักษา 30 นาที (รูปที่ 8d ข้อมูลสนับสนุน: รูปที่ S10b) เพื่อทำความเข้าใจให้ดีขึ้นถึงสาเหตุของการย่อยสลาย RPX1 จากการแพร่กระจายของ P. xylostella เราได้บ่มเนื้อเยื่อของพืชดัดแปรพันธุกรรม RPX1 ‐ GFP ร่วมกันในสารละลายเป็นเวลา 15 นาทีด้วย Col‐0 ซึ่งถูกรบกวนโดย P. xylostella เป็นเวลา 15–120 นาที หรือเนื้อเยื่อ Col‐0 ที่ไม่มีการแพร่กระจาย การวิเคราะห์อิมมูโนลอตต์แสดงให้เห็นว่าระดับ RPX1‐GFP จากตัวอย่างที่บ่มด้วย Col‐0 ที่ถูกรบกวนก่อนนั้นต่ำกว่าระดับ Col‐0 ที่ไม่ติดเชื้อมาก (รูปที่ 8e) ซึ่งบ่งชี้ว่าการแพร่กระจายของ P. xylostella ทำให้เกิดปัจจัยหรือสัญญาณบางอย่างใน Col‐0 ที่อาจนำไปสู่การย่อยสลาย RPX1
3.10|การกลายพันธุ์ของ rpx1‐1 ให้ความได้เปรียบในการพัฒนาและการสืบพันธุ์ของพืช
คุณลักษณะทั่วไปของการตอบสนองการป้องกันพืชสมุนไพรโดยเฉพาะคือการแลกเปลี่ยนระหว่างความต้านทานศัตรูพืชกับการเจริญเติบโตและการสืบพันธุ์ของพืช (Li et al., 2018) เพื่อตรวจสอบว่าจีโนไทป์ที่ RPX1 locus ขึ้นอยู่กับการแลกเปลี่ยนดังกล่าวหรือไม่ เราได้เปรียบเทียบการผลิตเมล็ดพันธุ์ใน Col‐{1{13}}}} และ rpx1‐1 กลายพันธุ์ ในกรณีที่ไม่มีการแพร่กระจายของ P. xylostella ผลผลิตเมล็ดต่อต้นจะใกล้เคียงกันระหว่างจีโนไทป์ทั้งสอง (ข้อมูลสนับสนุน: รูปที่ S11) ในทางตรงกันข้าม การให้พืช rpx1‐1 และ Col‐0 อายุ 3 สัปดาห์สัมผัสกับการทำลายของ P. xylostella 15 วินาทีในเวลาเพียง 72 ชั่วโมงจะลดผลผลิตเมล็ดสุดท้ายของ Col‐0 ลงสามเท่า ในขณะที่ ผลผลิตเมล็ดใน rpx1‐1 ไม่ได้รับผลกระทบอย่างมีนัยสำคัญ ยิ่งไปกว่านั้น ผลผลิตเมล็ดพันธุ์ของ RPX1com นั้นคล้ายคลึงกับ Col‐0 แต่ต่ำกว่าของ rpx1‐1 มาก ซึ่งบ่งชี้ว่าการปิดใช้งาน RPX1 ให้ความได้เปรียบในการผลิตเมล็ดพันธุ์เมื่อมีการแพร่กระจายของตัวอ่อน (ข้อมูลสนับสนุน: รูปที่ S11) นอกจากนี้เรายังประเมินการผลิตเมล็ดพันธุ์ใน 35Spro: PEN1 transgenic Arabidopsis และสังเกตว่าการแสดงออกที่มากเกินไปของ PEN1 ทำให้ผลผลิตเมล็ดสูงขึ้นภายใต้สภาวะทั้งที่เป็นตัวอ่อนและไม่ถูกรบกวน (ข้อมูลสนับสนุน: รูปที่ S11) ผลลัพธ์เหล่านี้ชี้ให้เห็นว่าการกลายพันธุ์ของ rpx1‐1 และการแสดงออกของ PEN1 ที่สูงกว่าทำให้เกิดการต้านทานต่อ P. xylostella ในกรณีที่ไม่มีการแลกเปลี่ยนการเจริญเติบโตที่เกี่ยวข้องกันโดยทั่วไป โดยเน้นถึงศักยภาพของ RPX1 และ PEN1 ในโครงการปรับปรุงพันธุ์ระดับโมเลกุลที่มุ่งปรับปรุงการผลิตพืชผล

cistanche tubulosa-ปรับปรุงระบบภูมิคุ้มกัน
4|การอภิปราย
สัตว์รบกวนทำให้ผลผลิตและคุณภาพทางการเกษตรลดลงอย่างมาก ทำให้การคุ้มครองพืชเป็นเรื่องสำคัญและเป็นเป้าหมายระยะยาวสำหรับเกษตรกรและผู้เพาะพันธุ์ ในการศึกษานี้ เราได้ระบุ Arabidopsis กลายพันธุ์ rpx1‐1 ซึ่งมีความต้านทานสูงต่อ P. xylostella ซึ่งเป็นศัตรูพืชจำพวกเลปิโดปเทอรันที่สำคัญของพืช การวิเคราะห์ของเราเปิดเผยว่าการกลายพันธุ์ของ rpx1‐1 ส่งผลให้ระดับการถอดเสียง PEN1 สูงขึ้น การสะสม DMNT และความต้านทานของพืชต่อศัตรูพืชดีขึ้น นอกจากนี้เรายังแสดงให้เห็นว่าโปรตีน RPX1 สามารถย่อยสลายได้โดยการแพร่กระจายของตัวอ่อนและการรักษาบาดแผล

รูปที่ 6 PEN1 มีส่วนช่วยในการเพิ่มความต้านทานของ rpx1‐1 ต่อ Plutella xylostella ( a, b ) ยีน PEN1 ‐ amiR ช่วยลดความต้านทานของ rpx1 ‐ 1 ถึงการแพร่กระจายของ P. xylostella อย่างมีนัยสำคัญ ในขณะที่ 35Spro: PEN1 ช่วยเพิ่มผลการต้านทาน ดังที่แสดงโดยการตาย ( a ) และอัตราดักแด้ ( b ) อัตราของตัวอ่อน P. xylostella . (c) ภาพตัวแทนของตัวอ่อนที่เลี้ยงด้วย Col‐0, rpx1‐1, PEN1‐amiR/rpx1‐1 และ 35Spro: ต้นกล้า PEN1 แสดงการคงสีย้อมไว้ โดยเห็นได้จากลักษณะสีน้ำเงินของพวกมัน เช่นการ์ตูน Smurf อักขระ. (d) ผลลัพธ์การหาปริมาณของรูปภาพที่แสดงใน (c) (e–j) ส่วนตามขวางและการย้อมสี hematoxylin‐eosin แสดงความเสียหายของ PM จากตัวอ่อนที่เลี้ยงด้วย Col‐0 (e), rpx1‐1 (f), PEN1‐amiR/rpx1‐1 (g, h) และ 35Spro: ต้นกล้า PEN1 (i, j) ข้อมูลถูกนำเสนอเป็นค่าเฉลี่ย ± sem; ตัวอักษรที่แตกต่างกันในแต่ละการรักษาบ่งบอกถึงความแตกต่างที่มีนัยสำคัญใน (a, b, d) (การวิเคราะห์ความแปรปรวนทางเดียว, n=6) [สามารถดูรูปสีได้ที่ wileyonlinelibrary.com]
ในการทดสอบแบบไม่มีทางเลือก การกลายพันธุ์ rpx1‐1 มีความต้านทานอย่างมีนัยสำคัญต่อการแพร่กระจายของ P. xylostella (รูปที่ 1c) ในทางกลับกัน ตัวอ่อนของ P. xylostella ที่เลี้ยงด้วยพืช rpx1‐1 แสดงให้เห็นความทุกข์ทางพัฒนาการเชิงลบอย่างรุนแรง (รูปที่ 1d, e) ฟีโนไทป์เหล่านี้มีสาเหตุมาจากการปิดใช้งาน RPX1 เนื่องจากเส้นเสริม RPX1 (RPX1com) มีความอ่อนไหวพอๆ กับ Col‐{10}} ชนิดไวด์ (รูปที่ 1c–e) ซึ่งสนับสนุนข้อสรุปว่า RPX1 เกี่ยวข้องกับการต้านทานศัตรูพืช นอกเหนือจากการฆ่าตัวอ่อนแล้ว การกลายพันธุ์ rpx1‐1 ยังส่งผลระยะยาวต่อการพัฒนาของตัวอ่อน รวมถึงดักแด้ (รูปที่ 1f) ซึ่งนำไปสู่การแพร่พันธุ์ของศัตรูพืชลดลง
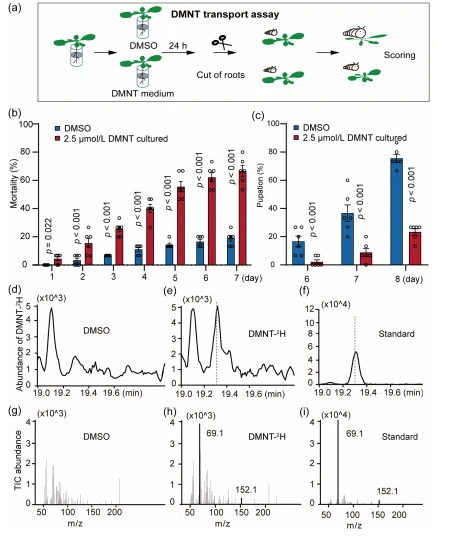
รูปที่ 7 การขนส่งไดเมทิล‐1,3,7โนนาไตรอีน (DMNT) จากรากอาราบิดอปซิสไปยังใบ ( a ) ภาพประกอบการทดสอบการขนส่ง DMNT โดยใช้ต้นกล้า Arabidopsis DMNT ถูกละลายในตัวกลางของเหลวมูราชิเงะและสคูก หลังจากการเพาะเลี้ยงเป็นเวลา 24- ชั่วโมง รากจะถูกตัดออก และใช้ใบเพื่อเลี้ยงตัวอ่อนของพลูเทลลา ไซโลสเตลลา เพื่อหาอัตราการตายและอัตราการเป็นดักแด้ (b, c) DMNT ซึ่งขนส่งจากรากสู่ใบ ส่งผลให้อัตราการตายสูงขึ้น (b) และอัตราการดักแด้ลดลง (c) ตัวอ่อนของ P. xylostella (d–f) DMNT ที่มีป้ายกำกับ 2 H (DMNT‐ 2 H) ถูกขนส่งจากรากสู่ใบ DMNT‐ 2 H ถูกละลายในตัวกลาง MS ของเหลวเช่นเดียวกับใน (a) เป็นเวลา 24 ชั่วโมง จากนั้นจึงเก็บเกี่ยวใบเพื่อการวิเคราะห์ GC‐MS (e) DMSO ถูกใช้เป็นตัวควบคุม (d) มาตรฐาน DMNT‐ 2 H แสดงไว้เพื่อใช้อ้างอิง (f) (g–i) TIC ของ DMNT‐ 2 H ได้รับระหว่างการตรวจการขนส่งที่แสดงใน (d–f) ข้อมูลถูกนำเสนอเป็นค่าเฉลี่ย ± sem ใน (b, c) n=6 ค่า p จะแสดงอยู่ติดกับคอลัมน์ฮิสโตแกรมเพื่อระบุความแตกต่างที่มีนัยสำคัญ (การทดสอบ t unpaired แบบสองด้าน) โปรดทราบว่าการควบคุมเพิ่มเติมสำหรับการทดสอบการขนส่งจะรวมอยู่ในข้อมูลสนับสนุน: รูปที่ S8 [สามารถดูรูปสีได้ที่ wileyonlinelibrary.com]
นอกจากนี้ การทดสอบตามความชอบระบุว่าการกลายพันธุ์ Col‐{{0}} และ rpx1‐1 ชนิดไวด์อาจปล่อยสารประกอบระเหยที่แตกต่างกัน หนึ่งในนั้นคือ DMNT ซึ่งมีประสิทธิภาพในการขับไล่ศัตรูพืช (รูปที่ 1b, 3a, ข้อมูลสนับสนุน: รูปที่ S5a) จากผลลัพธ์ข้างต้น เราเสนอว่าการสะสม DMNT ใน rpx1‐1 เป็นหนึ่งในสาเหตุของการเป็นพิษจากแมลง มีรายงานว่าเส้นทางการส่งสัญญาณของ JA และ SA เกี่ยวข้องกับการต้านทานแมลง (Costarelli et al., 2020; Lortzing & Steppuhn, 2016) ในการศึกษานี้ หลังจากให้อาหารแมลงเป็นเวลา 24 ชั่วโมง เนื้อหาของ JA และ SA ในทั้ง Col‐0 และ rpx1‐1 กลายพันธุ์เพิ่มขึ้น และการเพิ่มขึ้นของปริมาณ SA ใน rpx1‐1 นั้นต่ำกว่าใน Col‐0 อย่างมีนัยสำคัญ ในขณะที่ การเพิ่มขึ้นของเนื้อหา JA นั้นสูงขึ้นมาก (ข้อมูลสนับสนุน: รูปที่ S6) ซึ่งบ่งชี้ว่า JA และ SA อาจมีบทบาทสำคัญในการต้านทานของ rpx1‐1 ต่อ P. xylostella ดังนั้นเราจึงเสนอว่าผลกระทบทั้งทางตรงและทางอ้อมของ rpx1‐1 มีส่วนทำให้ความต้านทานของ Arabidopsis ต่อแมลงเพิ่มขึ้น

รูปที่ 8 การย่อยสลายโปรตีน RPX1 เกิดขึ้นจากการแพร่กระจายของพลูเทลลา ไซโลสเตลลา และการรักษาบาดแผล (a) RPX1‐GFP จาก RPX1pro: RPX1‐ GFP พืชดัดแปรพันธุกรรมจะถูกย่อยสลายเมื่อมีการรบกวนของ P. xylostella เป็นเวลา 15−120 นาที (b) เพื่อเป็นการควบคุมสำหรับ (a) GFP เองจาก 35Spro: พืชดัดแปรพันธุกรรม GFP ไม่แสดงการย่อยสลายเมื่อมีการรบกวนของตัวอ่อน (c) RPX1‐flag จาก 35Spro: พืชดัดแปรพันธุกรรม RPX1‐flag จะถูกย่อยสลายเมื่อมีการแพร่กระจายของตัวอ่อน (d) RPX1‐GFP จาก RPX1pro: พืชดัดแปรพันธุกรรม RPX1‐GFP จะถูกย่อยสลายโดยการรักษาบาดแผล 15−120 นาที (e) RPX1‐GFP จาก RPX1pro: พืชดัดแปรพันธุกรรม RPX1‐GFP จะถูกย่อยสลายเมื่อเนื้อเยื่อถูกบ่มในสารละลายด้วยเนื้อเยื่อจากพืช Col‐0 ที่ถูกรบกวนโดย P. xylostella เป็นเวลา 15−120 นาที ค่าด้านล่างแถบซับภูมิคุ้มกันแสดงปริมาณโปรตีนสัมพัทธ์ที่วัดปริมาณโดยใช้ ImageJ การทดลองทั้งหมดนี้ทำซ้ำอย่างน้อยสามครั้ง และแสดงผลลัพธ์ที่เป็นตัวแทน ข้อมูลการทดลองเพิ่มเติมที่มีสายพันธุ์ดัดแปลงพันธุกรรมอิสระแสดงอยู่ในข้อมูลสนับสนุน: รูปที่ S10 [สามารถดูรูปสีได้ที่ wileyonlinelibrary.com]
เรานำเสนอหลักฐานหลายบรรทัดที่แสดงให้เห็นว่าการสะสม DMNT ที่เป็นสื่อกลางของ PEN{{0}} มีส่วนช่วยในการทำงานของ RPX1 ในการต้านทานพืชต่อ P. xylostella ได้อย่างไร PEN1 ซึ่งเป็นยีนสำคัญที่อยู่ในเส้นทางการสังเคราะห์ทางชีวภาพของ sesquiterpenoid และ triterpenoid ถูกระบุจากการวิเคราะห์ KEGG ของข้อมูล RNA seq จากการกลายพันธุ์ rpx1‐1 (รูปที่ 3b) ซึ่งให้การเชื่อมโยงระหว่าง RPX1, PEN1 และ DMNT (Sohrabi et al. , 2015) เพื่อสนับสนุน DMNT ในฐานะหนึ่งในสารประกอบเชิงสาเหตุที่ฆ่าตัวอ่อนของศัตรูพืช DMNT สะสมในการกลายพันธุ์ rpx1‐1 สูงกว่าใน Col‐0 (รูปที่ 3a) แต่ระดับในบรรทัด RPX1com กลับเป็น Col‐0 ( รูปที่ 4a–c) นอกจากนี้ DMNT ที่สังเคราะห์ทางเคมีสามารถขับไล่และฆ่าตัวอ่อน P. xylostella (ข้อมูลสนับสนุน: รูปที่ S5a, b) ซึ่งสอดคล้องกับผลลัพธ์ของ rpx1‐1 (รูปที่ 1b,e) นอกจากนี้ พืชดัดแปรพันธุกรรมที่แสดงออกมากเกินไป PEN1 ผลิต DMNT มากกว่าสี่เท่าใน Col‐0 และให้ความต้านทานที่คล้ายกันกับ P. xylostella เป็น rpx1‐1 (รูปที่ 5d, i,j,o,p และ 6)
ที่สำคัญการลดระดับการถอดเสียง PEN1 ใน rpx1‐1 บล็อกการสังเคราะห์ DMNT (รูปที่ 5d, g, h, m, n) และบรรเทาผลการฆ่าตัวอ่อนของ P. xylostella ซึ่งอ่อนแอต่อการรบกวนของ P. xylostella (รูปที่ 6a, b ). ผลลัพธ์แบบรวมเหล่านี้บ่งชี้ว่าการกลายพันธุ์ของ PEN1 สามารถระงับการทำงานของการปิดใช้งาน RPX1 ในการต้านทานศัตรูพืชได้ รอยโรค RPX1 ทำให้เกิดความอุดมสมบูรณ์ของ PEN1 ที่สูงขึ้น (รูปที่ 5a) อย่างไรก็ตาม RPX1 ควบคุม PEN1 และเป็นสื่อกลางในการสังเคราะห์ DMNT ได้อย่างไรนั้นจำเป็นต้องมีการศึกษาเพิ่มเติม เนื่องจากคาดการณ์ว่า RPX1 จะเป็นโปรตีนที่จับกับฝาปิดแบบใหม่ที่เป็นของตระกูล eIF4E (Rhoads, 2009; Ruud et al., 1998) จึงเป็นไปได้ที่ RPX1 อาจส่งผลกระทบต่อ PEN1 โดยมีอิทธิพลต่อความเสถียรของ mRNA หรือประสิทธิภาพการแปลโปรตีน ซึ่งจะเป็นสิ่งสำคัญ หัวข้อในการศึกษาในอนาคต ยิ่งไปกว่านั้นควรสังเกตว่าระดับ DMNT ยังคงสามารถถูกชักจูงให้อยู่ในระดับที่สูงขึ้นโดยการแพร่กระจายของ P. xylostella ในการกลายพันธุ์ rpx1‐1 (รูปที่ 5d) ซึ่งบ่งบอกว่าอาจมีเส้นทางอื่นที่ควบคุมการสะสม DMNT โดยไม่ขึ้นกับ RPX1 DMNT ถูกตรวจพบในพืชหลากหลายชนิด เช่น Arabidopsis (Sohrabi et al., 2015), ฝ้าย (Liu et al., 2018) และข้าวโพด (Richter et al., 2016) นอกจากนี้ยังให้การป้องกันทางอ้อมต่อแมลงศัตรูพืชที่กินพืชเป็นอาหารโดยการดึงดูดสัตว์นักล่า ทำให้พืชสามารถกำจัดภัยคุกคามจากสัตว์รบกวนได้ (Kappers et al., 2005; Lee et al., 2010; Li et al., 2018) เรารายงานเมื่อเร็ว ๆ นี้ว่ามันสามารถขับไล่และฆ่าตัวอ่อนของ P. xylostella ได้ด้วยการทำลาย PM ในช่วงกลางของตัวอ่อน (Chen et al., 2021) ที่นี่เราพบว่าโครงสร้าง PM อาจได้รับความเสียหายอย่างรุนแรงเมื่อตัวอ่อนถูกเลี้ยงด้วย rpx1‐1 หรือ PEN1 ที่แสดงออกมากเกินไป (รูปที่ 2c – j และ 6i, j) ผลลัพธ์เหล่านี้สอดคล้องกับข้อค้นพบในการทดลองการรักษา DMNT ที่เราอธิบายไว้ก่อนหน้านี้ (Chen et al., 2021) สนับสนุนข้อเสนออีกครั้งว่าการสะสม DMNT ใน rpx1‐1 อาจเป็นปัจจัยหนึ่งที่มีส่วนในการขับไล่ศัตรูพืชและการเสียชีวิต RPX1 อยู่ในตระกูลยีน eIF4E (Rhoads, 2009) และเกี่ยวข้องกับการเคลื่อนย้ายไวรัสพืชจากเซลล์สู่เซลล์ (Keima et al., 2017) อย่างไรก็ตาม การสะสม DMNT เชื่อมโยงกับการต้านทานไวรัสในพืชยังไม่ชัดเจนหรือไม่ PEN1 แสดงออกเป็นพิเศษในรากของ Arabidopsis ซึ่งมันกระตุ้นการสังเคราะห์ DMNT (Sohrabi et al., 2015)

cistanche tubulosa-ปรับปรุงระบบภูมิคุ้มกัน
ในการศึกษานี้อย่างต่อเนื่อง เราตรวจพบการแสดงออกของ PEN1 สูงในรากและการแสดงออกที่ต่ำมากในใบ (ข้อมูลสนับสนุน: รูปที่ S8a) เราสังเกตว่าใบของการกลายพันธุ์ rpx1‐1 เป็นพิษต่อตัวอ่อน P. xylostella (รูปที่ 1) ซึ่งบ่งบอกว่าการสะสมของ DMNT และความต้านทานศัตรูพืชที่เกี่ยวข้องในใบไม่สามารถอธิบายได้ง่ายๆ ด้วยการแสดงออกของ PEN1 นาทีในเนื้อเยื่อเหล่านี้ มีความหมายว่า เราพบว่า DMNT สามารถขนส่งจากรากพืชไปยังชิ้นส่วนทางอากาศ ดังที่แสดงโดยการทดสอบการขนส่ง DMNT และการวิเคราะห์ GC‐MS ของสารสกัดจากใบจากพืชที่บ่มด้วย DMNT‐ 2 H ที่ราก (รูปที่ 7) วิธีการขนส่งสารประกอบนี้ภายในพืชยังไม่ชัดเจน และอาจเป็นหัวข้อที่ต้องตรวจสอบต่อไป พืชมีความสามารถในการอดทนและต่อสู้กับการโจมตีของแมลงได้หลายวิธี ที่นี่ โดยทำการวิเคราะห์อิมมูโนลอตต์ของ RPX1pro: RPX1 ‐ GFP และ 35 Spro: RPX1 ‐ FLAG พืชดัดแปรพันธุกรรม เราพบว่าเมื่อมีการรบกวนของ P. xylostella โปรตีน RPX1 สามารถย่อยสลายได้อย่างรวดเร็ว (รูปที่ 8a, c ข้อมูลสนับสนุน: รูปที่ S10a) ในขณะที่ ที่ระดับการแสดงออก mRNA นั้น RPX1 ยังคงไม่ได้รับผลกระทบ (ข้อมูลสนับสนุน: รูปที่ S9b) ปัจจุบันวิธีการย่อยสลายโปรตีน RPX1 ยังคงไม่ชัดเจน แต่ข้อมูลของเราได้แนะนำเบื้องต้นว่ากลไกการย่อยสลายโปรตีนอาจเกี่ยวข้องกับเส้นทางการส่งสัญญาณของการกระทบกระทั่ง (รูปที่ 8d ข้อมูลสนับสนุน: รูปที่ S10b)
ยิ่งไปกว่านั้น P. xylostella ที่ถูกรบกวนล่วงหน้า Col‐0 ทำให้เกิดการย่อยสลาย RPX1‐GFP ในพืชต่างๆ (รูปที่ 8e) ซึ่งบ่งชี้ว่าการแพร่กระจายของ P. xylostella อาจทำให้เกิดการสะสมของสัญญาณในพืช ซึ่งอาจนำไปสู่ การย่อยสลาย RPX1 การค้นหาตัวตนของสัญญาณจะน่าสนใจในอนาคต คุณลักษณะของการย่อยสลาย RPX1 นี้มีความสำคัญสำหรับพืช ซึ่งอาจนำไปสู่การสะสม DMNT และให้การตอบสนองอย่างรวดเร็วต่อความเสียหายของศัตรูพืช (ข้อมูลสนับสนุน: รูปที่ S3) ความอดทนของพืชต่อศัตรูพืชที่เพิ่มขึ้นมักมาพร้อมกับการสูญเสียสมรรถภาพ การสังเกตว่าการกลายพันธุ์ของ rpx1‐1 นำไปสู่การต้านทานที่เพิ่มขึ้น (รูปที่ 1) และการผลิตเมล็ดพันธุ์ที่สูงขึ้น (ข้อมูลสนับสนุน: รูปที่ S11) ใน Arabidopsis โดยไม่มีการแลกเปลี่ยนอย่างมีนัยสำคัญ นำเสนอหนทางที่มีแนวโน้มสำหรับพืชวิศวกรรมที่มีความต้านทานศัตรูพืชสูงกว่า ตัวอย่างเช่น การแก้ไขจีโนมผ่าน CRISPR-Cas9 เป็นเครื่องมืออันทรงพลังสำหรับการปรับปรุงพืชผล (Yang et al., 2017) ที่ช่วยให้เกิดการกลายพันธุ์ใน RPX1 และอาจขยายการใช้งานไปยังพืชผลต่างๆ
ข้อมูลอ้างอิง
Arimura, G. , Ozawa, R. , Shimoda, T. , Nishioka, T. , Boland, W. & Takabayashi, J. (2000) สารระเหยที่เกิดจากพืชสมุนไพรทำให้เกิดยีนป้องกันในใบถั่วลิมา ธรรมชาติ, 406, 512–515.
Chen, C. , Chen, H. , Huang, S. , Jiang, T. , Wang, C. , Tao, Z. และคณะ (2021) DMNT ที่ระเหยง่ายช่วยปกป้องพืชจากพลูเทลลาไซโลสเตลลาโดยตรง โดยการรบกวนสิ่งกีดขวางเมทริกซ์เยื่อบุช่องท้องในลำไส้ของแมลง อีไลฟ์, 10, e63938.
Cheng, X. , Hu, J. , Li, J. , Chen, J. , Wang, H. , เหมา, T. , และคณะ (2018) ความเสียหายของต่อมไหมและการตอบสนองของการถอดรหัสต่อยีนที่เกี่ยวข้องกับเอนไซม์ล้างพิษของ Bombyx mori ภายใต้การสัมผัสของ phoxim เคโมสเฟียร์, 209, 964–971
Clough, SJ & Bent, AF (1998) การจุ่มดอกไม้: วิธีการที่เรียบง่ายสำหรับการเปลี่ยนแปลงโดยใช้สื่อกลางของ Agrobacterium ของ Arabidopsis thaliana วารสารพืช, 16, 735–743.
Costarelli, A. , Blanchet, C. , Ederli, L. , Salerno, G. , Piersanti, S. , Rebora, M. และคณะ (2020) กรดซาลิไซลิกที่เกิดจากอาหารของสัตว์กินพืชเป็นปฏิปักษ์กับการป้องกันพืชที่ใช้กรด jasmonic จากการโจมตีของแมลง การส่งสัญญาณและพฤติกรรมของพืช, 15, e1704517
Douglas, AE (2018) กลยุทธ์ในการเพิ่มความต้านทานพืชต่อแมลงศัตรูพืช การทบทวนชีววิทยาพืชประจำปี, 69, 637–660.
Feng, Y. & Zhang, A. (2017) กลิ่นดอกไม้ เมทิลเบนโซเอต เป็นยาฆ่าแมลงสีเขียวที่มีประสิทธิภาพ รายงานทางวิทยาศาสตร์, 7, 42168.
Field, B. & Osbourn, AE (2008) การประกอบกลุ่มยีนที่มีลักษณะคล้ายโอเปอเรเตอร์ในพืชต่างๆ วิทยาศาสตร์, 320, 543–547.
ไป, YS, Lee, SB, Kim, HJ, Kim, J., Park, HY, Kim, JK และคณะ (2012) การจำแนกแร่สังเคราะห์ซึ่งมีความสำคัญต่อการเจริญเติบโตและการพัฒนาในอาราบิดอปซิส วารสารพืช, 72, 791–804
Gols, R. (2014) การป้องกันสารเคมีทั้งทางตรงและทางอ้อมต่อแมลงในกรอบการทำงานแบบหลายชั้น พืช เซลล์ และสิ่งแวดล้อม, 37, 1741–1752.
Gomez, MA, Lin, ZD, Moll, T., Chauhan, RD, Hayden, L., Renninger, K. และคณะ (2019) การแก้ไขไอโซฟอร์มมันสำปะหลัง eIF4E ที่ใช้สื่อกลาง CRISPR/Cas9 พร้อมกัน nCBP‐1 และ nCBP‐2 ลดความรุนแรงและอุบัติการณ์ของโรคริ้วสีน้ำตาลของมันสำปะหลัง วารสารเทคโนโลยีชีวภาพพืช, 17, 421–434.
Gouinguené, S., Pickett, JA, Wadhams, LJ, Birkett, MA & Turlings, TCJ (2005) การตอบสนองทางไฟฟ้าสรีรวิทยาของเสาอากาศของตัวต่อปรสิตสามตัวต่อสารระเหยที่เกิดจากหนอนผีเสื้อจากข้าวโพด (Zea mays), ฝ้าย (Gossypium Herbaceum) และถั่วพุ่ม (Vigna unguiculata). วารสารนิเวศวิทยาเคมี, 31, 1023–1038.
Handrick, V. , Robert, CAM, Ahern, KR, Zhou, S. , Machado, RAR, Maag, D. และคณะ (2016) การสังเคราะห์สารประกอบป้องกันเบนโซซาซินอยด์ 8‐O‐methylated ในข้าวโพด เซลล์พืช, 28, 1682-1700.
Huang, AC, Jiang, T., Liu, YX, Bai, YC, Reed, J., Qu, B. และคณะ (2019) เครือข่ายเมตาบอลิซึมเฉพาะทางคัดเลือกปรับเปลี่ยนจุลินทรีย์ราก Arabidopsis วิทยาศาสตร์, 364, eaau6389.
Huang, HJ & Yang, WB (2007) การสังเคราะห์โมอีโนซินอลและสารอะนาล็อกโดยใช้บีทีซัลโฟนในการโอเลฟิเนชั่นของ Julia‐Kocienski จดหมายจัตุรมุข, 48, 1429–1433
Jing, T., Du, W., Gao, T., Wu, Y., Zhang, N., Zhao, M. และคณะ (2020) DMNT ที่เกิดจากสัตว์กินพืชซึ่งเร่งปฏิกิริยาโดย CYP82D47 มีบทบาทสำคัญในการเหนี่ยวนำให้เกิดความต้านทานต่อสัตว์กินพืชที่ขึ้นกับ JA ของต้นชาที่อยู่ใกล้เคียง พืช เซลล์ และสิ่งแวดล้อม, 44, 1178–1191.
Johnson, SN & Züst, T. (2018) การเปลี่ยนแปลงสภาพภูมิอากาศและแมลงศัตรูพืช: การต้านทานไม่ได้ไร้ประโยชน์ใช่ไหม แนวโน้มทางพืชศาสตร์, 23, 367–369.
Jouzani, GS, Valijanian, E. & Sharafi, R. (2017) Bacillus thuringiensis: ยาฆ่าแมลงที่ประสบความสำเร็จพร้อมคุณสมบัติและข่าวสารด้านสิ่งแวดล้อมใหม่ จุลชีววิทยาประยุกต์และเทคโนโลยีชีวภาพ, 101, 2691–2711.
Kappers, IF, Aharoni, A., van Herpen, TWJM, Luckerhoff, LLP, Dicke, M. & Bouwmeester, HJ (2005) พันธุวิศวกรรมของการเผาผลาญเทอร์พีนอยด์ดึงดูดผู้คุ้มกันให้มาที่ Arabidopsis วิทยาศาสตร์, 309, 2070–2072.
Keima, T. , Hagiwara‐Komoda, Y. , Hashimoto, M. , Neriya, Y. , Koinuma, H. , Iwabuchi, N. , และคณะ (2017) การขาดไอโซฟอร์ม nCBP ของ eIF4E จำกัดการเคลื่อนที่ของเซลล์สู่เซลล์ของไวรัสพืชที่เข้ารหัสโปรตีนบล็อกสามยีนใน Arabidopsis thaliana รายงานทางวิทยาศาสตร์, 7, 39678.
Lee, S., Badieyan, S., Bevan, DR, Herde, M., Gatz, C. & Tholl, D. (2010) สารระเหย monoterpene ที่เกิดจากสัตว์กินพืชและดอกไม้ถูกสังเคราะห์ทางชีวภาพโดยเอนไซม์ P450 เดี่ยว (CYP82G1) ใน Arabidopsis . การดำเนินการของ National Academy of Sciences, 107, 21205–21210
Li, B., Förster, C., Robert, CAM, Züst, T., Hu, L., Machado, RAR, และคณะ (2018) วิวัฒนาการมาบรรจบกันของสวิตช์เมตาบอลิซึมระหว่างความต้านทานเพลี้ยอ่อนและหนอนผีเสื้อในธัญพืช ความก้าวหน้าทางวิทยาศาสตร์, 4, eaat6797
Liu, D. , Huang, X. , Jing, W. , An, X. , Zhang, Q. , Zhang, H. และคณะ (2018) การระบุและการวิเคราะห์การทำงานของเอนไซม์ P450 สองตัวของ Gossypium hirsutum ที่เกี่ยวข้องกับการสังเคราะห์ทางชีวภาพของ DMNT และ TMTT วารสารเทคโนโลยีชีวภาพพืช, 16, 581–590.
Lortzing, T. & Steppuhn, A. (2016) การส่งสัญญาณของ Jasmonate ในพืชทำให้เกิดระบบนิเวศน์ปฏิสัมพันธ์ระหว่างแมลงพืช ความคิดเห็นปัจจุบันในวิทยาศาสตร์แมลง, 14, 32–39
Lu, H., Luo, T., Fu, H., Wang, L., Tan, Y., Huang, J., และคณะ (2561) ความต้านทานของข้าวต่อแมลงศัตรูพืชโดยอาศัยการยับยั้งการสังเคราะห์เซโรโทนิน พืชธรรมชาติ, 4, 338–344.
Lucioli, A. , Tavazza, R. , Baima, S. , Fatyol, K. , Burgyan, J. & Tavazza, M. (2022) การกำหนดเป้าหมาย CRISPR‐Cas9 ของยีน eIF4E1 ขยายสเปกตรัมความต้านทานไวรัสมันฝรั่ง Y ของ Solanum tuberosum L. cv. ความปรารถนา พรมแดนทางจุลชีววิทยา, 13, 873930.
Ma, F. , Yang, X. , Shi, Z. & Miao, X. (2019) crosstalk นวนิยายระหว่างการตอบสนองของทางเดินเอทิลีนและกรด jasmonic ต่อแมลงดูดเจาะในข้าว นักพฤกษศาสตร์คนใหม่, 225, 474–487.
Meents, AK, Chen, SP, Reichelt, M., Lu, HH, Bartram, S., Yeh, KW และคณะ (2019) DMNT ที่ระเหยง่ายกระตุ้นการป้องกันสัตว์กินพืชโดยตรงที่เป็นอิสระจาก jasmonate ในใบของมันเทศ (Ipomoea batatas) รายงานทางวิทยาศาสตร์, 9, 17431.
Mikstacki, A., Zakerska‐Banaszak, O., Skrzypczak‐Zielinska, M., Tamowicz, B., Szalata, M. & Slomski, R. (2015) Glutathione S‐transferase เป็นตัวบ่งชี้ความเป็นพิษในการดมยาสลบ: พันธุศาสตร์และ ฟังก์ชั่นทางชีวเคมี วารสารการดมยาสลบคลินิก, 27, 73–79
Rhoads, RE (2009) eIF4E: สมาชิกในครอบครัวใหม่ พันธมิตรที่ผูกพันใหม่ บทบาทใหม่ วารสารเคมีชีวภาพ, 284, 16711–16715.
Richter, A. , Schaff, C. , Zhang, Z. , Lipka, AE, Tian, F. , Köllner, TG และคณะ (2016) การศึกษาลักษณะเฉพาะของวิถีการสังเคราะห์ทางชีวภาพสำหรับการผลิตโฮโมเทอร์พีนที่ระเหยได้ DMNT และ TMTT ใน Zea mays เซลล์พืช, 28, 2651–2665
Ruud, KA, Kuhlow, C., Goss, DJ & Browning, KS (1998) การจำแนกและจำแนกลักษณะของโปรตีนที่จับกับหมวกแบบใหม่จาก Arabidopsis thaliana วารสารเคมีชีวภาพ, 273, 10325–10330.