สารสกัดจาก Herba Cistanche ช่วยเพิ่มการสร้าง ATP ของไมโตคอนเดรียในหัวใจหนูและเซลล์ H9c2
Mar 04, 2022
ติดต่อ: Audrey Huaudrey.hu@wecistanche.com
ฮอย ยัน เหลียง & คัม หมิง โก
เพื่ออ้างอิงบทความนี้: Hoi Yan Leung & Kam Ming Ko (2008) Herba Cistanche Extract ช่วยเพิ่มการสร้าง Mitochondrial ATP ใน Rat Hearts และ H9c2 Cells, Pharmaceutical Biology, 46:6, 418-424, DOI: 10.1080/13880200802055883
เชิงนามธรรม
ในการศึกษาพื้นฐานทางเภสัชวิทยาของการกระทำ "หยางที่ทำให้ชุ่มชื่น" ของสมุนไพร Cistanche [พืชแห้งทั้งต้นของ Cistanche deserticola YC Ma (Orobanchaceae)] ในการแพทย์แผนจีน ผลของสารสกัดเมทานอลของ Herba Cistanche ต่อความสามารถในการสร้าง ATP ของไมโตคอนเดรีย ตรวจสอบโดยใช้แบบจำลองหัวใจของหนูนอกร่างกายและการทดสอบเซลล์ H9c2 ในแหล่งกำเนิด การรักษาด้วยสารสกัด Herba Cistanche ช่วยเพิ่มความสามารถในการสร้าง ATP ของไมโตคอนเดรียของกล้ามเนื้อหัวใจในลักษณะที่ขึ้นกับขนาดยาในหนูแรท โดยประเมินโดยการวัดในหลอดทดลอง การกระตุ้นความสามารถในการสร้าง ATP นั้นสัมพันธ์กับการเพิ่มประสิทธิภาพแบบขนานในการขนส่งอิเล็กตรอนในไมโตคอนเดรียซึ่งได้รับการสนับสนุนจากไพรูเวตแต่ไม่ซัคซิเนต การรักษาด้วย Herba Cistanche ยังเพิ่มกิจกรรมของไมโทคอนเดรียคอมเพล็กซ์ I ของกล้ามเนื้อหัวใจและกิจกรรมเชิงซ้อน III ด้วยขอบเขตของการกระตุ้นกิจกรรมคอมเพล็กซ์ I ที่ใหญ่ขึ้น การรักษาด้วย Herba Cistanche ช่วยเพิ่มความสามารถในการสร้าง mitochondrial ATP ในเซลล์ H9c2 โดยขึ้นอยู่กับขนาดยาและเวลา ผลการวิจัยระบุว่าการรักษาด้วย Herba Cistanche สามารถเพิ่มการสร้าง mitochondrial ATP ในหัวใจหนูนอกร่างกายและเซลล์ H9c2 ในแหล่งกำเนิด โดยอาจผ่านการเสริมสร้างฟอสโฟรีเลชั่นออกซิเดชัน
คำสำคัญ:ATP, Cistanche deserticola, เซลล์ H9c2, หัวใจ, ไมโตคอนเดรีย
บทนำ
"พลังหยาง" ซึ่งรวบรวมการเพิ่มประสิทธิภาพการทำงานของร่างกายโดยทั่วไปในการแพทย์แผนจีน เกี่ยวข้องกับการใช้พลังงานในการขับเคลื่อนกระบวนการทางชีวเคมีต่างๆ ในเรื่องนี้ ATP ซึ่งเป็นสกุลเงินสากลของพลังงานในการเติมเชื้อเพลิงให้กับการทำงานของเซลล์ ส่วนใหญ่เกิดขึ้นจากปฏิกิริยาออกซิเดชันฟอสโฟรีเลชันในไมโตคอนเดรีย เราได้ตั้งสมมติฐานว่าสมุนไพร "หยางที่เติมพลัง" มีความสามารถในการเพิ่มความสามารถในการสร้าง ATP ของไมโตคอนเดรีย (Ko et al., 2004) สิ่งนี้ได้รับการสนับสนุนโดยการค้นพบล่าสุดของเราว่าสมุนไพรจีนที่ "ให้ความสดชื่น" แต่ไม่ใช่ "การบำรุงด้วยหยิน" สามารถช่วยเพิ่มความสามารถในการสร้าง ATP ของกล้ามเนื้อหัวใจในหัวใจของหนูเมาส์ ex vivo (Ko et al., 2006) Herba Cistanche พืชกาฝากทั้งตัวที่แห้ง (ไม่รวมดอก) ของ Cistanche deserticola YC Ma (Orobanchaceae) จัดเป็นสมุนไพรปรับสภาพ 'Yang-invigorating' ในการแพทย์แผนจีน (Chen, 1998) และปรากฏว่าเป็นที่นิยมมากที่สุด ส่วนผสมในสูตรสิทธิบัตรจีนจำนวนหนึ่งที่ใช้สำหรับ Yang-invigoration' ในประเทศจีนและญี่ปุ่น Herba Cistanche ใช้กันอย่างแพร่หลายในการรักษาอาการขาดยาง การศึกษาทางเภสัชวิทยาระบุว่า Herba Cistanche สามารถกำจัดอนุมูลอิสระ (Xiong et al., 1996), ผลิตยากล่อมประสาท (Lu, 1998), การต่อต้านวัย (Lee et al., 1990), ฤทธิ์ต้านประสาทและต้านการอักเสบ (Lin et al., 2002 ) และเสริมการทำงานของภูมิคุ้มกัน (Wu et al., 2005) สารออกฤทธิ์หลักของ Herba Cistanche คือ phenylethanoid glycosides (Ouyang et al., 2003) ซึ่งพบว่ามีคุณสมบัติในการต้านเชื้อแบคทีเรีย ต้านความเครียด และต้านอนุมูลอิสระ (Xiong et al., 1998) รวมทั้งฤทธิ์ต้านการตายจากการเพาะเลี้ยง เซลล์ประสาท (Tian & Pu, 2005). ในการศึกษาปัจจุบัน เพื่อตรวจสอบพื้นฐานทางเภสัชวิทยาของฤทธิ์กระตุ้นหยางของ Herba Cistanche ผลของการรักษา Herba Cistanche ต่อความสามารถในการสร้าง ATP ในไมโตคอนเดรียที่แยกได้จากหัวใจหนูนอกร่างกายและคาร์ดิโอไมโอไซต์ H9c2 ที่เพาะเลี้ยงในแหล่งกำเนิด เพื่อสำรวจกลไกทางชีวเคมีที่เป็นรากฐานของการกระทำที่ส่งเสริมการสร้าง ATP ผลของการรักษาด้วย Herba Cistanche ต่อการขนส่งอิเล็กตรอนในไมโตคอนเดรียและกิจกรรม I–IV ที่ซับซ้อนนั้นได้รับการตรวจสอบในหัวใจของหนูด้วย
สารสกัดจาก Cistanche Deserticola
วัสดุและวิธีการ
สารเคมี การเพาะเลี้ยงเซลล์ และวัสดุจากสมุนไพร ATP, ADP และ 3-[4,5-dimethylthiozol-2-yl]-2,5-diphenyl- tetrazolium bromide ( MTT) ซื้อมาจาก Sigma Chemical Co. (St. Louis, MO, USA) สารละลายลูซิเฟอเรส (ATPlite) ได้มาจาก PerkinElmer (บอสตัน, แมสซาชูเซตส์, สหรัฐอเมริกา) อาหาร Eagle's medium (DMEM) และ fetal bovine serum (FBS) ที่ได้รับการดัดแปลงของ Dulbecco ถูกซื้อจาก GIBCO BRL Life Technologies (Grand Island, NY, USA) สายเซลล์ H9c2 ถูกซื้อจาก ATTC (Rockville, MD, USA) Herba Cistanche จัดทำโดยตัวแทนจำหน่ายสมุนไพรในท้องถิ่น (Lee Hoong Kee) สมุนไพรได้รับการรับรองโดยซัพพลายเออร์ และตัวอย่างใบสำคัญ (HKUSTY00301) ถูกฝากไว้ที่ภาควิชาชีวเคมี มหาวิทยาลัยวิทยาศาสตร์และเทคโนโลยีแห่งฮ่องกง (HKUST)
สมุนไพรสกัด
Herba Cistanche (100 ก.) หั่นเป็นชิ้นเล็กๆ แล้วสกัดด้วยความร้อนภายใต้กรดไหลย้อนในเมทานอล 300 มล.
ที่อุณหภูมิ65◦C เป็นเวลา 2 ชั่วโมง ขั้นตอนซ้ำสองครั้ง สารสกัดรวมถูกทำให้แห้งโดยการระเหยตัวทำละลายภายใต้แรงดันที่ลดลง และสารสกัดเมทานอลของ Herba Cistanche ได้ผลผลิตที่ 39 เปอร์เซ็นต์ (w/w) การวิเคราะห์ทางเคมีระบุว่าสารสกัดเมทานอลของ Herba Cistanche มีซาโปนินทั้งหมด ฟลาโวนอยด์ทั้งหมด ลิกแนนทั้งหมด และโพลีแซ็กคาไรด์ที่ความเข้มข้น 1.62 เปอร์เซ็นต์ (น้ำหนัก/น้ำหนัก) 0.08 เปอร์เซ็นต์ , 0.15 เปอร์เซ็นต์ และ 75.6 เปอร์เซ็นต์ ตามลำดับ
การดูแลสัตว์
หนู Sprague-Dawley เพศผู้ที่โตเต็มวัย (8-10 สัปดาห์ 250–300 ก.) ได้รับการดูแลภายใต้วงจรมืด/สว่าง 12-ชม. ในห้องควบคุมอากาศ/ความชื้นที่อุณหภูมิประมาณ 22◦C และอนุญาตให้อาหารและน้ำโดยอิสระ ในสถานดูแลสัตว์
ที่ HKUST โปรโตคอลการทดลองได้รับการอนุมัติโดยคณะกรรมการปฏิบัติการวิจัยที่ HKUST
การรักษาด้วยยา
สัตว์ถูกสุ่มแบ่งออกเป็นกลุ่ม โดยแต่ละสัตว์มีห้าถึงหกตัว ในกลุ่มที่บำบัดรักษา หนูได้รับยาทางช่องท้องด้วยสารสกัดจากเมทานอลของ Herba Cistanche (ละลาย/แขวนลอยในน้ำ) ในปริมาณที่เพิ่มขึ้นในแต่ละวัน ({{0}}.031–0.5 ก./กก.) เป็นเวลา 3 วัน สัตว์ควบคุมได้รับน้ำเท่านั้น ยี่สิบสี่ชั่วโมงหลังจากการให้ยาครั้งสุดท้าย หัวใจได้มาจากสัตว์ที่ใช้ยาสลบด้วยฟีโนบาร์บิทัลและอยู่ภายใต้การวิเคราะห์ทางชีวเคมี
การเตรียมเศษส่วนยลและการวัดความสามารถในการสร้าง ATP (ATP-GC) ภายนอกร่างกาย
ตัวอย่างเนื้อเยื่อหัวใจห้องล่างซ้ายถูกตัดออกและล้างด้วยบัฟเฟอร์ไอโซโทนิกที่เย็นจัด (0.32 โมลาร์ซูโครส, 1 มิลลิโมลาร์ EDTA, 50 มิลลิโมลาร์ Tris/HCl, pH 7.4) เศษส่วนของไมโตคอนเดรียของหัวใจถูกเตรียมโดยการหมุนเหวี่ยงดิฟเฟอเรนเชียลในบัฟเฟอร์ไอโซโทนิกที่อุณหภูมิ 4 องศาเซลเซียส โฮโมจีเนตหัวใจ 10 เปอร์เซ็นต์ (w/v) ถูกเตรียมโดยการทำให้เนื้อเยื่อหัวใจห้องล่างสับเป็นเนื้อเดียวกันด้วยเครื่องทำโฮโมจีไนเซอร์แก้วเทฟลอนที่ 4000 รอบต่อนาที สำหรับจังหวะที่สมบูรณ์ 20–30 ครั้ง โฮโมจีเนตถูกหมุนเหวี่ยงที่ 600 กรัม เป็นเวลา 10 นาทีเพื่อขจัดนิวเคลียสและเศษเซลล์ จากนั้น supernatant ถูกหมุนเหวี่ยงที่ 8000 กรัมเป็นเวลา 30 นาทีเพื่อทำให้ไมโตคอนเดรียตกตะกอน (Evan, 1992) เม็ดถูกแขวนลอยใหม่ใน 1 มล. ของบัฟเฟอร์ไอโซโทนิกและสร้างเศษส่วนของไมโตคอนเดรีย Mitochondrial ATP-GC ของสัตว์ที่ไม่ได้รับการรักษาถูกวัดโดยวิธีการของ Leung et al (2005).
การวัดการขนส่งอิเล็กตรอนของไมโตคอนเดรีย
การวัดการขนส่งอิเล็กตรอนในไมโตคอนเดรียที่แยกได้ ซึ่งอิงตามการลดลงของ MTT ได้ดำเนินการตามที่อธิบายไว้โดยโคเฮนและคณะ (1997). ไมโทคอนเดรียถูกเตรียมที่ความเข้มข้นของโปรตีน 1 มก./มล. ด้วยบัฟเฟอร์การฟักตัว (ซูโครส 250 มิลลิโมลาร์, 50 มิลลิโมลาร์ HEPES, 10 มิลลิโมลาร์ KH2PO4, 2 มิลลิโมลาร์ MgCl2, 1 มิลลิโมลาร์ EGTA, pH 7.4) . อะลิควอต (40 ไมโครลิตร) ของไมโตคอนเดรียถูกผสมกับไพรูเวต 15 มิลลิโมลาร์แต่ละตัว 100 ไมโครลิตรหรือซัคซิเนต 0.5 มิลลิโมลาร์และ MTT 0.42 มก./มล. ของผสมของปฏิกิริยาถูกบ่มที่ 37◦C เป็นเวลา 10 นาทีด้วยการเขย่าเบาๆ หลังจากการบ่ม ของผสมของปฏิกิริยาถูกยกเลิกโดยการเติมบัฟเฟอร์ไลซิส 100 ไมโครลิตร (10 เปอร์เซ็นต์, น้ำหนัก/ปริมาตร, โซเดียม โดเดซิล ซัลเฟต และไดเมทิลฟอร์มาไมด์ 45 เปอร์เซ็นต์, ถูกปรับเป็น pH 4.7 ด้วยกรดอะซิติก) หลังจากยืนเป็นเวลา 5 นาที การอ่านค่าการดูดกลืนแสงของส่วนผสมของปฏิกิริยาถูกอ่านด้วยเครื่องอ่านเพลตไมโครไทเทอร์ (Bio-Rad, Hercules, CA, USA) และรายงานเป็นความแตกต่างระหว่าง 570 nm และ 630 nm ข้อมูลแสดงเป็นเปอร์เซ็นต์ของค่าเฉลี่ยของกลุ่มควบคุม (เช่น Herba Cistanche–untreated)
การเพาะเลี้ยงเซลล์
เซลล์ H9c2 ซึ่งเป็นสายเซลล์ถาวรที่ได้มาจาก myoblasts ของหัวใจ (Hescheler et al., 1991) ถูกเพาะเลี้ยงเป็นชั้นเดี่ยวใน DMEM ที่เสริมด้วย FBS 10 เปอร์เซ็นต์ (v/v) อาหารมีกลูโคส (4.5 กรัม/ลิตร) และกลูตามีน (4.5 มิลลิโมลาร์) เสริมด้วย NaHCO3 (17 มิลลิโมลาร์) เพนิซิลลิน (100 IU/มล.) และสเตรปโตมัยซิน (100 ไมโครกรัม/มิลลิลิตร) เซลล์ทั้งหมดเติบโตภายใต้บรรยากาศ 5 เปอร์เซ็นต์ (v/v) CO2 ในอากาศที่ 37◦C สื่อถูกแทนที่ด้วยสื่อสดทุก 2 หรือ 3 วัน สต็อคของเซลล์ถูกปลูกในขวดเพาะเลี้ยงขนาด 75 ซม. 2 และแยกออกก่อนการบรรจบกันที่อัตราส่วนการย่อยที่ 1:10 สำหรับการสอบวิเคราะห์ ATP-GC เซลล์ H9c2 ถูกเพาะที่ความหนาแน่น 25 104 เซลล์/หลุมในจาน 24- หลุม หลังจากการแนบเซลล์ สารสกัด Herba Cistanche (ละลายในน้ำเกลือบัฟเฟอร์ฟอสเฟต; PBS) ถูกนำไปใช้ในตัวกลาง และเซลล์ถูกฟักไข่เพื่อเพิ่มระยะเวลา (2–16 ชั่วโมง) เซลล์ควบคุม (ที่ไม่บำบัด) ได้รับ PBS เท่านั้น
การวัด ATP-GC ในแหล่งกำเนิด
หลังจากระยะฟักตัวที่ระบุด้วยสารสกัด Herba Cistanche ที่ความเข้มข้นที่เพิ่มขึ้น (5{{10}}–300 ไมโครกรัม/มิลลิลิตร) การทดสอบ ATP-GC ถูกดำเนินการ สื่อถูกสำลักและเซลล์ถูกบำบัดด้วยดิจิโทนิน (50 ไมโครกรัม/มิลลิลิตร) ในบัฟเฟอร์การฟัก (120 มิลลิโมลาร์ KCl, 5 มิลลิโมลาร์ KH2PO4, 2 มิลลิโมลาร์ EGTA, 10 มิลลิโมลาร์ HEPES, 0.1 มิลลิโมลาร์ MgCl2, 0.5 เปอร์เซ็นต์ BSA, pH 7.4) สำหรับ 3 นาทีที่37◦C หลังจากการดูดดิโทนิน กลูตาเมต (5 มิลลิโมลาร์), มาเลต (5 มิลลิโมลาร์) และ ADP (60µM) ถูกเติมไปยังเซลล์สำหรับการสร้าง ATP ของไมโตคอนเดรีย ซึ่งถูกเฝ้าติดตามในช่วงเวลาที่เพิ่มขึ้นตั้งแต่ 0 ถึง 15 นาที ปฏิกิริยาถูกยุติโดยการเติม 60 ไมโครลิตรของกรดเปอร์คลอริก (30 เปอร์เซ็นต์ , น้ำหนัก/ปริมาตร) และของผสมของปฏิกิริยาจากนั้นถูกหมุนเหวี่ยงที่ 600 กรัม เป็นเวลา 10 นาทีที่4◦ซ ส่วนย่อย (120 ไมโครลิตร) ของส่วนลอยเหนือตะกอนถูกผสมกับ 90 ไมโครลิตรที่ 1.4 โมลาร์ KHCO3 สำหรับการทำให้เป็นกลาง ของผสมถูกหมุนเหวี่ยงอีกครั้งที่ 600 กรัมที่ 4◦ซ และส่วนลอยเหนือตะกอนถูกวัดสำหรับปริมาณ ATP ตามที่บรรยายไว้ก่อนหน้านี้ ATP-GC ของเซลล์ที่ไม่ได้รับการรักษาถูกประเมินโดยการคำนวณพื้นที่ใต้เส้นโค้งของกราฟ (AUC1) ซึ่งวางแผน ATP ที่สร้างขึ้น (โปรตีน nmol/mg) กับเวลา (0–15 นาที) และแสดงเป็นหน่วยใดก็ได้ สำหรับเซลล์ที่บำบัดด้วย Herba Cistanche ค่า AUC1 ของเวลาในการฟักตัวที่เพิ่มขึ้น (3, 5, 7, 10 และ 15 นาที) ถูกทำให้เป็นมาตรฐานเป็นค่าควบคุมเฉลี่ยตามลำดับจากตัวอย่างที่ไม่บำบัดและแสดงเป็นตัวควบคุมเปอร์เซ็นต์ จากนั้น พื้นที่ใต้เส้นโค้ง (AUC2) ของกราฟที่แสดงค่าเปอร์เซ็นต์การควบคุมเทียบกับเวลาฟักตัว (3–15 นาที) จะถูกคำนวณและแสดงออกมาในหน่วยตามอำเภอใจ ข้อมูลของกลุ่มที่บำบัดด้วย Herba Cistanche แสดงเป็นเปอร์เซ็นต์ของกลุ่มควบคุมจากสมการ:
[AUC2(HerbaCistanche −รับการรักษา)/AUC2(ไม่รักษา)]×100 เปอร์เซ็นต์
การวัดเชิงซ้อน I–IV และกิจกรรมการสังเคราะห์ซิเตรต
กิจกรรมคอมเพล็กซ์ I– III ของห่วงโซ่การขนส่งอิเล็กตรอนของไมโตคอนเดรีย (ETC) ถูกวัดโดยวิธีสเปกโตรโฟโตเมตริกโดยใช้ซับสเตรตเฉพาะเชิงซ้อน (NADH สำหรับคอมเพล็กซ์ I, ซัคซิเนตสำหรับคอมเพล็กซ์ II และเดซิลูบิควินอลสำหรับคอมเพล็กซ์ III) ตามที่อธิบายไว้ (Grad & Lemire, 2004; Hsu et คณะ, 2005; Mark et al., 2001) การออกฤทธิ์เชิงซ้อนของ IV ถูกวัดโดยใช้ชุดทดสอบไซโตโครม ซี ออกซิเดสจากซิกมา กิจกรรมการสังเคราะห์ไมโตคอนเดรียซิเตรตถูกวัดโดยวิธี Srere (1969)
การทดสอบโปรตีน
ความเข้มข้นของโปรตีนของเศษส่วนไมโตคอนเดรียและไลเสตของเซลล์ถูกกำหนดหาโดยใช้ชุดทดสอบโปรตีน BioRad โดยใช้อัลบูมินในซีรัมจากวัวเป็นมาตรฐาน ({{0}}.038–0.600 มก./มล.)
การวิเคราะห์ทางสถิติ
ข้อมูลทั้งหมดแสดงเป็นค่าความคลาดเคลื่อนมาตรฐานเฉลี่ยของค่าเฉลี่ย (SEM) วิเคราะห์โดยการวิเคราะห์ความแปรปรวนทางเดียว (ANOVA) การเปรียบเทียบหลายรายการหลังเสร็จสิ้นด้วย LSD ค่า P<0.05 were="" regarded="" as="" statistically="">
ผลลัพธ์
ผลของการรักษา Herba Cistanche ต่อกล้ามเนื้อหัวใจตาย ATP-GC ในหนูแรท
ดังแสดงในรูปที่ 1 การรักษาด้วยสารสกัดจาก Herba Cistanche ในขนาดสูงถึง 0.5 ก./กก. เพิ่ม ATP-GC ของไมโตคอนเดรียของกล้ามเนื้อหัวใจในลักษณะที่ขึ้นกับขนาดยาในหนูทดลอง โดยมีระดับของการกระตุ้นอยู่ที่ 89 เปอร์เซ็นต์ ที่ขนาดยา 0.5 ก./กก.
ผลของการรักษา Herba Cistanche ต่อการขนส่งอิเล็กตรอนในไมโตคอนเดรียในหัวใจของหนู
ขอบเขตของการขนส่งอิเล็กตรอนในไมโตคอนเดรียที่แยกได้วัดโดยการตรวจสอบการลดลงของ MTT ซับสเตรตที่ใช้สำหรับการทดสอบคือไพรูเวทหรือซัคซิเนต ดังที่แสดงไว้ในรูปที่ 2a การรักษาด้วย Herba Cistanche ขึ้นกับขนาดยาเพิ่มขอบเขตของการขนส่งอิเล็กตรอนในไมโตคอนเดรียที่สนับสนุนโดยไพรูเวตในหัวใจของหนู ด้วยการกระตุ้นที่เหมาะสมที่สุดที่สังเกตได้ในปริมาณ 0.5 ก./กก. อย่างไรก็ตาม ไม่พบการเปลี่ยนแปลงที่มีนัยสำคัญในขอบเขตของการขนส่งอิเล็กตรอนในไมโตคอนเดรียที่สนับสนุนโดยซัคซิเนตในหัวใจของหนูที่ได้รับการบำบัดด้วยสมุนไพร Herba Cistanche (รูปที่ 2b)
ผลของการรักษา Herba Cistanche ต่อกิจกรรมที่ซับซ้อนของระบบทางเดินหายใจในไมโตคอนเดรียในหัวใจของหนู
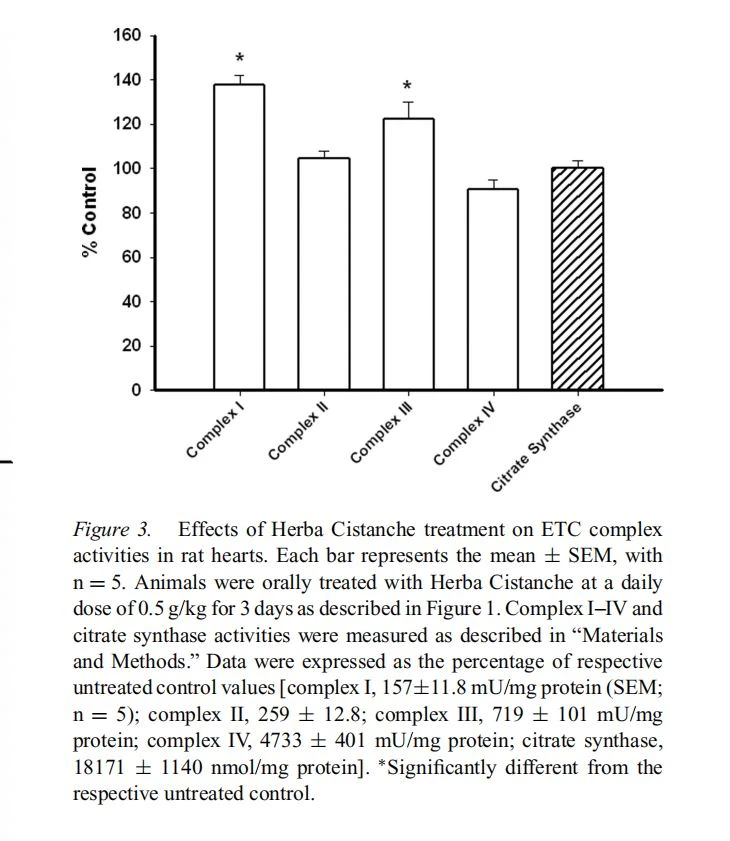
ดังแสดงในรูปที่ 3 การรักษาด้วย Herba Cistanche ในปริมาณที่เหมาะสม 0.5 ก./กก. ช่วยเพิ่มกิจกรรมเชิงซ้อน I (34 เปอร์เซ็นต์) และ III (22 เปอร์เซ็นต์) อย่างมีนัยสำคัญในหัวใจของหนู ฤทธิ์ของซิเตรตซินเทส ซึ่งเป็นเอ็นไซม์หลักสำหรับวัฏจักรกรดไตรคาร์บอกซิลิก ไม่ได้รับผลกระทบจากการบำบัดด้วยสมุนไพร Herba Cistanche (รูปที่ 3) การวิเคราะห์ Western blot ระบุว่าระดับโปรตีนของคอมเพล็กซ์ I และ III ไม่ได้รับผลกระทบจากการรักษาด้วย Herba Cistanche (ไม่แสดงข้อมูล)
ระยะเวลาของการเปลี่ยนแปลงที่เกิดจาก Herba Cistanche ใน mitochondrial ATP-GC ในเซลล์ H9c2
การเปลี่ยนแปลงใน ATP-GC ถูกตรวจสอบในเซลล์ที่บำบัดด้วย Herba Cistanche (50 และ 150 ไมโครกรัม/มิลลิลิตร) หลังการฟักตัว 2 ถึง 16 ชั่วโมง ดังที่แสดงในรูปที่ 4 การรักษาด้วย Herba Cistanche เพิ่ม ATP-GC ในลักษณะที่ขึ้นกับเวลาและแบบไบเฟสิกในเซลล์ H9c2 โดยมีการกระตุ้นสูงสุด (44 เปอร์เซ็นต์และ 89 เปอร์เซ็นต์ ตามลำดับ) สังเกตได้หลังจากการฟักตัว 8 ชั่วโมงสำหรับความเข้มข้นของยาทั้งสองชนิด จากนั้น ATP-GC จะกลับสู่ค่าควบคุมที่ไม่ได้รับการบำบัดเมื่อขยายเวลาฟักไข่เป็น 16 ชั่วโมง การกระตุ้นก่อนหน้านี้เกิดขึ้นเมื่อเซลล์ได้รับการรักษาด้วยสารสกัด Herba Cistanche ที่มีความเข้มข้นสูงกว่า (150 ไมโครกรัม/มล.)
ความเข้มข้นขึ้นอยู่กับ Herba
การเพิ่มขึ้นของ ATP-GC ที่เกิดจาก Cistanche ในเซลล์ H9c2
เซลล์ H9c2 ถูกบำบัดด้วยความเข้มข้นที่เพิ่มขึ้น (50–300 ไมโครกรัม/มิลลิลิตร) ของสารสกัด Herba Cistanche เป็นเวลา 4 ชั่วโมง รูปที่ 5 แสดงให้เห็นว่าการรักษาด้วย Herba Cistanche เพิ่ม ATP-GC ในลักษณะที่ขึ้นกับความเข้มข้น โดยมีการกระตุ้นสูงสุด (82 เปอร์เซ็นต์) ที่สังเกตได้ที่ความเข้มข้น 300 ไมโครกรัม/มิลลิลิตร

สารสกัดจาก Cistanche เพิ่มขึ้นในการผลิต ATP
การอภิปราย
การปรับกิจกรรมของเซลล์เพื่อเสริมสร้างการทำงานของร่างกาย เช่น การหดตัวของกล้ามเนื้อและการตอบสนองของภูมิคุ้มกันโดยการเติมพลังของ Yang ทำให้การบริโภค ATP เพิ่มขึ้น ซึ่งได้รับการสนับสนุนจากไมโตคอนเดรีย ออกซิเดชั่น ฟอสโฟรีเลชัน ในการศึกษาปัจจุบัน พบว่าการรักษาด้วย Herba Cistanche ช่วยเพิ่มความสามารถในการสร้าง mitochondrial ATP ex vivo ในหัวใจของหนู การสังเกตนี้สอดคล้องกับการค้นพบครั้งก่อนของเราว่าในบรรดาสมุนไพรจีนที่ให้ความชุ่มชื่นแก่หยาง การรักษาด้วย Herba Cistanche ทำให้เกิดการกระตุ้นการสร้าง ATP ของไมโตคอนเดรียในหัวใจของหนูในระดับที่ค่อนข้างใหญ่ (Ko et al., 2006) การเพิ่มประสิทธิภาพของการสร้าง ATP ของ mitochondrial นั้นควบคู่ไปกับการเพิ่มขึ้นของการขนส่งอิเล็กตรอนของ mitochondrial ที่ขับเคลื่อนโดย pyruvate แต่ไม่ succinate ตามที่ประเมินโดยการลด MTT ผลลัพธ์ที่ได้จากการวัดจลนศาสตร์ของคอมเพล็กซ์ไมโตคอนเดรีย I–IV ระบุว่ากิจกรรมของทั้งคอมเพล็กซ์ I และ III เพิ่มขึ้นในหัวใจที่ได้รับการรักษาด้วย Herba Cistanche โดยมีขอบเขตของการกระตุ้นกิจกรรมคอมเพล็กซ์ I มากกว่ากิจกรรมที่ซับซ้อน III เนื่องจากกิจกรรมของซิเตรตซินเทส ซึ่งเป็นเอ็นไซม์สำคัญของวัฏจักรกรดไตรคาร์บอกซิลิก ไม่ได้รับผลกระทบ การเพิ่มขีดความสามารถการสร้าง ATP ของไมโตคอนเดรียโดยการบำบัดด้วยสมุนไพรเฮอร์บา ซิสแทนเช่ อาจเนื่องมาจากการกระตุ้นของกิจกรรมเชิงซ้อน I และ/หรือ III เป็นหลัก ไมโทคอนเดรียตอบสนองความต้องการของ ATP ส่วนใหญ่ของหัวใจ ซึ่งเกือบทั้งหมดอาศัยการออกซิเดชันที่เชื่อมโยงกับคอมเพล็กซ์ I (NADH) ของกรดไขมันและกลูโคส (Stanley et al., 1997; Taegtmeyer, 1998) Complex I ซึ่งแสดงกิจกรรมที่ต่ำกว่าคอมเพล็กซ์ทางเดินหายใจอื่น ๆ ถือเป็นปัจจัยสำคัญในการควบคุมการออกซิเดชั่นฟอสโฟรีเลชั่น ดังนั้นการกระตุ้นหรือการยับยั้งกิจกรรมที่ซับซ้อน 1 อาจส่งผลกระทบอย่างมากต่อพลังของหัวใจ แม้ว่าการวิเคราะห์ Western blot จะไม่เปิดเผยการเปลี่ยนแปลงใดๆ ในระดับโปรตีนของสารเชิงซ้อนทั้งสองนี้ (ไม่แสดงข้อมูล) กิจกรรมของเอนไซม์ที่เพิ่มขึ้นอาจเป็นผลมาจากการเปลี่ยนแปลงสถานะโปรตีน thiol และ/หรือสภาพแวดล้อมของไขมัน (Davey et al., 1998; Paradies) และคณะ, 2004)
สารสกัดจากสมุนไพรเฮอร์บา ซิสแทนเชสามารถสร้างผลกระทบจากการสร้าง ATP ในเซลล์ H9c2 ที่เพาะเลี้ยงในแหล่งกำเนิดได้ เริ่มมีอาการค่อนข้างเร็วของการกระตุ้นที่เกิดจากการรักษาด้วย Herba Cistanche โดยเฉพาะอย่างยิ่งในขนาดที่สูง สอดคล้องกับการสังเกตจากการศึกษานอกร่างกายที่บ่งชี้ว่าการสังเคราะห์โปรตีนที่ซับซ้อน I และ III ไม่น่าจะเกี่ยวข้องกับการสร้าง ATP การกระทำ. การสาธิตการเพิ่มประสิทธิภาพที่เกิดจาก Herba Cistanche ในการสร้าง ATP ในสภาพแหล่งกำเนิดสนับสนุนแนวคิดที่ว่าการเพิ่มความสามารถในการสร้าง mitochondrial ATP ที่ประเมินโดยการวัด ex vivo อาจเพียงสะท้อนถึงผลคู่ขนานที่เกิดจากการรักษาด้วยยาในสภาพร่างกาย การวัดการสร้าง ATP ในไมโตคอนเดรียที่แยกได้และเซลล์ที่เพาะเลี้ยงโดยใช้มาเลตและกลูตาเมตเป็นซับสเตรตเป็นการวัดทางอ้อมของการหายใจแบบไมโตคอนเดรียของรัฐ 3 (Chen et al., 2003) การใช้การทดสอบ ATP แบบเรืองแสงแบบเดียวกัน อัตราการสร้าง ATP ของไมโตคอนเดรียในเนื้อเยื่อต่างๆ ของหนูที่ไม่ได้รับการรักษา ดังที่รายงานไว้ก่อนหน้านี้ในห้องปฏิบัติการของเรา (Leung et al., 2005) สอดคล้องกับข้อมูลที่เผยแพร่เมื่อเร็วๆ นี้ (Drew & Leeuwenburgh, 2003) ). ความสามารถในการสร้าง ATP ถูกประเมินโดยการรวมสองขั้นตอนของการเปลี่ยนแปลงที่ขึ้นกับเวลาในระดับ ATP ในการทดสอบทั้งภายนอกร่างกายและในแหล่งกำเนิด ดังนั้นผลการกระตุ้นจากยาที่สังเกตได้จึงขยายใหญ่ขึ้นเพื่อการเปรียบเทียบ การเพิ่มขีดความสามารถของการสร้าง ATP โดยการรักษาด้วย Herba Cistanche ในไมโตคอนเดรีย ex vivo ของหัวใจหนูนั้นควบคู่ไปกับการกระตุ้นการสร้าง ATP ในเซลล์ H9c2 ในแหล่งกำเนิด จากการมีอยู่ของกิจกรรมที่ส่งเสริมการสร้าง ATP ในสมุนไพรจีนที่กระตุ้น Yang-invigorating รวมถึง Herba Cistanche ใน mouse hearts ex vivo (Ko et al., 2006) ผลลัพธ์ที่ได้แนะนำว่าการวัดความสามารถในการสร้าง ATP ในเซลล์ H9c2 ใน situ อาจใช้เป็นการทดสอบทางเภสัชวิทยาสำหรับสมุนไพรจีนที่ให้พลังหยางหรือสูตรสมุนไพร
โดยสรุป การรักษาด้วยสารสกัด Herba Cistanche สามารถเพิ่มความสามารถในการสร้าง mitochondrial ATP ในหัวใจหนูนอกร่างกายและในเซลล์ H9c2 ในแหล่งกำเนิด ผลการวิจัยสนับสนุนสมมติฐานของเราว่าพื้นฐานทางเภสัชวิทยาของการเติมพลังหยางเกี่ยวข้องกับการเพิ่มประสิทธิภาพการทำงานของร่างกายผ่านการกระตุ้นการผลิต ATP ของไมโตคอนเดรีย
สารสกัด Herba Cistanche ช่วยเพิ่มความสามารถในการสร้าง ATP ของไมโตคอนเดรีย
อ้างอิง
Chen P (1998): สมุนไพรโทนิค. ซีรีส์ TCM ขั้นสูง ปักกิ่ง ประเทศจีน Science Press, pp. 233–320.
Chen Q, Vazquez EJ, Moghaddas S, Hoppel CL, Lesnefsky EJ (2003): การผลิตออกซิเจนชนิดปฏิกิริยาโดยไมโตคอนเดรีย: บทบาทสำคัญของคอมเพล็กซ์ III เจ ไบโอล เคม 278: 36027– 36031.
Cohen G, Farooqui R, Kesler N (1997): โรคพาร์กินสัน: การเชื่อมโยงใหม่ระหว่าง monoamine oxidase และการไหลของอิเล็กตรอนในไมโตคอนเดรีย Proc Natl Acad Sci สหรัฐอเมริกา 94: 4890–4894
Davey GP, Peuchen S, Clark JB (1998): เกณฑ์พลังงานในไมโตคอนเดรียในสมอง การมีส่วนร่วมที่อาจเกิดขึ้นในการเสื่อมสภาพของระบบประสาท เจ ไบโอล เคม 273: 12753–12757.
Drew B, Leeuwenburgh C (2003): วิธีการวัดการผลิต ATP ในไมโตคอนเดรียที่แยกได้: การผลิต ATP ในไมโตคอนเดรียสมองและตับของ Fischer-344 หนูที่มีอายุและจำกัดแคลอรี่ Am J Physiol Regul Integr Comp Phys-iol 285: R1259–R1267
Evan WH (1992): การแยกตัวและการกำหนดลักษณะของเยื่อหุ้มเซลล์และออร์แกเนลล์ของเซลล์ ใน: Rickwood D, ed. การเตรียมการหมุนเหวี่ยง: แนวทางปฏิบัติ New York, Oxford University Press, หน้า 223–270.
Grad LI, Lemire BD (2004): การกลายพันธุ์ของ Mitochondrial complex I ใน Caenorhabditis elegans ทำให้เกิดการขาด cytochrome c oxidase ความเครียดจากปฏิกิริยาออกซิเดชันและกรดแลคติกที่ตอบสนองต่อวิตามิน พันธุศาสตร์โมลมนุษย์ 13: 303–314
Hescheler J, Meyer R, Plant S, Krautwurst D, Rosenthal W, Schultz G (1991): ลักษณะทางสัณฐานวิทยา, ชีวเคมี, และอิเล็กโทรฟิสิกส์ของเซลล์โคลนัล (H9c2) จากหัวใจหนู Circ Res 69: 1476–1486
Hsu M, Srinivas B, Kumar J, Subramanian R, Andersen J (2005): การสูญเสียกลูตาไธโอนส่งผลให้เกิดการยับยั้ง mitochondrial complex I ในเซลล์ dopaminergic ผ่านวิถีทาง NO-mediated ซึ่งไม่เกี่ยวข้องกับ peroxynitrite: นัยสำหรับโรคพาร์คินสัน เจ นิวโรเคม 92: 1091– 1103
Ko KM, Leon TYY, Mak DHF, Chiu PY, Du Y, Poon MKT (2006): ฤทธิ์ทางเภสัชวิทยาเฉพาะของสมุนไพรจีน 'Yang-invigorating': การเพิ่มกำลังการผลิต ATP ของกล้ามเนื้อหัวใจ ไฟโตเมดิซีน 13: 636– 642
Ko KM, Mak DH, Chiu PY, Poon MKT (2004): พื้นฐานทางเภสัชวิทยาของ 'Yang-invigoration' ในการแพทย์แผนจีน. เทรนด์ Pharmacol Sci 25: 3–6
Lee CJ, Chuan S, Lee SL (1990): ศึกษาผลการต่อต้านริ้วรอยของ Cistanche deserticola Ma. เซี่ยงไฮ้ เจ ตราด ชิน เมด 11: 22–23.
Lei L, Song ZH, Tu PF, Li YZ, Wu LJ, Chen FK (2001): การควบคุมการเผาผลาญของ phenylethanoid glycosides จาก Herba cistanches ในทางเดินอาหารของสุนัข เหยาเสวี่ยซิวเปา 36: 432– 435
Leung HY, Chiu PY, Poon MKT, Ko KM (2005): สูตรสมุนไพรจีนที่เติมพลังให้หยางช่วยเพิ่มความสามารถในการทำงานของไมโตคอนเดรียและความสามารถในการต้านอนุมูลอิสระในเนื้อเยื่อต่างๆ ของหนูตัวผู้และตัวเมีย Rejuven Res 8: 238–247.
Lin LW, Hsieh MT, Tsai FH, Wang WH, Wu CR (2002): Antinociceptive และต้านการอักเสบที่เกิดจาก Cistanche Deserticola ในหนู J Ethnopharmacol 83: 177– 182
Lu MC (1998): การศึกษาผลของยากล่อมประสาทของ Cistanche deserticola J Ethnopharmacol 59: 161–165.
Mark A, Birch M, Douglass MT (2001): การทดสอบกิจกรรมที่ซับซ้อนของระบบทางเดินหายใจในไมโตคอนเดรียในไมโตคอนเดรียที่แยกได้จากเซลล์และเนื้อเยื่อของมนุษย์ เมธ เซลล์ ไบโอล 65: 97–117
Ouyang J, Wang X, Zhao B, Yuan X, Wang Y (2003): ผลกระทบของธาตุหายากต่อการเจริญเติบโตของเซลล์ Cistanche deserticola และการผลิต phenylethanoid glycosides เจ ไบโอเทค 102: 129–134.
Paradies G, Petrosillo G, Pistolese M, Di Venosa N, Federici A, Ruggiero FM (2004): กิจกรรม mitochondrial complex I ลดลงในหัวใจของหนูที่ขาดเลือด / reperfused: การมีส่วนร่วมของชนิดของออกซิเจนที่มีปฏิกิริยาและ cardiolipin Circ Res 94: 53– 59.
Srere PA (1969): ซิเตรตซินเทส วงจรกรดซิตริก เมธ เอ็นไซมอล 13: 3–11.
Stanley WC, Lopaschuk GD, Hall JL, McCormack JG (1997): ระเบียบของการเผาผลาญคาร์โบไฮเดรตของกล้ามเนื้อหัวใจในสภาวะปกติและขาดเลือด ศักยภาพในการแทรกแซงทางเภสัชวิทยา ความละเอียดของหัวใจและหลอดเลือด 33: 243–257
Taegtmeyer H (1998): เมแทบอลิซึมของสารตั้งต้นของพลังงานเป็นเป้าหมายสำหรับการรักษาด้วยยาในกล้ามเนื้อหัวใจขาดเลือดและ reperfused Metab หัวใจ 1: 5–9
Tian XF, Pu XP (2005): Phenylethanoid glycosides จาก Cistanches salsa ยับยั้งการตายของเซลล์ที่เกิดจาก 1-methyl-4- phenylpyridinium ion ในเซลล์ประสาท J Ethnopharmacol 97: 59–63.
Wu XM, Gao XM, Tsim KW, Tu PF (2005): arabinogalactan ที่แยกได้จากลำต้นของ Cistanche deserticola ทำให้เกิดการแพร่กระจายของเซลล์เม็ดเลือดขาวที่เพาะเลี้ยง Int J Biol Macromol 37: 278–282
Xiong Q, Hase K, Tezuka Y, Tani T, Namba T, Kadota S (1998): กิจกรรม Hepatoprotective ของ phenylethanoids จาก Cistanche deserticola Planta Med 64: 120– 125
Xiong Q, Kadota S, Tani T, Namba T (1996): ฤทธิ์ต้านอนุมูลอิสระของ phenylethanoids จาก Cistanche deserticola Biol Pharm Bull 19: 1580–1585.