วัคซีนเยื่อเมือก ภูมิคุ้มกันฆ่าเชื้อ และอนาคตของไวรัส SARS-CoV-2
Apr 06, 2023
เชิงนามธรรม:
การฆ่าเชื้อภูมิคุ้มกันหลังการฉีดวัคซีนเป็นสิ่งที่พึงปรารถนาเพื่อป้องกันการแพร่กระจายของการติดเชื้อจากวัคซีน ซึ่งอาจเป็นอันตรายอย่างยิ่งในสถานพยาบาลในขณะที่ดูแลผู้ป่วยที่อ่อนแอ การทำให้ภูมิคุ้มกันปราศจากเชื้อจำเป็นต้องมีการทำให้แอนติบอดีเป็นกลางที่ตำแหน่งที่มีการติดเชื้อ ซึ่งสำหรับไวรัสทางเดินหายใจ เช่น SARS-CoV-2 หมายถึงการเกิดขึ้นของ IgA ที่ทำให้เป็นกลางในสารคัดหลั่งของเยื่อเมือก การฉีดวัคซีนอย่างเป็นระบบโดยการฉีดเข้ากล้ามเนื้อไม่ก่อให้เกิดการทำให้ IgA เป็นกลางหรือมีไตเตรทต่ำต่อแอนติเจนของวัคซีน จำเป็นต้องมีการเตรียมเยื่อเมือกหรือการส่งเสริมเพื่อให้ภูมิคุ้มกันฆ่าเชื้อ
ในอีกด้านหนึ่ง การทำให้ภูมิคุ้มกันปราศจากเชื้อโดยการทำให้การแพร่เชื้อระหว่างมนุษย์เป็นศูนย์ อาจกัก SARS-CoV-2 ไว้ในแหล่งกักเก็บของสัตว์ ป้องกันการลดลงของความรุนแรงในมนุษย์โดยธรรมชาติ ซึ่งสันนิษฐานว่าเกิดขึ้นกับไวรัสโคโรนาประจำถิ่น เราตรวจสอบข้อดีและข้อเสียของกลยุทธ์การให้วัคซีนแต่ละวิธี วัคซีน SARS-CoV ชนิดเยื่อเมือกในปัจจุบัน-2 ที่อยู่ระหว่างการพัฒนา และผลกระทบต่อสุขภาพของประชาชน
นอกจากการเสริมสร้างภูมิคุ้มกันด้วยความช่วยเหลือของวัคซีนแล้ว หากอาหารของเราไม่ดีต่อสุขภาพ ขาดการออกกำลังกาย เราวิตกกังวลบ่อยและขาดการพักผ่อน และเราจะป่วยได้ง่าย บางครั้งเกิดจากสาเหตุบางอย่างที่ไม่ทราบสาเหตุ อาจเกิดจากการขาดการดูแลสุขภาพที่เหมาะสม ระบบภูมิคุ้มกันของร่างกายก็อ่อนแอลงได้เช่นกัน ระบบภูมิคุ้มกันเป็นด่านแรกในการป้องกันโรค ดังนั้นเราจึงควรปรับปรุงภูมิคุ้มกันของเรา นอกจากนี้ การศึกษายังพบว่าพอลิแซ็กคาไรด์ที่อุดมไปด้วย Cistanche สามารถต้านฤทธิ์ยับยั้งของ isoprenaline (ISO) และ dexamethasone (DEX) ต่อการเพิ่มจำนวนของลิมโฟไซต์ที่ความเข้มข้นสูงขึ้น และต้านฤทธิ์ยับยั้งของสารยับยั้งเนื้องอกที่มีความเข้มข้นสูงต่อการแพร่กระจายของลิมโฟไซต์ ด้วยตัวยับยั้งเนื้องอกที่มีความเข้มข้นต่ำ - เพื่อส่งเสริมการเพิ่มจำนวนของเซลล์เม็ดเลือดขาวเพื่อเพิ่มภูมิคุ้มกัน
คลิก cistanche tubulosa extract ผลิตภัณฑ์ผง
คำสำคัญ:
โควิด-19; SARS-CoV-2}}; แอนติบอดีที่เป็นกลาง; BNT162b2; mRNA-1273; ไอจีเอ; ไอจีจี; ภูมิคุ้มกันฆ่าเชื้อ; วัคซีนเยื่อเมือก; วัคซีนฉีดเข้าจมูก; วัคซีนในช่องปาก
1. บทนำ
ปัจจุบันได้รับการอนุมัติ วัคซีนโควิด-19 ฉีดเข้ากล้าม (สรุปในรูปที่ 1) ลดความรุนแรงของโรคและกรณีที่แสดงอาการได้อย่างมีประสิทธิภาพ แต่ยังคงอนุญาตให้มีการติดเชื้อที่ไม่แสดงอาการ สิ่งที่เกี่ยวข้องมากที่สุดจากมุมมองทางระบาดวิทยาคือวัคซีนเหล่านี้อนุญาตให้แพร่เชื้อ SARS-CoV-2 และความสามารถของไวรัสในการทำซ้ำในโฮสต์ที่ได้รับวัคซีนนั้นมีศักยภาพในการเลือกสายพันธุ์ที่ดื้อต่อวัคซีน วัคซีนโควิด-19 ในปัจจุบันกระตุ้นแอนติบอดีของคลาส IgG เป็นหลัก (ส่วนใหญ่มาจากคลาสย่อย IgG1 และ IgG3 [1]) และ IgA ในระบบทางเดินหายใจเพียงเล็กน้อยหรือไม่มีเลย
แม้ว่าโดยทั่วไปแล้วระดับ IgG จะถูกตรวจสอบในซีรั่มเพื่อประเมินภูมิคุ้มกัน แต่ไอโซไทป์นี้ไม่เหมือนกับ IgA คือไม่ถูกหลั่งเข้าไปในเยื่อเมือกผ่านตัวรับ Ig โพลิเมอร์ (pIgR) และต้องอาศัยการขนส่งแบบพาสซีฟเพื่อสะสมที่ไซต์เหล่านี้ หลังจากการบริหาร IgG อย่างเป็นระบบ มีเพียงหนึ่งใน 1,000 โมเลกุลในซีรั่มเท่านั้นที่ไปถึงของเหลวล้างหลอดลม (BAL) [2–4] ดังนั้น IgG ที่ผสมเทียมกับเปปไทด์ที่จับกับ pIgR จึงมีอยู่ในสารคัดหลั่งจากระบบทางเดินหายใจมากกว่าและมีการป้องกันมากกว่าในแบบจำลองที่ท้าทายสัตว์ [5]
เนื่องจาก IgG ในซีรั่มไม่สามารถแทรกซึมเข้าไปในเยื่อเมือกได้อย่างมีประสิทธิภาพ และการวัดซีรั่มของ IgG ที่ได้รับวัคซีนจะไม่สะท้อนถึงการป้องกันการติดเชื้อทางเดินหายใจ อย่างไรก็ตาม หลังจากการฉีดวัคซีนเข้ากล้ามเนื้อแล้ว การอักเสบที่ตามมาจะกระตุ้นการย้ายถิ่นของหน่วยความจำ-B-เซลล์ และการหลั่งของ IgA ที่บริเวณเยื่อเมือก [6] นอกจากนี้ การอักเสบใดๆ ในทางเดินหายใจจะช่วยเพิ่มการซึมผ่านของแอนติบอดีในซีรั่มไปยังตำแหน่งดังกล่าว ภูมิคุ้มกันในซีรั่มสามารถให้การป้องกันในระยะเริ่มต้นของการติดเชื้อที่กำลังพัฒนา ดังนั้น การฉีดวัคซีนเข้ากล้ามเนื้อจึงช่วยป้องกันทางเดินหายใจจากโรคซาร์ส-โควีได้ในระดับหนึ่ง-2 ซึ่งเห็นได้จากการลดลงของโรคที่แสดงอาการหลังการติดเชื้อ

การติดเชื้อที่ไม่แสดงอาการคิดเป็น 1 ใน 3 ของ SARS-CoV-2-การตรวจ Nasopharyngeal swabs (NPS) ที่เป็นบวก และเกือบ 75 เปอร์เซ็นต์ของผู้ป่วยที่ไม่แสดงอาการ ในขณะที่ NPS เป็นบวกจะยังคงไม่แสดงอาการ [7] การประมาณการเหล่านี้มีแนวโน้มที่จะสูงขึ้นในวัคซีน ซึ่งแสดงให้เห็นการติดเชื้อที่ก้าวหน้าในอาสาสมัครที่ไม่แสดงอาการ [8] บุคคลอาจรู้สึกสบายดี แต่มีการจำลอง SARS-CoV-2 ในเยื่อบุโพรงหลังจมูกและสามารถแพร่เชื้อไปยังผู้อื่นได้ เนื่องจากการทดสอบ PCR รายวันอย่างเป็นระบบอาจรุกรานเกินไปและมีค่าใช้จ่ายสูงในการทดลองแบบสุ่มที่มีกลุ่มควบคุม (RCT) ผู้วิจัยหลายคนจึงสนับสนุนการใช้ NPS PCR แบบสุ่มเพื่อปรับปรุงการประเมินประสิทธิภาพของวัคซีน (VE) ต่อการติดเชื้อ SARS-CoV-2 การวัดปริมาณไวรัสดังกล่าวยังสามารถใช้เพื่อประเมินประสิทธิภาพต่อการแพร่เชื้อ โดยสมมติว่ามีความสัมพันธ์ระหว่างปริมาณไวรัสและการแพร่เชื้อ [9]
การสนับสนุนมุมมองนี้เพิ่มเติมคือข้อมูลจากโมโนโคลนอลแอนติบอดี (mAb) ที่ได้รับการอนุมัติทางคลินิกไปยังโปรตีนสไปค์—การฉีดสารต้าน SARS-CoV เข้าทางหลอดเลือดดำหรือใต้ผิวหนัง-2 mAbs นำไปสู่การดูดซึมทางชีวภาพที่ต่ำกว่าปกติในทางเดินหายใจ ยับยั้ง SARS-CoV-2 การจำลองแบบและการบาดเจ็บของปอด แต่ทำให้มีการติดเชื้อที่รุนแรงในกังหันจมูกในสัตว์จำลอง [10] ด้วยเหตุผลนี้ การจัดส่งเฉพาะที่ของ anti-SARS-CoV-2 mAbs กำลังถูกตรวจสอบ [11]
เราจะหารือเกี่ยวกับกลยุทธ์ในการป้องกันสถานะพาหะที่ไม่แสดงอาการในวัคซีน (เช่น วิธีการกระตุ้นสิ่งที่เรียกว่า "ภูมิคุ้มกันฆ่าเชื้อ") และความเสี่ยงทางทฤษฎีของแนวทางนี้
2. ความแตกต่างระหว่างการติดเชื้อและโรค
คำถามง่ายๆ นี้ยากที่จะตอบได้อย่างแม่นยำ วัคซีนกระตุ้นการตอบสนองทางภูมิคุ้มกันที่มีอยู่เมื่อโฮสต์พบจุลินทรีย์ที่เฉพาะเจาะจง เพื่อตรวจสอบวิธีการทำงานของวัคซีน สิ่งสำคัญคือต้องแยกแยะระหว่างการติดเชื้อและโรค การติดเชื้อคือการได้มาซึ่งจุลินทรีย์โดยโฮสต์ในขณะที่โรคเป็นสถานะของปฏิสัมพันธ์ระหว่างโฮสต์และจุลินทรีย์เมื่อโฮสต์ได้รับความเสียหายเพียงพอที่จะส่งผลกระทบต่อสภาวะสมดุล [12] สำหรับวัคซีนที่ประสบความสำเร็จส่วนใหญ่ การวัดประสิทธิภาพคือการลดลงของโรคเนื่องจากไม่ได้วัดความถี่ของการติดเชื้อ วัคซีนปัจจุบันส่วนใหญ่กระตุ้นการตอบสนองของ T-lymphocyte และ IgG เป็นหลัก ซึ่งป้องกันการติดเชื้อในระบบ ร็อบบินส์และคณะ เสนอว่าวัคซีนทำหน้าที่โดยการทำให้หัวเชื้อที่ติดเชื้อเป็นกลาง และกระบวนการนี้ต้องการแอนติบอดีจำนวนหนึ่ง [13]
หากตำแหน่งที่อาจเกิดการติดเชื้อครั้งแรกเป็นตำแหน่งที่เข้าถึงได้ของซีรั่ม IgG วัคซีนก็จะสามารถป้องกันการติดเชื้อได้ แต่ในกรณีส่วนใหญ่ วัคซีนจะป้องกันโรคโดยการลดหัวเชื้อ ซึ่งจะช่วยลดความเสียหายของโฮสต์และโอกาสในการเกิดโรค ในกรณีของ SARS-CoV-2 มีหลักฐานว่าการติดเชื้อเริ่มต้นและการจำลองแบบเกิดขึ้นในเซลล์ ciliated จมูก [14] ซึ่งเป็นตำแหน่งที่ไม่สามารถเข้าถึงซีรั่ม IgG เว้นแต่จะมีความเสียหายจากการอักเสบต่อเนื้อเยื่อเยื่อเมือกที่ ช่วยให้การถ่ายทอดโปรตีนในซีรั่มไปยังไซต์ ดังนั้น วัคซีนป้องกันโควิดในปัจจุบัน-19จึงป้องกันโรคได้ แต่ไม่ใช่การติดเชื้อ
3. ภูมิคุ้มกันฆ่าเชื้อทำงานอย่างไร
การทำให้ภูมิคุ้มกันปราศจากเชื้อจำเป็นต้องทำให้ระบบภูมิคุ้มกันในร่างกายเป็นกลางในเวลาที่เหมาะสมของผู้บุกรุกที่ท้าทาย นี่หมายความว่าแอนติบอดีมักจะมีความเกี่ยวข้องมากกว่าภูมิคุ้มกันที่สร้างจากเซลล์ อย่างน้อยก็สำหรับไวรัสและจุลินทรีย์ที่การติดเชื้อสามารถถูกแทรกแซงได้โดยตรงจากแอนติบอดีจำเพาะ บนเยื่อบุทางเดินหายใจ IgA เป็นกลุ่มแอนติบอดีที่มีประสิทธิภาพมากที่สุด สารคัดหลั่ง IgA (sIgA) ประกอบด้วย IgA ชนิดไดเมอริก สายโซ่ J และส่วนประกอบสารคัดหลั่ง จะถูกหลั่งจากต่อมต่างๆ (เช่น ต่อมน้ำลายหรือต่อมน้ำนม) และเนื้อเยื่อน้ำเหลืองที่เกี่ยวข้องกับเยื่อเมือก (MALT) ไปยังเยื่อเมือก ซึ่งจะทำให้เชื้อโรคเป็นกลาง
สิ่งที่น่าสนใจคือ sIgA ในน้ำนมแม่ของมนุษย์ก่อนเกิดโรคระบาด [15,16] และน้ำลาย [17] ทำปฏิกิริยาข้ามกับ SARS-CoV-2 แต่ยังไม่ทราบว่าภูมิคุ้มกันต่างชนิดกันดังกล่าวจะป้องกันได้หรือไม่ sIgA ซึ่งมีครึ่งชีวิตสั้น 6.3 วัน ยังเป็นตัวแทนไบโอมาร์คเกอร์ที่มีประโยชน์ในการพิจารณาการติดเชื้อ SARS-CoV-2 ล่าสุด ภูมิคุ้มกันของเยื่อเมือกยังถูกใช้เพื่อการบำบัดด้วยภูมิคุ้มกันแบบพาสซีฟ ตัวอย่างเช่น นักวิจัยหลายคนเสนอ IgY ที่กินได้ [18] หรือ intranasal [19] ที่ได้จากไข่สำหรับการบำบัดด้วยภูมิคุ้มกันแบบพาสซีฟ และการแสดงออกของแอนติเจนของไวรัสในใบของพืชที่กินได้ (เช่น ผักกาดหอม) ก็กำลังถูกตรวจสอบเพื่อกระตุ้นให้เกิดภูมิคุ้มกันเช่นกัน [20] ในทำนองเดียวกัน แอนติบอดีโดเมนเดียวที่มีความจำเพาะแบบคู่ที่สูดดมได้จะทำให้ Omicron เป็นกลางในรูปแบบเมาส์ [21]

4. ความสำเร็จในอดีตทางคลินิกกับวัคซีนเยื่อเมือก
พื้นผิวเยื่อเมือกจำนวนมากเป็นตำแหน่งที่มีศักยภาพในการนำส่งวัคซีน (เช่น เยื่อบุตา จมูก ช่องปาก ปอด ช่องคลอด และทวารหนัก); อย่างไรก็ตาม เหตุผลด้านลอจิสติกส์และวัฒนธรรมทำให้นักวิจัยมุ่งเน้นไปที่ช่องปาก จมูก และเส้นทางปอดเป็นส่วนใหญ่ [22] วัคซีนเยื่อเมือกทางเดินหายใจมีข้อได้เปรียบเชิงปฏิบัติหลายประการเหนือวิธีการฉีดวัคซีนแบบดั้งเดิม อำนวยความสะดวกในการรณรงค์ให้ฉีดวัคซีนจำนวนมาก [23] — เพิ่มความคงตัวของวัคซีนและอายุการเก็บรักษาสำหรับวัคซีนผงแห้ง การคลอดที่ไม่เจ็บปวดโดยใช้เครื่องพ่นยาแบบใช้แล้วทิ้งที่บ้าน [24] (ซึ่งช่วยลดข้อกำหนดสำหรับ บุคลากรทางการแพทย์ที่ผ่านการฝึกอบรม) และสัญญาว่าจะกระตุ้นการตอบสนองทางภูมิคุ้มกัน รวมทั้ง sIgA [23]
ตัวอย่างของวัคซีนเยื่อเมือกที่ประสบความสำเร็จทางคลินิกจากไวรัสที่ถูกทำให้อ่อนฤทธิ์ ได้แก่ วัคซีนสำหรับไวรัสในทางเดินอาหารในช่องปาก (ไวรัสโปลิโอและโรตา) และวัคซีนฉีดเข้าจมูกสำหรับไวรัสทางเดินหายใจ (ไวรัสไข้หวัดใหญ่และไวรัสอะดีโน)
วัคซีนโปลิโอที่ประสบความสำเร็จเป็นครั้งแรกที่พัฒนาโดย Jonas Salk ในปี พ.ศ. 2498 ถูกระงับการใช้งานและฉีดเข้ากล้ามเนื้อ เช่นเดียวกับวัคซีนโควิด-19 ในปัจจุบัน วัคซีนนี้ช่วยลดความเสี่ยงของการเจ็บป่วย แต่ไม่สามารถป้องกันการติดเชื้อได้ ในปี พ.ศ. 2503 อัลเบิร์ต ซาบินได้พัฒนาวัคซีนป้องกันโรคโปลิโอทางปากโดยใช้สายพันธุ์โปลิโอที่ลดทอนสามสายพันธุ์ วิธีการนี้นำไปสู่การกำจัดโรคโปลิโอทั่วโลกไปเกือบหมดสิ้น โดยมีรายงานผู้ป่วยเพียง 140 รายในปี 2563 ในปากีสถานและอัฟกานิสถาน อย่างไรก็ตาม การรวมตัวกันอีกครั้งของสายพันธุ์ที่ลดทอนกับไวรัสโปลิโอป่าทำให้เกิดการระบาดในท้องถิ่นที่เกิดจากไวรัสโปลิโอชนิดที่ 2 ที่รวมอยู่ในวัคซีนไตรวาเลนต์ทางปาก (เรียกว่าไวรัสโปลิโอที่ได้จากวัคซีน (cVDPDV2)) โดยมีผู้ป่วย 1,089 รายใน 26 ประเทศในปี 2563 สิ่งนี้สนับสนุน หลังเดือนเมษายน 2559 การกำจัดสายพันธุ์จากวัคซีนไตรวาเลนต์ทางปาก และในที่สุดการกลับไปใช้วัคซีนที่ไม่ได้ใช้งาน [25,26]
วัคซีนโรตาไวรัสทางปากถูกนำมาใช้ในเด็กมาระยะหนึ่งแล้ว ซึ่งแสดงให้เห็นถึงประสิทธิภาพและความปลอดภัยสูง [27,28]
วัคซีนไข้หวัดใหญ่ชนิดฉีดเข้าจมูกถูกนำมาใช้ครั้งแรกในทศวรรษที่ 1960 ในอดีตสหภาพโซเวียต วัคซีนป้องกันไข้หวัดใหญ่ชนิดฉีดเข้าจมูกที่ได้รับอนุญาตสำหรับมนุษย์โดยใช้เนื้อเยื่อน้ำเหลืองที่เกี่ยวข้องกับโพรงจมูก (NALT) ได้แก่ FluMist/Fluenz™ (MedImmune, Gaithersburg, MD, USA) [29] และ Nasovac™ สเปรย์ฉีดจมูกแบบลดทอนชีวิตที่ผลิตโดย Serum Institute of India สถาบันเดียวกันยังได้พัฒนาวัคซีนป้องกันไข้หวัดใหญ่สายพันธุ์ A (H1N1) แบบฉีดเข้าจมูก [30] ไม่มีผู้ผลิตวัคซีนไข้หวัดใหญ่รายใหญ่รายใดที่มีส่วนร่วมกับวัคซีนเยื่อเมือก ดังนั้นการฉีดไข้หวัดใหญ่ส่วนใหญ่ในทุกวันนี้จึงยังคงฉีดเข้ากล้ามเนื้อ
Oral vaccines against wild-type adenovirus serotype 4 and 7 (Ad4 and Ad7) were developed by the National Institutes of Health (NIH) and the US Department of Defense (DoD) in the 1970s. They were originally co-administered [31,32] and then re-formulated in 2011 [33–37]. Both vaccines have increased safety since they do not disseminate systemically while inducing systemic serum homotypic nAb [34,36,37], and providing >ประสิทธิภาพ 90 เปอร์เซ็นต์ต่อการเจ็บป่วยที่ 12 สัปดาห์ [33,34,36,37] ซึ่งมีความทนทานอย่างน้อย 6 ปี [38]
ดังนั้นวัคซีนที่ให้ทางเยื่อเมือกจึงมีประสิทธิภาพและใช้ในทางคลินิก วัคซีนเหล่านี้เป็นแบบอย่างที่สำคัญในการควบคุมการแพร่ระบาดของโควิด-19 และให้กำลังใจที่ดีว่าวัคซีนที่คล้ายคลึงกันนี้สามารถนำไปใช้กับ SARS-CoV ได้-2
5. แอนติบอดี IgA มีบทบาทสำคัญในการทำให้ SARS-CoV เป็นกลาง-2 แต่ไม่ค่อยถูกกระตุ้นหลังจากการฉีดวัคซีนเข้ากล้ามเนื้อ
การติดเชื้อ SARS-CoV ตามธรรมชาติ-2 มักจะหายได้ด้วยการปรากฏตัวของ IgA โมโนเมอร์ในซีรั่ม กิจกรรมการทำให้เป็นกลางส่วนใหญ่ใน convalescent plasma อยู่ใน IgM และ IgA เศษส่วน [39,40] อย่างไรก็ตาม ในขณะที่โปรตีน IgG ถึง Spike ในซีรั่มยังคงมีอยู่ใน 92 เปอร์เซ็นต์ของผู้เข้าร่วมหลังจาก 7 เดือน แอนติบอดีในซีรั่ม IgA (และ IgM) จะลดลงอย่างรวดเร็วหลังจากเดือนแรกหลังเริ่มเกิดโรค [41–43]
Dimeric IgA ที่หลั่งออกมามีบทบาทพื้นฐานในการทำให้ SARS-CoV เป็นกลางเหมือนกัน-2 [44]—หลังการติดเชื้อ ระดับ IgA ในเลือดที่สูงมากจะพัฒนาในผู้ป่วยที่มี COVID รุนแรง-19-ที่เกี่ยวข้องกับกลุ่มอาการหายใจลำบากเฉียบพลัน (ARDS) [45] และ IgA ที่จำเพาะต่อสไปค์นั้นโดดเด่นในน้ำนมแม่ [15,16,46]
In general, intramuscularly delivered vaccines induce poor mucosal IgA responses. After the first immunization, BNT162b2 induces anti-Spike IgG1, IgG3, and IgA1 (and sometimes IgG2 and IgA2) in serum, but only IgG in saliva. One to two weeks after the second dose, IgG levels in saliva and the upper respiratory tract are boosted, while IgA appears in some subjects [47]. Serum IgA has kinetics of induction and time to peak levels (21 days after the first dose and 7–10 days after the second dose) that are similar to IgG, but a faster decline (>ลดลงร้อยละ 23 จากจุดสูงสุดในแต่ละวัน บวก 80 หลังการให้ยาครั้งแรก) [48]
สำหรับน้ำนมแม่ของมนุษย์ โปรไฟล์ไอโซไทป์จะแตกต่างกันในการตอบสนองของแอนติบอดีหลังโควิด-19 และหลังการฉีดวัคซีน ตรงกันข้ามกับการติดเชื้อตามธรรมชาติ การสร้างภูมิคุ้มกันด้วยวัคซีน mRNA ในระหว่างการให้นมจะเพิ่มระดับ IgA ของโดเมนต่อต้านตัวรับ (RBD) ในน้ำนม [49,50] แต่ไม่อยู่ในซีรั่ม [50] แต่น่าเสียดายที่เท่านั้น<10% of milk samples from vaccinees have high IgA endpoint titers, but secretory antibody released in milk is both stable and resistant to enzymatic degradation in neonatal mucosal tissues [3,4].
ความขาดแคลนของ IgA หลังจากการฉีดวัคซีนที่ไม่ใช่เยื่อเมือกบ่งชี้ว่าผู้ป่วยที่ได้รับวัคซีนตามระบบ ทั้งที่มีอาการเล็กน้อยหรือไม่แสดงอาการก็ยังอาจติดเชื้อ SARS-CoV ได้-2 ยังไม่มีหลักฐานแน่ชัดว่าวัคซีนที่ติดเชื้อโดยไม่แสดงอาการจะติดเชื้อหรือไม่ เนื่องจากตามทฤษฎีแล้ว virions อาจมีภูมิคุ้มกันที่ซับซ้อนและไม่ติดเชื้อ [51–54] แต่ปริมาณไวรัสที่คล้ายคลึงกันซึ่งพบใน NPS จากวัคซีนที่ติดเชื้อเทียบกับผู้ติดเชื้อพื้นเมืองบ่งชี้ว่ามี ความเสี่ยงร้ายแรงของการแพร่เชื้อ อย่างไรก็ตาม ผู้ที่ได้รับวัคซีนที่มีการติดเชื้อที่แสดงอาการ (เช่น ลุกลาม) จะแพร่เชื้อ SARS-CoV ได้-2 [55] มีรายงานกรณี COVID ที่ไม่รุนแรง-19 ในวัคซีนของมนุษย์ที่มีการติดเชื้อไวรัสในคนซึ่งมี PCR เป็นบวกในเมทริกซ์ทางชีวภาพที่แตกต่างกัน (เช่น ก้อนตรวจทางทวารหนัก) ก็มีรายงานเช่นกัน [56] และแนะนำว่าการติดเชื้อในวัคซีนเหล่านี้ไม่จำกัดเฉพาะในช่องจมูก กรณีของพาหะที่ไม่แสดงอาการและได้รับวัคซีนเป็นเรื่องที่น่ากังวลเป็นพิเศษภายในโรงพยาบาล [8] ซึ่งผู้ป่วยที่เข้ารับการรักษาในคลินิกและขั้นตอนการผ่าตัด endonasal มักสร้างละอองลอย [57]
วัคซีนที่เป็นระบบทั้งหมดไม่ได้มีประสิทธิภาพเท่าเทียมกันในการกระตุ้น IgA ของเยื่อเมือก ตัวอย่างเช่น BNT162b2 แต่ไม่ใช่ CoronaVac กระตุ้นให้เกิดการตอบสนองของ anti-S1 IgA ทางจมูกได้เร็วที่สุด 14 วันหลังการให้ยาครั้งแรกใน 72 เปอร์เซ็นต์ของอาสาสมัคร ซึ่งคงอยู่นานถึง 50 วันหลังจากให้ยาครั้งที่สองใน 45 เปอร์เซ็นต์ของอาสาสมัคร [58] และยังกระตุ้น IgA ในนมแม่ด้วย [59] อย่างไรก็ตาม ระดับ IgA ในเยื่อเมือกที่เกิดจาก BNT162b2 หรือ mRNA-1273 นั้นต่ำหลังจากได้รับครั้งแรกและลดลงหลังจากได้รับครั้งที่สอง

6. จำเป็นต้องมีการส่งวัคซีนทางระบบทางเดินหายใจเพื่อให้ได้ภูมิคุ้มกันฆ่าเชื้อโรคจาก SARS-CoV-2
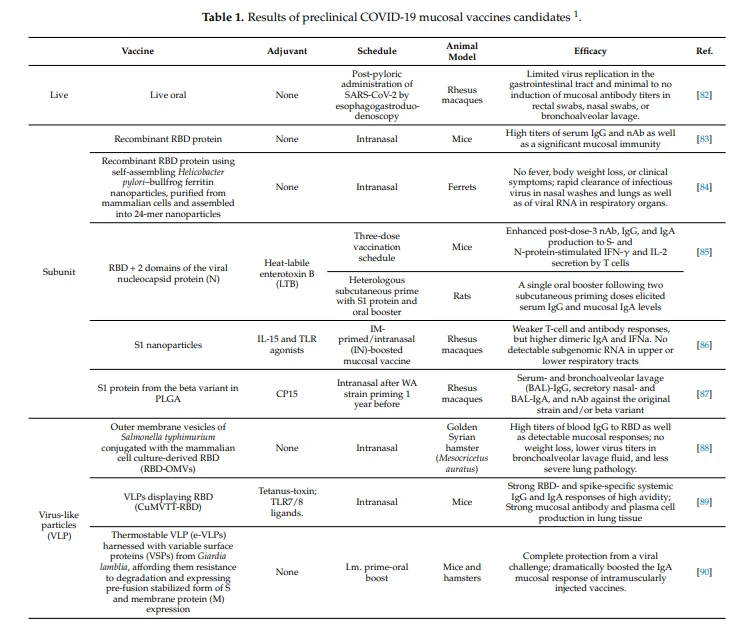
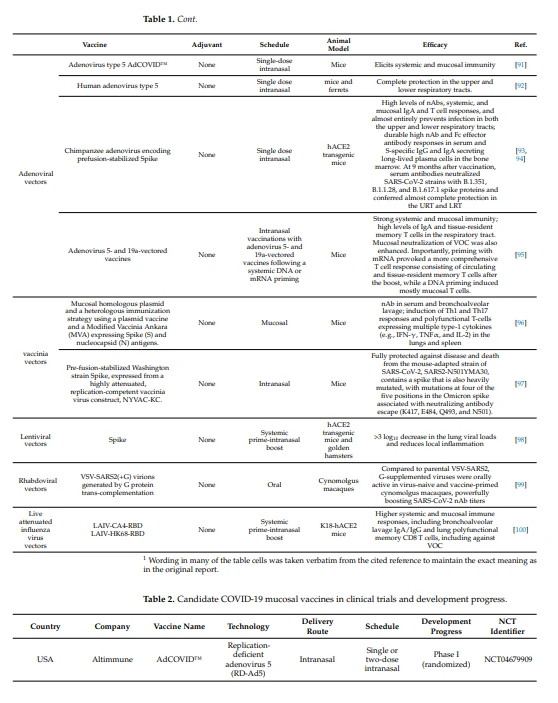
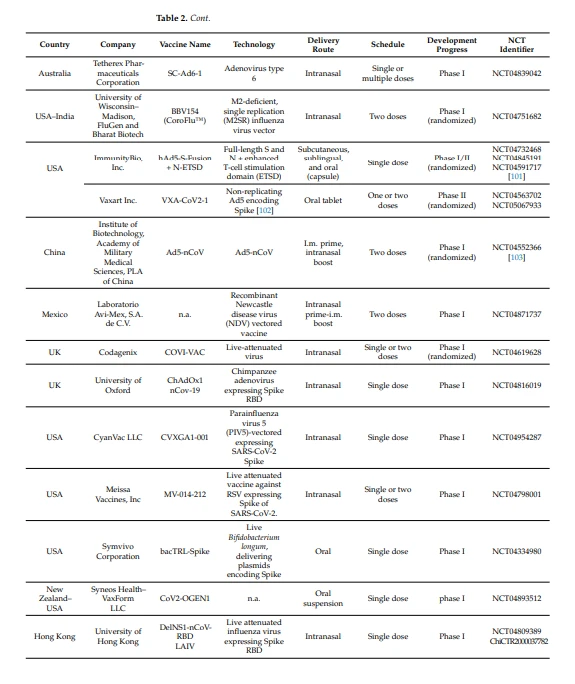
แบบจำลองสัตว์ที่เกี่ยวข้องกับไวรัสโคโรนาที่เกี่ยวข้อง SARS-CoV [60–70] และ MERSCoV [60,71–74] แสดงให้เห็นว่าการฉีดวัคซีนเยื่อเมือกทำให้เกิดภูมิคุ้มกันทั้งระบบและเยื่อเมือกที่ยาวนาน หลักฐานเบื้องต้นจากการศึกษาในสัตว์ฟันแทะ (หนู โกลเด้นแฮมสเตอร์ และเฟอเร็ต) ให้ผลบวกต่อ SARS-CoV ในทำนองเดียวกัน-2 (ตรวจสอบใน [23,75–79] และสรุปไว้ในตารางที่ 1) โดยมีคำเตือนว่าหลายๆ การศึกษายังไม่ได้รับการทบทวนโดยเพื่อน วัคซีนเยื่อเมือกอย่างน้อย 14 รายการได้เข้าสู่ขั้นตอนแรกของการทดลองทางคลินิก ณ วันที่ 14 ธันวาคม พ.ศ. 2564 (ตารางที่ 2) และอีกหลายรายการสามารถเข้าสู่ตลาดได้ในปี พ.ศ. 2565
เส้นทางอื่นนอกเหนือจากการฉีดเข้ากล้ามอาจนำไปสู่การประหยัดปริมาณแอนติเจน ซึ่งอาจเกี่ยวข้องกับการบรรเทาปัญหาคอขวดของการผลิตระหว่างการแพร่ระบาด ขณะนี้ได้รับการพิสูจน์แล้วสำหรับเส้นทางใต้ผิวหนัง [80] แต่ก็ยังไม่ได้รับการพิสูจน์อย่างเป็นทางการสำหรับเส้นทางของเยื่อเมือก
แม้ว่าเราจะขาดการศึกษาอย่างเป็นทางการเกี่ยวกับประสิทธิภาพของวัคซีนทางปากหรือทางสูดในอาสาสมัครที่เป็นมนุษย์ซึ่งไม่มีระบบภูมิคุ้มกันของเยื่อเมือก (เช่น เด็กหลังจากเอาต่อมอะดีนอยด์และต่อมทอนซิลออก [81] หรือหลังการตัดไส้ติ่ง) ก็ดูสมเหตุสมผลที่จะสันนิษฐานว่า ระบบภูมิคุ้มกันของเยื่อเมือกที่เหลืออยู่เพียงพอที่จะกระตุ้นให้เกิดการตอบสนอง เนื่องจากไม่มีบันทึกทางประวัติศาสตร์ว่าบุคคลเหล่านี้มีความอ่อนแอมากขึ้นหลังจากได้รับวัคซีนชนิดอื่น
7. การฆ่าเชื้อภูมิคุ้มกันและอนาคตของ SARS-CoV-2 ความรุนแรง
ในกรณีของวัคซีนไม่กระตุ้นให้เกิดภูมิคุ้มกันฆ่าเชื้อ คาดว่าการแพร่เชื้ออย่างต่อเนื่องจะช่วยอำนวยความสะดวกในการลดจำนวนเชื้อสู่มนุษย์ แม้ว่าประสบการณ์เกี่ยวกับวัคซีน "รั่ว" ดังกล่าวในสัตว์เลี้ยงในฟาร์มจะยังไม่มีข้อสรุป ตัวอย่างเช่น การใช้ Marek disease virus (MDV) ในไก่ วัคซีนที่ไม่ผ่านการฆ่าเชื้ออาจเพิ่ม [104] หรือลด [105] ความรุนแรง โดยทั่วไป ยิ่งไวรัสแพร่กระจายมากเท่าใด การปรับตัวให้เข้ากับโฮสต์ก็จะยิ่งดีขึ้นเท่านั้น แบบจำลองวิวัฒนาการเสนอว่าการแลกเปลี่ยนระหว่างความรุนแรงและการแพร่เชื้อช่วยเพิ่มความเหมาะสมของเชื้อโรคในขณะที่ลดความรุนแรง แต่ก็ไม่ชัดเจนว่านี่เป็นปรากฏการณ์สากลสำหรับไวรัสทั้งหมดหรือไม่ [106] ขึ้นอยู่กับความสัมพันธ์ระหว่างความรุนแรงและการแพร่เชื้อ และต้นทุนของความรุนแรงต่อจุลินทรีย์ที่เป็นปัญหา [107]
สำหรับสิ่งมีชีวิตที่ต้องการความรุนแรงในการแพร่เชื้อไปยังโฮสต์ใหม่ ความสามารถในการก่อโรคเป็นสิ่งจำเป็นต่อการอยู่รอดของพวกมัน และไม่ควรคาดหวังการลดทอน [107]) สำหรับ SARS-CoV-2 เราทราบดีอยู่แล้วว่าการแพร่กระจายที่ไม่แสดงอาการนั้นเป็นไปได้ ซึ่งหมายความว่าความรุนแรงไม่จำเป็นสำหรับการแพร่เชื้อ ความรวดเร็วของการลดทอน (หลายทศวรรษจนถึงหลายล้านปี) เกิดจากตัวแปรต่างๆ เช่น อัตราการตายและประสิทธิภาพการส่งสัญญาณ ทำให้ไม่สามารถคาดการณ์ได้ แม้ว่าการลดลงด้วยการไหลเวียนในหมู่มนุษย์ไม่ใช่วิถีสากล แต่ในอดีต ไวรัสทางเดินหายใจหลายชนิดได้ลดจำนวนลงโดยธรรมชาติทันเวลา รวมถึงไวรัสโคโรนา (เช่น OC-43 ซึ่งวิวัฒนาการมาจากสาเหตุของการระบาดของไข้หวัดใหญ่รัสเซียในปี พ.ศ. 2428-2437 [108] ต่อไวรัสที่ก่อให้เกิดไข้หวัดในปัจจุบัน) หลักฐานของการลดทอนที่เกิดขึ้นเองตามธรรมชาติของไวรัสในมนุษย์ยังมาจากไวรัส RNA มากกว่า (เช่น ไวรัสไข้หวัดใหญ่ A(H1N1) [109,110] ไวรัสไข้เลือดออกชนิดที่ 2 [111] และ Ebolavirus จาก HIV [112,113] แม้ว่าเชื้อโรคดังกล่าวจะอยู่ไกลจาก มีความรุนแรง การระบาดใหญ่ของ SARS-CoV-2 ที่กำลังดำเนินอยู่เป็นโอกาสที่ไม่เคยมีมาก่อนในการตรวจสอบจำนวนการเจริญพันธุ์ (Rt) แบบเรียลไทม์ และเราสังเกตเห็นการเพิ่มขึ้นจาก 1.2 สำหรับสายพันธุ์ดั้งเดิมของหวู่ฮั่นเป็น 4.0 สำหรับ Delta-plus ปัจจุบัน ความแปรปรวนของความกังวล (VOC) [114]: กล่าวอีกนัยหนึ่ง ตัวแปรที่มีความรุนแรงมากกว่าและส่งผ่านได้น้อยกว่าถูกแทนที่อย่างรวดเร็วด้วยตัวแปรที่ส่งผ่านได้มากกว่าและมีความรุนแรงน้อยกว่า
ปัจจุบัน กระบวนการวิวัฒนาการกำลังดำเนินอยู่โดยมีกลุ่มย่อยของเดลต้ามากกว่า 170 สายที่แข่งขันกันเอง [115] และ VOC อื่นที่เรียกว่า Omicron ซึ่งเพิ่งรายงาน [116,117] จากการแพร่กระจายที่เพิ่มขึ้นของสายพันธุ์ SARS-CoV ที่ลดทอน-2 จากพาหะที่ไม่แสดงอาการในช่วงระยะเวลาล็อกดาวน์ การแข่งขันระหว่างสายพันธุ์ SARS-CoV ที่ลดทอน-2 กับสายพันธุ์ที่ไม่ลดทอนได้รับการตั้งสมมติฐานว่ามีส่วนช่วยในการลดความรุนแรงโดยรวม [ 118]. สายพันธุ์ของไวรัสที่ลดทอนแล้วเป็นเสาหลักของการรณรงค์สร้างภูมิคุ้มกันมานานหลายทศวรรษ และการไหลเวียนของไวรัสที่ตั้งใจไว้ไม่ควรมองข้าม
ในทางกลับกัน วัคซีนที่ก่อให้เกิดภูมิคุ้มกันฆ่าเชื้อในมนุษย์มีความเสี่ยงเพิ่มเติมในการป้องกันการลดทอนที่เกิดขึ้นเองโดยการยกเลิกการจำลองแบบและวิวัฒนาการของไวรัส ดังนั้นการผลักไวรัสเข้าสู่แหล่งกักเก็บของสัตว์ ซึ่งมันยังคงเป็นโรคติดต่อจากสัตว์ที่มีโอกาสกลับเข้าสู่ประชากรมนุษย์ด้วย การเจ็บป่วยและการเสียชีวิตเพิ่มขึ้น (การปรับตัวกลับ) SARS-CoV-2 เป็นไวรัส panzootic และที่น่าสนใจคือ VOC ทั้งสี่ในปัจจุบันสามารถเอาชนะข้อจำกัด Spike เดิมสำหรับ ACE2 ของหนูได้อย่างสมบูรณ์ และ VOC แต่ละตัวแสดงความสัมพันธ์ที่สูงขึ้นสำหรับตัวรับ ACE2 ของหนู เฟอเรต และชะมด การแทนที่ N501Y และ E484K ใน RBD ของ Spike
ที่กล่าวว่า การไหลเวียนที่เพิ่มขึ้นนั้นมาพร้อมกับความเสี่ยงร้ายแรงที่สายเลือดที่อ่อนลงจะกลับไปเป็นสายเลือดที่มีความรุนแรงมากขึ้น ผ่านการกลายพันธุ์ การลบ หรือการรวมตัวกันของนิวคลีโอไทด์เดี่ยว สกุลย่อยของไวรัสโคโรนาหลายสกุลมีแนวโน้มที่จะรวมตัวกันอีกครั้งในบริเวณจีโนม GC ต่ำ, บริเวณที่ไม่มีการเข้ารหัส, ขอบของยีน และไซต์ Spike ที่ไม่ก่อกวน [119] สำหรับ SARS-CoV-2 สายเลือดรีคอมบิแนนต์สองสายมีการหมุนเวียนอยู่แล้ว (XA และ XB)
นอกจากนี้ ไวรัส RNA มีแนวโน้มที่จะเกิดการกลายพันธุ์อย่างมาก ทำให้เกิดสิ่งที่เรียกว่า "การกลายพันธุ์ที่ทำให้ถึงตายได้" [120] ซึ่งคาดว่าจะทำให้ SARS-CoV หายไปอย่างกะทันหัน-1 [121] ด้วย SARS-CoV-2 สมมติฐานนี้ถูกนำมาใช้เมื่อเร็วๆ นี้เพื่ออธิบายการลดลงอย่างกะทันหันของอุบัติการณ์ของ Delta VOC ในญี่ปุ่น [114] แต่การแข่งขันจากกลุ่มย่อยที่เหมาะสมกว่ายังคงเป็นคำอธิบายทางเลือก ดังนั้น ทั้งวัคซีนฆ่าเชื้อและไม่ฆ่าเชื้อจึงมีแนวโน้มที่จะมีผลกระทบอย่างมากต่อวิวัฒนาการความรุนแรงของ SARS-CoV-2 ในมนุษย์ ซึ่งอาจก่อให้เกิดความท้าทายใหม่ๆ ในอนาคต เนื่องจากมนุษยชาติยังคงเผชิญกับภัยคุกคามจากไวรัสนี้
8. ความท้าทายของผู้ไม่ตอบสนองต่อวัคซีน
เช่นเดียวกับความต้องการทางสังคมใดๆ ก็ตาม มักต้องมีการประนีประนอมระหว่างความต้องการที่ไม่ได้รับการตอบสนองของบุคคลที่เปราะบางกับความปลอดภัยทั่วไปของประชากรที่มีภาวะภูมิคุ้มกันบกพร่อง การตอบสนองของวัคซีนที่ไม่ดี ซึ่งคงอยู่หลังจากได้รับวัคซีนไปแล้ว 3 โดส ยังคงเป็นปัญหาร้ายแรงสำหรับผู้ป่วยที่มีภาวะภูมิคุ้มกันบกพร่อง [122] บุคคลเหล่านี้ยังคงมีความเสี่ยงต่อการติดเชื้อและโรค และเป็นตัวแทนของประชากรจำนวนมากเนื่องจากความสำเร็จของการแพทย์สมัยใหม่ในการรักษาโรคมะเร็งและโรคไขข้อด้วยการบำบัดที่ทำให้ภูมิคุ้มกันบกพร่อง ดังนั้น ปัญหาของบุคคลที่มีภาวะภูมิคุ้มกันบกพร่องที่ไม่ตอบสนองต่อวัคซีนจึงมีแนวโน้มที่จะทำให้ความพยายามใดๆ ในการควบคุมหรือยุติการแพร่ระบาดมีความซับซ้อน เนื่องจากโฮสต์เหล่านี้ยังคงมีความเสี่ยงต่อ SARS-CoV-2 และโดยการจำลองไวรัสเป็นเวลานาน ภูมิทัศน์ในอุดมคติสำหรับการเกิดขึ้นของสายพันธุ์ไวรัส ปัจจุบัน การป้องกันด้วยภูมิคุ้มกันแบบพาสซีฟเป็นไปได้ด้วยค็อกเทล sc mAbs (รวมถึงแอนติบอดีที่ออกฤทธิ์นาน), im hyperimmune sera หรือ iv convalescent plasma ในขณะที่ RCT กำลังดำเนินอยู่ มีเหตุผลมากมายสำหรับการคาดหวังประสิทธิภาพจากการป้องกันโรคก่อนสัมผัสดังกล่าว

9. วัคซีน COVID ในระบบ-19 เป็นเพียงวัคซีน "เห็นแก่ตัว" หรือไม่
วัคซีนตามระบบที่ไม่สามารถสร้างภูมิต้านทานหมู่ได้ จะถูกมองว่า "เห็นแก่ตัว" โดยสื่อมวลชนทั่วไป กล่าวคือ ถือว่าเป็นประโยชน์เฉพาะสำหรับตัวผู้รับวัคซีนเท่านั้น ซึ่งรอดพ้นจากโรคร้ายแรง นี่เป็นความเข้าใจผิดเนื่องจากผลประโยชน์ทางสังคมที่ชัดเจนของการเสียชีวิตและการเจ็บป่วยที่ลดลงของโควิด-19 และการคัดแยกในโรงพยาบาล ประโยชน์ของวัคซีนตามระบบมีมากกว่าการบรรเทาโควิด-19 แน่นอน
ตัวอย่างเช่น ระยะเวลาที่สั้นลงของการแพร่ของไวรัสใน NPS (แม้ว่าปริมาณสูงสุดจะใกล้เคียงกับกรณีที่ไม่ได้รับวัคซีนก็ตาม) นำไปสู่การลดการแพร่เชื้อในชุมชนและลดความน่าจะเป็นของการกลายพันธุ์ภายในโฮสต์ ในมุมมองที่กว้างขึ้น ความแตกต่างของสายเลือด SARS-CoV-2 มีความสัมพันธ์แบบผกผันกับอัตราการให้วัคซีน (แสดงให้เห็นโดยเฉพาะสำหรับ Delta VOC ในมุมมองของแต่ละบุคคล ไวรัสที่แยกได้จากผู้ป่วยที่มีการพัฒนาวัคซีนแสดงให้เห็น 2{{ 4}}ลดความหลากหลายในเซลล์เอพิโทปของ SARS-CoV ที่รู้จัก-2 B เมื่อเปรียบเทียบกับผู้ป่วย COVID ที่ไม่ได้รับการฉีดวัคซีน-19 [123] ดังนั้น วัคซีนจึงอาจทำลายผลกระทบทางชีวภาพต่อความสมบูรณ์ของไวรัสโดยการลด ความหลากหลายทางพันธุกรรมของมัน
10. บทสรุป
วัคซีนยังคงเป็นความหวังที่ดีที่สุดในการยุติการแพร่ระบาดของโควิด-19 และลดอัตราการเสียชีวิต การพัฒนาวัคซีนที่มีประสิทธิภาพหลายตัวภายในปีแรกของการระบาดถือเป็นความสำเร็จที่น่าทึ่ง วัคซีนเยื่อเมือกไม่ใช่วิธีหลัก/วิธีแรกที่ใช้กับ SARS-CoV-2 เนื่องจากในช่วงเริ่มต้นของการระบาดใหญ่ เรามีความรู้ไม่ดีเกี่ยวกับวิธีที่ภูมิคุ้มกันฆ่าเชื้อทำงานอย่างไรกับไวรัสโคโรนา
อย่างไรก็ตาม วัคซีนที่สร้างภูมิคุ้มกันทั้งระบบโดยไม่มีภูมิคุ้มกันจากเยื่อเมือกไม่น่าจะยุติการแพร่ระบาดได้ เนื่องจากสิ่งเหล่านี้เป็นการป้องกันโรค ไม่ใช่การติดเชื้อ และทุกกรณีของการติดเชื้อเกี่ยวข้องกับการจำลองแบบของไวรัสโดยมีโอกาสเกิดสายพันธุ์ที่ดื้อต่อวัคซีน การแทรกแซงของมนุษย์ในการป้องกันหรือรักษาโรคทุกครั้งจะสร้างแรงกดดันในการคัดเลือกที่สามารถนำไปสู่การเกิดขึ้นของสายพันธุ์ที่หลบหนีได้ [124] และวัคซีนก็ไม่มีข้อยกเว้น สิ่งนี้อาจใช้กับการแข่งขันระหว่างสายเลือดและการเร่งวิวัฒนาการภายในวัคซีน สถานการณ์ของโควิด-19 เรียกร้องให้มีการวิจัยอย่างต่อเนื่องในการพัฒนาวัคซีน และเมื่อพิจารณาถึงขอบเขตของภัยพิบัติทั่วโลกที่เกิดจาก SARS-CoV-2 เราคาดการณ์ถึงความต้องการและการพัฒนาวัคซีนรุ่นใหม่ที่ กระตุ้นภูมิคุ้มกันของเยื่อเมือกต่อแอนติเจนของไวรัสหลายตัว การศึกษาเพิ่มเติมที่รวมการติดตามหลังการฉีดวัคซีนและการจัดลำดับพันธุกรรมของเชื้อ SARS-CoV-2- กรณีที่เป็นบวกนั้นรับประกันว่าจะมีความชัดเจนถึงผลกระทบของการเปลี่ยนแปลงวิวัฒนาการของไวรัสตามธรรมชาติด้วยแคมเปญการฉีดวัคซีน
เงินทุน:
งานวิจัยนี้ไม่ได้รับทุนสนับสนุนจากภายนอก
คำชี้แจงของคณะกรรมการพิจารณาสถาบัน:
ไม่สามารถใช้ได้.
คำชี้แจงความยินยอมที่ได้รับการบอกกล่าว:
ไม่สามารถใช้ได้.
คำชี้แจงความพร้อมใช้งานของข้อมูล:
ข้อมูลมีอยู่ในที่เก็บข้อมูลสาธารณะที่เข้าถึงได้

ผลประโยชน์ทับซ้อน:
DF ได้รับค่าธรรมเนียมสำหรับคณะกรรมการที่ปรึกษาจาก Novavax ผู้เขียนคนอื่น ๆ ประกาศว่าไม่มีความขัดแย้งทางผลประโยชน์ที่เกี่ยวข้องกับต้นฉบับนี้
อ้างอิง
1. เอเวอร์ เคเจ; บาร์เร็ตต์ เจอาร์ ; Belij-Rammerstorfer, S.; ชาร์ป, เอช; มาคินสัน อาร์; มอร์เตอร์ อาร์; แฟลกซ์แมน, อ.; ไรท์, ด.; เบลลามี, ด.; บิตเท, ม.; และอื่น ๆ การตอบสนองของทีเซลล์และแอนติบอดีที่เกิดจากวัคซีน ChAdOx1 nCoV-19 (AZD1222) โด๊สเดียวในการทดลองทางคลินิกระยะที่ 1/2 ณัฐ. ยา 2021, 27, 270–278. [ครอสรีฟ]
2. ฮาร์ท, ทีเค; คุก RM; Zia-Amirhosseini, P.; มินทร, อี.; ผู้ขาย ทส; มาลีฟ พ.ศ. ; ยูสติส, เอส.; ชวาร์ตษ์, แอลดับเบิลยู ; ทุ่ย พี; แอพเพลบอม เอ่อ; และอื่น ๆ ประสิทธิภาพและความปลอดภัยของพรีคลินิกของเมโพลิซูแมบ (SB-240563) ซึ่งเป็นโมโนโคลนอลแอนติบอดีที่มีลักษณะของมนุษย์ต่อ IL-5 ในลิงแสม เจ. คลีนิคภูมิแพ้. อิมมูนอล 2544, 108, 250–257. [ครอสรีฟ]
3. พีเบิลส์ อาร์เอส จูเนียร์; หลิว พิธีกร; ลิกเตนสไตน์ แอลเอ็มดี ; การวัดปริมาณของแฮมิลตัน, RG IgA, IgG และ IgM ในของเหลวล้างหลอดลมจากโรคจมูกอักเสบจากภูมิแพ้ ผู้ป่วยโรคหอบหืดจากภูมิแพ้ และอาสาสมัครปกติโดยการตรวจวิเคราะห์อิมมูโนเอนไซม์ที่ใช้โมโนโคลนอลแอนติบอดี เจ.อิมมูนอล. วิธีการ 1995, 179, 77–86 [ครอสรีฟ]
4. อู๋ เอช.; Pfarr, ดีเอส; จอห์นสัน เอส; บรูวาห์, ยยา; วูดส์ RM; พาเทล เอ็นเค ; ขาว วิสคอนซิน; หนุ่ม เจเอฟ ; Kiener, PA การพัฒนา motavizumab ซึ่งเป็นแอนติบอดีที่มีศักยภาพสูงสำหรับการป้องกันการติดเชื้อไวรัส syncytial ในระบบทางเดินหายใจส่วนบนและส่วนล่าง เจ โมล ไบโอล 2550, 368, 652–665. [ครอสรีฟ]
5. บอร์รอก เอ็มเจ; DiGiandomenico, อ.; เบยาซ เอ็น; มาร์เชตติ จีเอ็ม; บาร์นส์ เอเอส ; เล็กสตรอม, เคเจ ; ฟิปส์ เอสเอสอ ; แมคคาร์ธี ส.ส.; วู, เอช.; Dall'Acqua, WF; และอื่น ๆ การเพิ่มการกระจาย IgG ไปยังเนื้อเยื่อเยื่อเมือกในปอดช่วยเพิ่มผลการป้องกันของแอนติบอดีต่อต้านเชื้อ pseudomonas aeruginosa JCI Insight 2018, 3, e97844. [ครอสรีฟ] [PubMed]
6. เปียโน มอร์ตารี, E.; รุสโซ ซี; วินชี, หม่อมราชวงศ์; เทอร์เรรี เอส; เฟร์นันเดซ ซาลินาส, เอ; พิคชิโอนี, แอล; Alteri, C.; โคลากรอสซี, ล.; Coltella, L.; แรนโน เอส; และอื่น ๆ การสร้างเซลล์ B ในหน่วยความจำที่มีความจำเพาะสูงหลังจากได้รับวัคซีน BNT162b2 ครั้งที่ 2 จะชดเชยการลดลงของแอนติบอดีในซีรั่มและการไม่มี IgA ของเยื่อเมือก เซลล์ 2021, 10, 2541 [CrossRef] [PubMed]
7. อร, ด.; Topol, E. สัดส่วนของการติดเชื้อ SARS-CoV ที่ไม่แสดงอาการ-2 แอน นักศึกษาฝึกงาน ยา 2021, 174, 1344–1345 [ครอสรีฟ] [PubMed]
8. โนวาซซี่ เอฟ.; ทาโบเรลลี เอส; บาจ, อ.; โฟโคซี, ด.; Maggi, F. การติดเชื้อ SARS-CoV ที่ไม่แสดงอาการ-2 การติดเชื้อจากวัคซีนในบุคลากรทางการแพทย์ที่ระบุผ่านการทดสอบการเฝ้าระวังสากลตามปกติ แอน นักศึกษาฝึกงาน ยา 2021, 174, 1770–1772 [ครอสรีฟ] [PubMed]
9. เคนเนดี-แชฟเฟอร์ แอล; คาห์น อาร์; Lipsitch, M. การประมาณประสิทธิภาพของวัคซีนต่อการแพร่เชื้อโดยมีผลต่อปริมาณไวรัส ระบาดวิทยา 2021, 32, 820–828. [ครอสรีฟ]
10. โจว ด.; ชาน, เจเอฟ-ดับบลิว; โจว บี; โจว อาร์; หลี่ เอส; ฉาน เอส; หลิว แอล; จาง เอเจ ; เฉิน เอสเจ ; จัน, CC-S.; และอื่น ๆ การติดเชื้อ SARS-CoV ที่รุนแรง-2 ในกังหันจมูกหลังจากการรักษาด้วยแอนติบอดีที่เป็นกลางในระบบ Cell Host Microbe 2021, 29, 551–563.e555 [ครอสรีฟ] [PubMed]
11. ฮัลเว เอส; คุปเกะ, อ.; Vanshylla, K.; ลิเบอร์ตา เอฟ; กรูเอล, เอช.; เซห์เนอร์ ม.; โรห์ด ซี; Kraehling, V.; Gellhorn-Serra, M.; ครี, ซี; และอื่น ๆ การให้ monoclonal neutralizing antibody ทางจมูกจะช่วยป้องกันหนูจากการติดเชื้อ SARS-CoV-2 ไวรัส 2021, 13, 1498 [CrossRef]
12. คาซาเดวอลล์, อ.; Pirofski, LA ปฏิสัมพันธ์ระหว่างโฮสต์กับเชื้อโรค: นิยามแนวคิดพื้นฐานของความรุนแรงและการก่อโรคใหม่ ติดเชื้อ ภูมิคุ้มกัน 2542, 67, 3703–3713. [ครอสรีฟ]
13. ร็อบบินส์, เจบี; Schneerson, อาร์; Szu, SC Perspective: สมมติฐาน: แอนติบอดี IgG ในซีรั่มเพียงพอที่จะให้การป้องกันโรคติดเชื้อโดยการยับยั้งหัวเชื้อ เจติดเชื้อ โรค 2538, 171, 1387–1398. [ครอสรีฟ]
14. อาน จฮ; คิม เจ; หงษ์ SP; ชอย SY; ยาง เอ็มเจ ; จู, ยส; คิม, YT; คิม หือ; เราะห์มาน, MDT; ชุง เอ็มเค; และอื่น ๆ เซลล์โพรงจมูกเป็นเป้าหมายหลักสำหรับการจำลองแบบของ SARS-CoV-2 ในระยะเริ่มต้นของ COVID-19 เจ. คลิน. ตรวจสอบ 2021, 131, e148517. [ครอสรีฟ]
15. ฟ็อกซ์ อ.; มาริโน เจ; อมนัส, ฉ.; แครมเมอร์ เอฟ; ฮาห์น-ฮอลบรูค เจ; โซลลา-พาซเนอร์, เอส.; Powell, RL ตรวจพบสารคัดหลั่ง IgA ที่แข็งแรงและจำเพาะต่อ SARS-CoV-2 ในน้ำนมของมนุษย์ iScience 2020, 23, 101735 [CrossRef] [PubMed]
16. Demers-Mathieu, V.; ทำ DM; มาธิจเซ่น, กิกะไบต์ ; เสลา ดีเอ; เซปโป, อ.; ยาร์วิเนน, KM; Medo, E. ความแตกต่างในระดับของหน่วยย่อย SARS-CoV-2 S1 และ S2- และ SIgM/IgM ที่ตอบสนองต่อโปรตีนนิวคลีโอแคปซิด, IgG และ SIgA/IgA ในนมของมนุษย์ เจ.เพอรินาทอล. ปิด. เจ. คาลิฟ. เพอรินาท. รศ. 2020, 1, 1–10. [ครอสรีฟ]
17. สึกิโนกิ, เค; ยามาโมโตะ, ที.; ฮันดะ เค; อิวามิยะ, ม.; อิโนะ, เอส; Sakurai, T. การตรวจหา cross-reactive IgA ในน้ำลายเทียบกับหน่วยย่อย SARS-CoV-2 Spike1 โปรดวัน 2021, 16, e0249979 [ครอสรีฟ] [PubMed]
18. Kadiyala, G.; ไอเยอร์ เอส; เมเฮอร์ เค; วังกาลา เอส; ชานดราน เอส; Saxena, U. การเตรียมแอนติบอดีที่กินได้เพื่อต่อต้านการจับของ SarsCoV2 RBD (โดเมนจับตัวรับ) กับตัวรับ ACE2 ของมนุษย์ bioRxiv 2021 [CrossRef]
19. ฟรัมกิ้น, แอลอาร์; ลูคัส ม.; Scribner, ซีแอล; Ortega-Heinly, N.; โรเจอร์ส เจ; หยิน, G.; ฮัลแลม ทีเจ ; แย้ม น.; เบดาร์ด เค; เบกลีย์ อาร์; และอื่น ๆ ยาต้าน SARS-CoV ที่ได้จากไข่-2 อิมมูโนโกลบูลิน Y (IgY) ที่มีฤทธิ์หลากหลายเป็นยาป้องกันโรคโควิดในโพรงจมูก-19: การศึกษาพรีคลินิกและการทดลองทางคลินิกระยะที่ 1 แบบสุ่มที่มีกลุ่มควบคุม medRxiv 2022 [CrossRef]
20. อำนาจ ม.; อาซาด, ท.; เบลล์ เจ.ซี. ; MacLean, A. การแสดงออกจากพืชของแอนติเจน SARS-CoV-2 สำหรับใช้ในวัคซีนทางปาก bioRxiv 2021 [CrossRef]
21. หลี่ ซี; Zhan, W.; หยาง ซี; ตู่, ซี; จู้, วาย.; ซ้ง, ว.; หวาง, เค; กู, เอ็กซ์; ก้อง, ย.; จาง เอ็กซ์; และอื่น ๆ การทำให้เป็นกลางในวงกว้างของสายพันธุ์ SARS-CoV-2 โดยแอนติบอดีโดเมนเดียวที่มีความจำเพาะแบบคู่ที่สูดดมได้ bioRxiv 2021 [CrossRef]
22. ยูซุฟ เอช.; Kett, V. โอกาสในปัจจุบันและความท้าทายในอนาคตสำหรับการให้วัคซีนทางจมูก ครวญเพลง วัคซีนภูมิคุ้มกัน 2017, 13, 34–45. [ครอสรีฟ] [PubMed]
23. ไฮด้า อาร์; ฮินริชส์ ดับเบิลยูแอล ; Frijlink, HW การให้วัคซีนแบบสูดในการต่อสู้กับไวรัสระบบทางเดินหายใจ: ภาพรวมของการพัฒนาล่าสุดและผลกระทบต่อโควิดในปี 2021-19 Expert Rev. Vaccines 2021, 1–18. [ครอสรีฟ]
24. Jhaveri ร.; Allyne, K. การทดลองความเป็นไปได้ของการบริหารวัคซีนทางจมูกที่บ้านโดยผู้ปกครองกับเด็กที่มีสิทธิ์ คลิน. เธอ 2017, 39, 204–211. [CrossRef] [PubMed] 25. Bandyopadhyay, AS; การอน เจ; ซีบ, เค; Orenstein, WA การฉีดวัคซีนโปลิโอ: อดีต ปัจจุบัน และอนาคต ไมโครไบโอลแห่งอนาคต 2015, 10, 791–808. [ครอสรีฟ] [PubMed]
26. เชน, เอส.; พี, บี; ซิงห์ เอส; สิงห์ลา, อ.; คุนดู, เอช; Singh, K. บทเรียนการกำจัดโรคโปลิโอจากมุมมองในอดีตและอนาคต เจ. คลิน. การวินิจฉัย ความละเอียด JCDR 2014, 8, Zc56–Zc60. [ครอสรีฟ]
27. เคิร์กวูด ซีดี; แม่, เอลฟ์; แครี่, เมน; Steele, AD ไปป์ไลน์การพัฒนาวัคซีนโรตาไวรัส วัคซีน 2019, 37, 7328–7335 [ครอสรีฟ]
28. กลาส, โรไอแลนด์; Parashar ยูดี; เบรสซี เจเอส ; Turcios, ร.; ฟิสเชอร์ ทีเค ; วิดโดว์สัน, แมสซาชูเซตส์; เจียง บี; วัคซีน Gentsch, JR Rotavirus: โอกาสในปัจจุบันและความท้าทายในอนาคต มีดหมอ 2549, 368, 323–332. [ครอสรีฟ]
29. คาร์เตอร์, นิวเจอร์ซีย์; Curran, MP Live attenuated influenza vaccine (FluMist®; Fluenz™): การทบทวนการใช้วัคซีนป้องกันไข้หวัดใหญ่ตามฤดูกาลในเด็กและผู้ใหญ่ ยาเสพติด 2011, 71, 1591–1622 [ครอสรีฟ]
30. วัตต์, พีเจ; Smith, A. การกำหนดสูตรยาและวัคซีนใหม่สำหรับการนำส่งทางจมูก: ประโยชน์สูงสุดสำหรับความเสี่ยงขั้นต่ำ? การค้นพบยา วันนี้ 2011, 16, 4–7. [ครอสรีฟ]
31. ท็อป เอฟเอช จูเนียร์; กรอสแมน, RA; บาร์เทลโลนี่, พี.เจ.; ซีกัล ฯพณฯ ; Dudding บริติชแอร์เวย์; รัสเซล พีเค ; การสร้างภูมิคุ้มกัน Buescher, EL ด้วยวัคซีน adenovirus ชนิดมีชีวิต 7 และ 4 I. ความปลอดภัย การติดเชื้อ แอนติเจน และศักยภาพของวัคซีนอะดีโนไวรัสชนิดที่ 7 ในมนุษย์ เจติดเชื้อ โรค 2514, 124, 148–154. [ครอสรีฟ] [PubMed]
32. ท็อป เอฟเอช จูเนียร์; Dudding บริติชแอร์เวย์; รัสเซล พีเค ; Buescher, EL การควบคุมโรคระบบทางเดินหายใจในการรับสมัครด้วยวัคซีน adenovirus ประเภท 4 และ 7 เช้า. เจเอพิเดมิออล. 2514, 94, 142–146. [ครอสรีฟ]
33. คุชเนอร์, RA; รัสเซล เคแอล ; อาบูจา, ม.; บาวเออร์ KM; Faix, ดีเจ; เฮท, เอช.; เฮนริก เจ; จาคอบส์ ม.; ลิส, อ.; ลินช์, จา; และอื่น ๆ การศึกษาระยะที่ 3 แบบสุ่ม ปกปิดสองทาง ควบคุมด้วยยาหลอก เกี่ยวกับความปลอดภัยและประสิทธิภาพของวัคซีนอะดีโนไวรัสชนิดรับประทานชนิดที่ 4 และชนิดที่ 7 แบบรับประทานในการเกณฑ์ทหารของสหรัฐฯ วัคซีน 2013, 31, 2963–2971 [ครอสรีฟ] [PubMed]
34. ลียง, อ.; ลองฟิลด์ เจ; คุชเนอร์ อาร์; ตรง ต.; บินน์, ล.; เสรีวัฒนา, เจ; Reitstetter, ร.; ฟรอห์, IB; หัตถกรรม, D.; แมคแนบบ์ เค; และอื่น ๆ การศึกษาแบบ double-blind ควบคุมด้วยยาหลอกเกี่ยวกับความปลอดภัยและการสร้างภูมิคุ้มกันของวัคซีนอะดีโนไวรัสชนิดรับประทานชนิดที่ 4 และชนิดที่ 7 ในผู้ใหญ่ วัคซีน 2008, 26, 2890–2898. [ครอสรีฟ]
35. ชูดรี, อ.; มาเธน่า เจ; อัลบาโน เจดี ; ยาโคโวเน ม.; Collins, L. การประเมินความปลอดภัยของวัคซีน adenovirus ชนิดที่ 4 และชนิดที่ 7 แบบรับประทานในการเกณฑ์ทหาร วัคซีน 2016, 34, 4558–4564 [ครอสรีฟ]
36. เกย์โดส แคลิฟอร์เนีย; วัคซีน Gaydos, JC Adenovirus ในกองทัพสหรัฐฯ ล้าน ยา 2538, 160, 300–304. [ครอสรีฟ]
37. ฮิลแมน, MR; สตอลโลนส์, RA; โกล RL ; วอร์ฟิลด์ มิสซิสซิปปี ; Anderson, SA การฉีดวัคซีนป้องกันโรคทางเดินหายใจเฉียบพลันของ adenovirus (RI-APC-ARD) สาเหตุ เช้า. J. สาธารณสุข สุขภาพแห่งชาติ 1957, 47, 841–847 [ครอสรีฟ] [PubMed]
38. คอลลินส์ ND; อธิการี, อ.; ยาง, ย.; คุชเนอร์, RA; Karasavvas, น.; บินน์ แอลเอ็น ; ผนัง SD; กราฟ, พีซีเอฟ; ไมเออร์ แคลิฟอร์เนีย; จาร์มัน อาร์จี ; และอื่น ๆ วัคซีนอะดีโนไวรัสชนิดรับประทานชนิดที่ 4 และชนิดที่ 7 ทำให้เกิดการตอบสนองของแอนติบอดีที่ทนทาน วัคซีน 2020, 8, 411 [CrossRef] [PubMed]
39. กัสเซอร์ ร.; คลูเทียร์ ม.; พรีโวสท์ เจ; ฟิงก์ ซี; ดูคัส, อี.; ดิง เอส; Dussault, น.; แลนดรี พี; เทรมเบลย์, ที.; Laforce-Lavoie, A.; และอื่น ๆ บทบาทหลักของ IgM ในกิจกรรมการทำให้เป็นกลางของ convalescent plasma ต่อ SARS-CoV-2 Cell Rep. 2020, 34, 108790. [CrossRef] [PubMed]
40. เวอร์เคอร์เก้ เอช.; ซาอีดี บีเจ ; บอยเยอร์, ด.; อัลเลน เจดับบลิว ; โอเวนส์ เจ; ชิน เอส; ฮอร์วาธ, ม.; พาเทล เค; พอล, อ.; อู๋ เซาท์แคโรไลนา ; และอื่น ๆ เรากำลังลืมเกี่ยวกับ IgA หรือไม่? การตรวจซ้ำสำหรับโรคโคโรนาไวรัส 2019 convalescent plasma การถ่ายเลือด พ.ศ. 2564, 61, 1740–1748 [ครอสรีฟ] [PubMed]
41. เดน ฮาร์ต็อก, G.; วอส, ศก.; แวน เดน ฮูเกน, นิติศาสตร์บัณฑิต; แวน โบเวน ม.; ชปป์, RM; สมิทส์ G.; van Vliet, เจ; วูดสตรา, แอล; WijmengaMonsuur, เอเจ; ฟาน ฮาเกน, CCE; และอื่น ๆ การคงอยู่ของแอนติบอดีต่อ SARS-CoV-2 เกี่ยวกับอาการในการศึกษาในอนาคตทั่วประเทศ คลิน. ติดเชื้อ โรค พ.ศ. 2564 73 พ.ศ. 2155–2162 [ครอสรีฟ]
42. คลิงเลอร์ เจ; ไวสส์ เอส; อิทธิ, V.; หลิว เอ็กซ์; โอกันตูโย, KY ; สตีเวนส์ ซี; อิเคกาเมะ, เอส.; แขวน, C.-T.; Enyindah-Asonye, G.; อมนัส, ฉ.; และอื่น ๆ บทบาทของแอนติบอดี IgM และ IgA ในการทำให้เป็นกลางของ SARS-CoV-2 เจติดเชื้อ โรค พ.ศ. 2563, 223, 957–970. [ครอสรีฟ]
43. สเตอร์ลิน ด.; คณิต อ.; มิยารา ม.; มอร์, อ.; แอนนา เอฟ; แคลร์, แอล; Quentric พี; Fadlallah เจ; กิลลานี พี; กันน์ ซี; และอื่น ๆ IgA ครอบงำการตอบสนองของแอนติบอดีที่ทำให้เป็นกลางในช่วงต้นต่อ SARS-CoV-2 วิทย์ แปล ยา 2021, 13, 2223 [CrossRef] [PubMed]
44. วัง Z.; ลอเรนซี่, เจซีซี ; Muecksch, F.; ฟินกิ้น เอส; เวียน ซี; เกบเลอร์ ซี; ซิโปลลา ม.; ฮอฟมันน์ ฮ.; โอลิเวร่า ไททันส์ ; โอเรน ดา; และอื่น ๆ ปรับปรุงการวางตัวเป็นกลางของ SARS-CoV-2 โดย dimeric IgA วิทย์ แปล ยา 2021, 13, eabf1555. [ครอสรีฟ] [PubMed]
45. เซอร์เวีย ซี; นิลส์สัน เจ; Zurbuchen, Y.; วาลาเปอร์ติ, อ.; ชไรเนอร์ เจ; Wolfensberger, อ.; เรเบอร์, เมน ; อดาโม เอส; เหวยกัง เอส; เอ็มเมเน็กเกอร์ ม.; และอื่น ๆ การตอบสนองของแอนติบอดีในระบบและเยื่อเมือกที่จำเพาะต่อ SARS-CoV-2 ระหว่าง COVID เล็กน้อยและรุนแรง-19 เจ. คลีนิคภูมิแพ้. อิมมูนอล 2020, 147, 545–557.e549. [ครอสรีฟ] [PubMed]
46. ฟ็อกซ์, อ.; มาริโน เจ; อมนัส, ฉ.; Oguntuyo, เค; ฮาห์น-ฮอลบรูค เจ; ลี บี; แครมเมอร์ เอฟ; โซลลา-พาซเนอร์, เอส.; Powell, RL IgA ที่มีความจำเพาะสูงในน้ำนมซึ่งมักถูกกระตุ้นออกมาหลังจากการติดเชื้อ SARS-CoV-2 นั้นเกิดขึ้นพร้อมกันกับการตอบสนองของแอนติบอดีที่หลั่งออกมาอย่างเข้มข้น แสดงศักยภาพในการทำให้เป็นกลางซึ่งสัมพันธ์อย่างมากกับการจับกับ IgA และมีความทนทานสูงเมื่อเวลาผ่านไป medRxiv 2021 [CrossRef]
47. คีตาส, ทีเจ; ชาตรุจ, ด.; ครูซ-Portillo, VM; ฟรังโคมาโน, อี.; โกลเด้น, อี; จันทรเสกขร, ส.; Debnath, G.; Diaz-Tapia, R.; ยัสมีน อ.; เลโคเนต ว.; และอื่น ๆ การตอบสนองของแอนติบอดีต่อวัคซีน SARS-CoV-2 mRNA สามารถตรวจพบได้ในน้ำลาย ปะทุ. ภูมิคุ้มกัน 2021, 6, 116–134. [ครอสรีฟ]
48. วิสนิวสกี้ เอวี; คัมปิลโล-ลูนา เจ; Redlich, CA การตอบสนองของ Human IgG และ IgA ต่อวัคซีน COVID-19 mRNA โปรดวัน 2021, 16, e0249499 [ครอสรีฟ]
49. แบร์ด เจ.เค.; เจนเซ่น เอสเอ็ม; เออร์บา ดับบลิวเจ ; ฟ็อกซ์ บริติชแอร์เวย์; Baird, JR SARS-CoV-2 ตรวจพบแอนติบอดีในน้ำนมแม่หลังการฉีดวัคซีน เจ. ฮัม. แลค 2021, 37, 492–498. [ครอสรีฟ]
50. เกรย์, เคเจ; Bordt อีเอ; อาตี๋ ซี; เดริโซ, อี.; อคิณวันมี, บี; หนุ่ม น.; แบซ, AM; ส่าย, LL; Cvrk, D.; เจมส์ เค; และอื่น ๆ การตอบสนองของวัคซีนโควิด-19 ในสตรีมีครรภ์และให้นมบุตร: การศึกษาแบบกลุ่ม เช้า. เจ Obstet นรีคอล. 2021, 225, 303.e301–303.e317. [ครอสรีฟ]
51. แอนเดอร์สัน มิชิแกน; Arancibia-Carcamo, ประวัติย่อ; โอ๊คแลนด์, เค; เบลลี่, เจ.เค.; บาร์นส์ อี.; เบเนเก้, ที.; บีบี เอส; บรู๊คส์, ที.; แครอล, ม.; ครุก, ด.; และอื่น ๆ SARS-CoV-2 RNA ที่ตรวจพบในผลิตภัณฑ์เลือดจากผู้ป่วย COVID-19 ไม่เกี่ยวข้องกับไวรัสที่ติดเชื้อ ยินดีต้อนรับเปิด Res 2020, 5, 181. [CrossRef]
52. เดสเพรส เอชดับเบิลยู; มิลส์, มก.; เชอร์ลี่ย์ ดีเจ; ชมิดท์, MM; หวาง ม.-ล.; เจอโรม เคอาร์; เกรนิงเกอร์, อัล; Bruce, EA การวัดเชิงปริมาณของไวรัสติดเชื้อใน SARS-CoV-2 ตัวแปร Alpha, Delta และ Epsilon เผยให้เห็นการติดเชื้อที่สูงขึ้น (อัตราส่วนของไวรัส: RNA ratio) ในตัวอย่างทางคลินิกที่มีตัวแปร Delta และ Epsilon medRxiv 2021 [CrossRef]
53.เค, ร.; มาร์ติเนซ, พีพี ; สมิธ อาร์แอล; กิบสัน, LL; Achenbach, CJ ; แมคฟอล เอส; ฉี ซี; เจคอบ เจ; เดมเบเล่, อี.; บันดี้ ซี; และอื่น ๆ การวิเคราะห์ระยะยาวของการติดเชื้อ SARS-CoV-2 ของวัคซีนเผยให้เห็นการแพร่กระจายของไวรัสที่ติดเชื้อและการกระจายของเนื้อเยื่อที่จำกัด medRxiv 2021 [CrossRef]
54. ปูฮาช, โอ.; อาเดีย, เค; ฮูโล, น.; Sattonnet-Roche, P.; เจเนแคนด์, ซี; อิเทน, อ.; ฌาคเคริออซ โบช, เอฟ.; ไกเซอร์ แอล; เวทเตอร์ พี; เอคเคอร์ล, I.; และอื่น ๆ ปริมาณไวรัสที่ติดเชื้อในผู้ป่วยที่ไม่ได้รับการฉีดวัคซีนและได้รับวัคซีนที่ติดเชื้อ SARS-CoV-2 WT, Delta และ Omicron medRxiv 2022 [CrossRef]
55. อ.สิงห์นายางาม; ฮากิ เอส; ดันนิง เจ; มาดอน เคเจ ; โครน, แมสซาชูเซตส์; Koycheva, A.; แดร์กี-เฟร์นานเดซ, เอ็น; บาร์เน็ตต์ เจแอล ; วิทฟิลด์ มก. ; วาร์โร อาร์; และอื่น ๆ การแพร่เชื้อในชุมชนและจลนพลศาสตร์ของปริมาณไวรัสของ SARS-CoV-2 delta (B.1.617.2) ที่แตกต่างกันในบุคคลที่ได้รับวัคซีนและไม่ได้รับวัคซีนในสหราชอาณาจักร: การศึกษาในอนาคต ระยะยาว การศึกษาตามรุ่น มีดหมอติดเชื้อ. โรค 2021. [ครอสรีฟ]
56. บาจ, อ.; โนวาซซี่ เอฟ.; เจโนนี, อ.; Ferrante เอฟดี; ทาโบเรลลี เอส; พินี, บี; ปาร์เตโนป, ม.; วัลลี ม.; แกสเปรินา, ดีดีเอ; คาปูอาโน อาร์; และอื่น ๆ การติดเชื้อ SARS-CoV ที่มีอาการ-2 หลังจากได้รับการฉีดวัคซีน BNT162b2 ครบตามกำหนดในบุคลากรทางการแพทย์ที่ติดเชื้อ: ชุดเคสจากสถาบันเดียว โผล่ออกมา จุลินทรีย์ติดเชื้อ 2021, 10, 1254–1256 [ครอสรีฟ] [PubMed]
57. ไบเออร์, BS; รามานาธาน, ม., จูเนียร์; วัคซีน Lane, AP COVID-19 อาจไม่ป้องกันการติดเชื้อ SARS-CoV ทางจมูก-2 และการแพร่เชื้อโดยไม่แสดงอาการ โอโตลาริงกอล กระชากคอศีรษะ ปิด. แยม. อคาเดมี โอโตลาริงกอล กระชากคอศีรษะ 2021, 164, 305–307. [ครอสรีฟ] [PubMed]
58. ชาน, RWY; หลิว ส.; เฉิง เจวาย; ซุน, JGS; ชาน เคซี ; ชาน เควาย; ฟุ้ง, กบข.; ลี่, AM; Lam, HS การตอบสนองทางภูมิคุ้มกันของเยื่อเมือกและเซรุ่มวิทยาต่อวัคซีนป้องกันไวรัสโคโรนาสายพันธุ์ใหม่ (SARS-CoV-2) ด้านหน้า. อิมมูนอล 2021, 12, 744887 [CrossRef] [PubMed]
59. โรเซนเบิร์ก-ฟรีดแมน, ม.; คิเกล อ.; บาฮาร์, ย.; เวอร์เบิร์น, ม.; อัลเทอร์ เจ; โยเกฟ, ย.; ดร. ย.; Lubetzky, R.; เดสเซา ม.; Gal-Tanamy, ม.; และอื่น ๆ BNT162b2 mRNA การตอบสนองของแอนติบอดีในเลือดและน้ำนมของสตรีที่ให้นมบุตร ณัฐ. ชุมชน 2021, 12, 6222 [CrossRef]
60. จ้าว เจ; Zhao เจ; Mangalam, อลาสก้า; จันทร์พรรณวร, ร.; เฟตต์, ซี; เมเยอร์โฮลซ์ ดีเค ; อัคนิโฮทราม, เอส.; บาริค, อาร์เอส; เดวิด ซีเอส ; Perlman, S. Airway memory CD4(บวก) ทีเซลล์เป็นสื่อกลางในการป้องกันภูมิคุ้มกันต่อโคโรนาไวรัสทางเดินหายใจที่เกิดขึ้นใหม่ ภูมิคุ้มกัน 2016, 44, 1379–1391 [ครอสรีฟ] [PubMed]
61. ชิม, BS; สเตดเลอร์ เค; เหงียน ฮ.; หยุน CH; คิม DW; ช้างเจ; เซอร์กินสกี้, ซี; Song, MK การสร้างภูมิคุ้มกันใต้ลิ้นด้วย recombinant adenovirus ที่เข้ารหัสโปรตีนขัดขวาง SARS-CoV ทำให้เกิดภูมิคุ้มกันของระบบและเยื่อเมือกโดยไม่มีการเปลี่ยนเส้นทางของไวรัสไปยังสมอง วิโรล. J. 2012, 9, 215. [CrossRef] [PubMed]
62. Raghuwanshi, D.; มิชรา, V.; ดาส, ด.; คอร์, เค; Suresh, MR Dendritic อนุภาคนาโนไคโตซานที่กำหนดเป้าหมายเซลล์สำหรับการสร้างภูมิคุ้มกัน DNA ในจมูกต่อโปรตีนนิวคลีโอแคปซิด SARS-CoV โมล ฟาร์มา 2555, 9, 946–956. [ครอสรีฟ] [PubMed]
63. ไก่ WW; จาง วาย; โจว ดีเอช; เฉิน วายคิว; หยาง, เจนวาย; Yan, HM PIKA มีผลเสริมในการกระตุ้นให้เยื่อเมือกแข็งแรงและภูมิคุ้มกันของร่างกายที่เป็นระบบต่อ SARS-CoV วิโรล. บาป. 2554, 26, 81–94. [ครอสรีฟ]
64. ลู, บี; หวาง, ย.; หวาง, ล.; หลี่ บี; เจิ้ง, ซี; เฉิน ซี; เฉิน เจ; หู, Q.; Wang, H. ผลของการสร้างภูมิคุ้มกันต่อเยื่อเมือกและระบบด้วยอนุภาคคล้ายไวรัสของโคโรนาไวรัสกลุ่มอาการทางเดินหายใจเฉียบพลันรุนแรงในหนู ภูมิคุ้มกันวิทยา 2010, 130, 254–261 [CrossRef] 65. ชิม, BS; ปาร์ค, เอสเอ็ม; ฉวน เจ. เอส. ; เจเร, ด.; ชู, เอช.; เพลง, เอ็มเค; คิม DW; จาง, ยส; ยาง MS; ฮัน, SH; และอื่น ๆ การสร้างภูมิคุ้มกันในโพรงจมูกด้วยพลาสมิดดีเอ็นเอที่เข้ารหัสสไปค์โปรตีนของอนุภาคนาโนของซาร์ส-โคโรนาไวรัส/โพลิเอทิลีนมีนทำให้เกิดการตอบสนองทางภูมิคุ้มกันของร่างกายและเซลล์ที่จำเพาะต่อแอนติเจน บีเอ็มซี อิมมูนอล 2553, 11,
65. [ครอสรีฟ]
66. หวาง, X.; ลู, บี; ยู ว.; ฝาง Q.; หลิว แอล; จ้วงเค; เซิน, ท.; วัง เอช; เทียน ป.; จาง แอล; และอื่น ๆ MVTT เวกเตอร์วัคซีนที่มีความสามารถในการจำลองแบบใหม่นั้นเหนือกว่า MVA สำหรับการกระตุ้นระดับแอนติบอดีที่เป็นกลางในระดับสูงผ่านการฉีดวัคซีนเยื่อเมือก กรุณาหนึ่ง 2009, 4, e4180 [ครอสรีฟ]
67. ชูลซ์, เค; สเต็บ ซี; Schätzl หือ ; Ebensen, T.; เออร์เฟล, วี.; กุซมัน แคลิฟอร์เนีย โปรโตคอลการให้วัคซีนไพรม์บูสต์ช่วยเพิ่มประสิทธิภาพการตอบสนองของภูมิคุ้มกันต่อโปรตีนนิวคลีโอแคปซิดของไวรัสโคโรนาซาร์ส วัคซีน 2008, 26, 6678–6684. [ครอสรีฟ]
68. ดู่, ล.; Zhao, G.; ลิน, ย.; ซุย, เอช.; จัน, ซี; หม่า, ส.; เฮ้.; เจียง เอส; วู, ซี; หยวน KY; และอื่น ๆ การฉีดวัคซีนในโพรงจมูกของไวรัส recombinant ที่เกี่ยวข้องกับอะดีโนซึ่งเข้ารหัสโดเมนจับตัวรับของกลุ่มอาการทางเดินหายใจเฉียบพลันรุนแรง โคโรนาไวรัส (SARS-CoV) ทำให้เกิดการตอบสนองทางภูมิคุ้มกันของเยื่อเมือกที่แข็งแรง และให้การป้องกันระยะยาวต่อการติดเชื้อ SARS-CoV เจ.อิมมูนอล. 2551, 180, 948–956. [ครอสรีฟ]
69.หู เอ็มซี; โจนส์ ที; เคนนีย์ RT; บาร์นาร์ด ดีแอล; เบิร์ต ดีเอส; Lowell, GH Intranasal Protollin-formated SARS S-protein recombinant กระตุ้นทางเดินหายใจและซีรั่มแอนติบอดีที่เป็นกลางและการป้องกันในหนู วัคซีน 2550, 25, 6334–6340. [ครอสรีฟ]
70. หลัว ฉ.; เฟิง, ย.; หลิว ม.; หลี่ พี; แพน, Q.; เจซา, เวอร์มอนต์; เซี่ย บี; อู๋ เจ; Zhang, XL Type IVB pilus operon โปรโมเตอร์ควบคุมการแสดงออกของยีนนิวคลีโอแคปซิดที่เกี่ยวข้องกับโรคระบบทางเดินหายใจเฉียบพลันรุนแรงในเชื้อ Salmonella enterica Serovar Typhi กระตุ้นการตอบสนองทางภูมิคุ้มกันอย่างเต็มที่โดยการฉีดวัคซีนทางจมูก คลิน. วัคซีนอิมมูนอล. CVI 2007, 14, 990–997. [ครอสรีฟ] [PubMed]
71. สตีเฟน เจ; ตาชั่ง ฯพณฯ ; เบนสัน, รา; เออร์เบน, ด.; การ์ไซด์, ป.; การรวมตัวของบรูเออร์, JM นิวโทรฟิล และการก่อตัวของกับดักนอกเซลล์มีบทบาทสำคัญในกิจกรรมเสริมของสารส้ม วัคซีน NPJ 2017, 2, 1. [CrossRef] [PubMed]
72. ลี่, อี; จิ, เอช; หวาง พี; หยาน ฉ.; จาง วาย; หลิว ซี; วัง Z.; หลี่, จี; จาง เอส; โม, ร.; และอื่น ๆ วัคซีนอนุภาคคล้ายแบคทีเรียชนิดใหม่ที่แสดงโดเมนที่จับตัวรับ MERS-CoV กระตุ้นการตอบสนองทางภูมิคุ้มกันของเยื่อเมือกและระบบที่จำเพาะเจาะจงในหนู ไวรัส 2019, 11, 799 [CrossRef] [PubMed]
73. มะ, ซี; ลี่, วาย.; วัง, ล.; Zhao, G.; เต๋า, เอ็กซ์; เซิง, CT; โจว วาย; ดู่, ล.; Jiang, S. การฉีดวัคซีนในโพรงจมูกด้วยโดเมนที่มีผลผูกพันตัวรับ recombinant ของโปรตีนขัดขวาง MERS-CoV ทำให้เกิดการตอบสนองทางภูมิคุ้มกันของเยื่อเมือกในท้องถิ่นที่แข็งแกร่งกว่าการสร้างภูมิคุ้มกันใต้ผิวหนัง: ความหมายสำหรับการออกแบบวัคซีน MERS เยื่อเมือกใหม่ วัคซีน 2014, 32, 2100–2108 [ครอสรีฟ]
74. ฮากแมนส์, BL; แวนเดนแบรนด์ เจเอ็ม; ราจ VS; โวลซ์, อ.; โวห์ลเซน พี; สมิทส์, SL; ชิปเปอร์, ดี.; Bestebroer, TM; อ็อกบา เอ็น; Fux, อาร์; และอื่น ๆ วัคซีนที่ใช้ไวรัสออร์โทพอกส์ช่วยลดการขับถ่ายของไวรัสหลังการติดเชื้อ MERS-CoV ในอูฐหนอก วิทยาศาสตร์ 2016, 351, 77–81. [ครอสรีฟ]
75. มัดกัล ร.; เนฮูล เอส; Tomar, S. ผู้คาดหวังวัคซีนเยื่อเมือก: ปิดประตู SARS-CoV-2 ครวญเพลง วัคซีนภูมิคุ้มกัน พ.ศ. 2563, 16, 2921–2931. [ครอสรีฟ]
76. โมเรโน-เฟียร์รอส, แอล; การ์เซีย-ซิลวา, I.; Rosales-Mendoza, S. การพัฒนาวัคซีน SARS-CoV-2: เราควรมุ่งเน้นไปที่ภูมิคุ้มกันของเยื่อเมือกหรือไม่ ความคิดเห็นของผู้เชี่ยวชาญ ไบโอล เธอ 2020, 20, 831–836. [ครอสรีฟ]
77. ปาร์ค, JH; Lee, HK เส้นทางการจัดส่งวัคซีนโควิด-19 วัคซีน 2021, 9, 524 [CrossRef] [PubMed]
78. ทิโบนี ม.; คาเซตตารี, ล.; Illum, L. การฉีดวัคซีนป้องกันโรคซาร์ส-โควี-2: เสริมฤทธิ์กันหรือเป็นทางเลือกแทนวัคซีนเข้ากล้าม? ภายใน เจ. ฟาร์มา. 2021, 603, 120686. [CrossRef]
79. อัชราฟ, MU; คิม, ย.; มาร์, ส.; ซอ, ด.; อัชราฟ ม.; วัคซีน Bae, YS COVID-19 (เยี่ยมชมอีกครั้ง) และระบบเวกเตอร์เยื่อเมือกในช่องปากเป็นแพลตฟอร์มวัคซีนที่มีศักยภาพ วัคซีน 2021, 9, 171 [CrossRef] [PubMed]
80. รูเซ็น จีวีที; ปรินส์, ม.; ฟาน บินเนนไดจ์ค, อาร์; ถ้ำ, G.; ไคเปอร์, V.; พรินส์ ซี; แจนส์, เจ.เจ.; ครูธอฟ เอซี ; เฟลต์แคมป์, MCW; คูเยอร์, ม.; และอื่น ๆ ความทนทาน ความปลอดภัย และการสร้างภูมิคุ้มกันของการนำส่งวัคซีน mRNA-1273 SARS-CoV-2 โดสบางส่วนในผู้ใหญ่ที่มีสุขภาพดีเป็นกลยุทธ์การลดขนาดยา medRxiv 2021 [CrossRef]
81. จุง KY; ลิม ฮ.; ชอย จี; Choi, JO การเปลี่ยนแปลงที่เกี่ยวข้องกับอายุของ IgA immunocytes และซีรั่มและน้ำลาย IgA หลังการตัดต่อมทอนซิล แอกตาโอโต-ลารินโกจิกา. อาหารเสริม 2539, 523, 115–119.
82. ยู เจ; คอลลินส์ เอ็น; เมอร์คาโด, NB; แมคมาฮัน เค; Chandrashekar, อ.; หลิว เจ; อานีโอเกะ, ท.; ช้าง, อ.; กิฟฟิน, V.; หวังว่า D.; และอื่น ๆ ประสิทธิภาพการป้องกันของการนำส่ง SARS-CoV ในทางเดินอาหาร-2 เทียบกับความท้าทายของ SARS-CoV ในจมูกและในหลอดลม-2 ในลิงแสม เจ. วิโรล. 2021, JVI0159921. [ครอสรีฟ] [PubMed]
83. ดู่, ย.; Xu, Y.; เฟิงเจ; หู, ล.; จาง วาย; จาง บี; Guo, W.; ใหม่, ร.; เฉิน, ล.; ฝาง เจ; และอื่น ๆ การบริหารทางจมูกของภูมิคุ้มกันป้องกันที่เกิดจากวัคซีน RBD ชนิดรีคอมบิแนนท์ต่อ SARS-CoV-2 ในหนู วัคซีน 2021, 39, 2280–2287 [ครอสรีฟ] [PubMed]
84. คิม อี๋; คิม, ด.; ยู, KM; ซอ, เอชดี; ลี SA; คาเซิล, MAB; จาง เอสจี; คิม เอส; จุง ว.; ลาย ซีเจ ; และอื่น ๆ การพัฒนาอนุภาคนาโนโดเมนจับรีเซพเตอร์แบบสไปค์เพื่อเป็นวัคซีนป้องกันการติดเชื้อ SARS-CoV-2 ในเฟอร์เร็ต Mbio 2021, 12, จ00230-21 [ครอสรีฟ] [PubMed]
85. พิตคอฟสกี้ เจ; กรูซเดฟ, น.; อับซาค, อ.; แค็ทซ์ ซี; Ben-Adiva, R.; แบรนด์ Schwartz, M.; ยาดิด, I.; ฮาวีฟ, เอช; ราโปพอร์ต, I.; โบลช ฉัน; และอื่น ๆ วัคซีน SARS-CoV หน่วยย่อยในช่องปาก-2 กระตุ้นการตอบสนองของ IgG, IgA และภูมิคุ้มกันของเซลล์ให้เป็นกลางอย่างเป็นระบบ และสามารถเพิ่มการตอบสนองของแอนติบอดีที่ทำให้เป็นกลางโดยวัคซีนที่ฉีดเข้าไป bioRxiv 2021 [CrossRef]
86. ซุย, ย.; หลี่ เจ; จาง อาร์; ประภู, สก; เอลยาร์ด ฮาวาย; เวนซอน, ง.; กุ๊ก ก.; บราวน์ เร; เตี๋ยว, อี; Velasco เจ; และอื่น ๆ การป้องกันการติดเชื้อ SARS-CoV-2 โดยวัคซีนเยื่อเมือกในลิงแสม JCI Insight 2021, 6, e148494. [ครอสรีฟ]
87. สุ่ย, ย.; หลี่ เจ; แอนเดอร์เซ็น เอช; จาง อาร์; ประภู, ส.; ฮวง, ท.; เวนซอน, ง.; กุ๊ก ก.; บราวน์ อาร์; เตี๋ยว, อี; และอื่น ๆ วัคซีน SARS-CoV-2 สายพันธุ์ย่อยเสริมหน่วยย่อยเบต้าที่ให้ทางจมูกป้องกันการจำลองแบบของไวรัสสายพันธุ์เบต้าในลิงแสม bioRxiv 2021 [CrossRef]
88. เจียง แอล; ไดรดองส์, ที.; โลว์แมน, ม.; จง, WSP; ฟาน เดน เบิร์ก ฟาน ซาปารัว, HB; ธาคาล เอส; โจว อาร์; คาปูโต ซี; ลิตเติ้ลฟิลด์ เค; สิตาราส, I.; และอื่น ๆ วัคซีนฉีดเข้าจมูกจากถุงน้ำนอกเซลล์จากแบคทีเรียเพื่อต่อต้าน SARS-CoV-2 bioRxiv 2021 [CrossRef]
89. โรเธน ดา; เครงเกอร์ ป.ล. ; โนนิค, อ.; บัลเก้, I.; Vogt, A.-C.; ช้าง, เอ็กซ์; Manenti, อ.; เวโดวี เอฟ; Resevica, G.; วอลตัน เอส; และอื่น ๆ การให้วัคซีนป้องกันโควิดที่มีพื้นฐานจาก VLP ในจมูก-19 กระตุ้นแอนติบอดีที่เป็นกลางต่อ SARS-CoV-2 และตัวแปรต่างๆ ของข้อกังวล bioRxiv 2021 [CrossRef]
90. เบลลิเออร์, บี; เซารา, อ.; ลูจัน, ล.; โมลินา ซี; ลูจัน เอชดี ; Klatzmann, D. วัคซีน SARS-CoV ชนิดรับประทานที่ทนความร้อน-2 กระตุ้นการสร้างเยื่อเมือกและภูมิคุ้มกัน bioRxiv 2021 [CrossRef]
91. คิง อาร์จี; ซิลวา-ซานเชซ, อ.; พีล, เจเอ็น; บอตต้า, ด.; เมซ่า-เปเรซ เอส; อัลลี ร.; ชูลท์ซ, MD; หลิว ม.; แบรดลีย์, JE; ชิว เอส; และอื่น ๆ การให้ยา AdCOVID เข้าทางจมูกเพียงครั้งเดียวจะกระตุ้นภูมิคุ้มกันทั้งระบบและเยื่อเมือกต่อ SARS-CoV-2 ในหนู วัคซีน 2020, 9, 881 [CrossRef] [PubMed]
92. อู๋ ส.; จง, จี; จาง เจ; ฉ่วย, ล.; จาง ซี; เหวิน ซี; วัง บี; Zhao, Z.; เพลง, X.; เฉิน, วาย.; และอื่น ๆ วัคซีน adenovirus-vectored โด๊สเดียวป้องกันความท้าทายของ SARS-CoV-2 ณัฐ. ชุมชน 2020, 11, 4081 [CrossRef]
93. ฮัสซัน AO; คาไฟ, นิวเม็กซิโก; ดมิทรีฟ ไอพี; ฟ็อกซ์ เจเอ็ม ; สมิธ บีเค; ฮาร์วีย์ ไอบี ; เฉิน เร; เคลอร์ อีเอส ; เวสเซิล AW; เคส เจบี ; และอื่น ๆ วัคซีนชาดฉีดเข้าจมูกแบบฉีดครั้งเดียวช่วยปกป้องทางเดินหายใจส่วนบนและส่วนล่างจาก SARS-CoV-2 เซลล์ 2020, 183, 169–184 [ครอสรีฟ]
94. ฮัสซัน AO; ชริฮารี เอส; กอร์แมน เอ็มเจ ; หญิง, บี; หยวน, ด.; ราจู เอส; เฉิน เร; ดมิทรีฟ ไอพี; Kasentseva, E.; อดัมส์ แอลเจ ; และอื่น ๆ วัคซีนฉีดเข้าจมูกป้องกันสายพันธุ์ SARS-CoV-2 ในหนูได้อย่างทนทาน Cell Rep. 2021, 36, 109452. [CrossRef] [PubMed]
95. ลาปูเอนเต, ด.; ฟัคส์ เจ; วิลลาร์ เจ; มดตะนอย เอวี ; เอเวอร์ลีน, V.; อูลิก, น.; อิสมาอิล แอล; ชมิดท์, อ.; โอลท์มันน์ส, เอฟ.; ปีเตอร์ เอเอส ; และอื่น ๆ ภูมิคุ้มกันของเยื่อเมือกป้องกันจาก SARS-CoV-2 หลังจากการสร้างภูมิต้านทานแบบเวกเตอร์ของ RNA-mucosal adenoviral แบบ heterologous systemic ณัฐ. ชุมชน 2021, 12, 6871 [CrossRef] [PubMed]
96. Chandrasekar, SS; พันเซ่, ย.; ฮิลเดอแบรนด์, RE; ฮานาฟี ม.; วู CW; แฮนเซน CH ; โอโซริโอ เจอี ; ซูเรช ม.; Talaat, AM การตอบสนองทางภูมิคุ้มกันเฉพาะที่และเป็นระบบต่อ SARS-CoV-2 หลังการสร้างภูมิต้านทานทางเยื่อเมือก วัคซีน 2021, 9, 132. [CrossRef]
97. คิบเลอร์, เควี; สเซอร์บา, ม.; ทะเลสาบ ดีเอฟ; โรเดอร์ เอเจ ; เราะห์มาน ม.; โฮก บีจี ; หว่อง, LYR; เพิร์ลแมน เอส; ลี่, วาย.; Jacobs, BL การสร้างภูมิคุ้มกันในจมูกด้วยเวกเตอร์วัคซีนไวรัส vaccinia ที่แสดง SARS-CoV ที่เสถียรก่อนฟิวชัน-2 ขัดขวางหนูที่ได้รับการปกป้องอย่างเต็มที่จากความท้าทายที่ทำให้ถึงแก่ชีวิตด้วย SARS-CoV สายพันธุ์ N501YMA30 ที่ดัดแปลงในหนูที่กลายพันธุ์อย่างหนัก -2. bioRxiv 2021 [CrossRef]
98. คู, MW; เบอร์จีน, ม.; Authié, P.; โลเปซ เจ; เนมิรอฟ เค; มองโกค, ฉ.; น้อยรัตน์ อ.; เวศิน, บี; เนโว, ฉ.; บลอง, ซี; และอื่น ๆ การฉีดวัคซีนในจมูกด้วยเวกเตอร์ lentiviral ป้องกัน SARS-CoV-2 ในสัตว์จำลองพรีคลินิก Cell Host Microbe 2021, 29, 236–249 [ครอสรีฟ] [PubMed]
99. เป็ง KW; แครี่, ต.; เลค, พี; Vandergaast, ร.; มูโนซ-อาเลีย, แมสซาชูเซตส์; แพ็กกิริสวามี, น.; Gnanadurai, C.; Krotova, K.; เทสฟาย ม.; ซีเกลอร์ ซี; และอื่น ๆ การเพิ่มภูมิคุ้มกัน SARS-CoV-2 ในไพรเมตที่ไม่ใช่มนุษย์โดยใช้วัคซีน rhabdovirus แบบรับประทาน bioRxiv 2021 [CrossRef]
100. โจว ร.; วังพี; วงศ์, ย.-ค.; Xu, H.; เลา, S.-Y.; หลิว แอล; โมก, BW-Y.; เป็ง, Q.; หลิว เอ็น; เติ้ง เอส; และอื่น ๆ การป้องกันการติดเชื้อ SARS-CoV-2 ทางจมูกโดยการฉีดวัคซีนกระตุ้นไข้หวัดใหญ่ทางจมูก bioRxiv 2021 [CrossRef]
101. เซียลิง ป.; คิง, ต.; วงศ์, ร.; เหงียน, อ.; วนุก, ก.; Gabitzsch, E.; ข้าว ก.; Adisetiyo, H.; เฮอร์เรค ม.; เวอร์มา ม.; และอื่น ๆ การเพิ่มขึ้นอย่างรวดเร็วของ Prime hAd5 บวกกับการฉีดวัคซีนนิวคลีโอแคปซิดทำให้การตอบสนองของ T-cell เฉลี่ยเพิ่มขึ้นสิบเท่าในผู้รับการทดลองระยะที่ 1 ที่คงอยู่ต่อสายพันธุ์ที่ขัดขวาง medRxiv 2021 [CrossRef]
102. มัวร์ เอซี; ดอร่า, อีจี; Peinovich, น.; ทัคเกอร์ เคพี; หลิน เค; คอร์เตส ม.; Tucker, SN การศึกษาก่อนการรักษาทางคลินิกของวัคซีน recombinant adenoviral mucosal เพื่อป้องกันการติดเชื้อ SARS-CoV-2 bioRxiv 2020 [CrossRef]
103. อู๋ ส.; หวาง เจ; จาง ซี; อู๋ เจ; จาง เจ; หู, เอช.; จู้, ต.; จาง เจ; ลู, ล.; แฟน ป.; และอื่น ๆ ความปลอดภัย ความสามารถในการทนต่อยา และการสร้างภูมิคุ้มกันของวัคซีนป้องกันไวรัสโคโรนาสายพันธุ์-5 ที่เป็นพาหะนำโรค-19 ชนิดละอองลอย-5 (Ad{4}}nCoV) ในผู้ใหญ่: รายงานเบื้องต้นเกี่ยวกับทางคลินิกระยะที่ 1 แบบเปิดและแบบสุ่ม การทดลอง. มีดหมอติดเชื้อ. โรค 2021, 21, 1654–1664 [ครอสรีฟ]
104. อ่าน AF; ไบเจนท์ เอสเจ ; อำนาจ, ค.; โกษาณา, LB; แบล็คเวลล์, แอล; สมิธ แผ่นเสียง; เคนเนดี้ ดีเอ; วอล์คเดน-บราวน์ เซาท์เวสต์; Nair, VK การฉีดวัคซีนที่ไม่สมบูรณ์สามารถเพิ่มการแพร่เชื้อของเชื้อโรคที่มีความรุนแรงสูง PLoS ไบโอล 2015, 13, e1002198. [ครอสรีฟ]
105. เบลีย์ โรไอแลนด์; เฉิง ฮ.; Chase-Topping, ม.; เมย์ส, เจ.เค. ; อนาเคิลโต โอ.; ดันน์ เจอาร์ ; Doeschl-Wilson, A. การแพร่เชื้อก่อโรคจากโฮสต์ที่ได้รับวัคซีนอาจทำให้ความรุนแรงลดลงตามขนาดยา PLoS ไบโอล 2020, 18, e3000619. [ครอสรีฟ]
106. อาเซเวโด, แมสซาชูเซตส์; ดิลล์มัท เอฟพี ; ฟลิค, เอเจ ; ฟอลดิน เอ็มเจ ; Elderd, BD การแลกเปลี่ยนที่ขับเคลื่อนด้วยความรุนแรงในการแพร่กระจายของโรค: การวิเคราะห์อภิมาน อีโวล. ภายใน เจ. ออร์ก. อีโวล. 2019, 73, 636–647. [ครอสรีฟ]
107. คาซาเดวอลล์, อ.; Pirofski, LA ประโยชน์และค่าใช้จ่ายของความรุนแรงต่อจุลินทรีย์ในสัตว์ mBio 2019, 10, e00863-19 [ครอสรีฟ]
108. ไวเกน, ล.; คีย์เอิร์ตส์, อี.; โมเอส, อี.; โธเลน, I.; วอลแลนท์, อี.; เลมีย์ พี; แวนแดมม์, AM; Van Ranst, M. ลำดับจีโนมที่สมบูรณ์ของไวรัสโคโรนาของมนุษย์ OC43: การวิเคราะห์นาฬิกาโมเลกุลแสดงให้เห็นเหตุการณ์การแพร่กระจายของไวรัสโคโรนาจากสัตว์สู่คนที่ค่อนข้างเร็ว เจ. วิโรล. 2005, 79, 1595–1604. [ครอสรีฟ]
109. คาร์เตอร์ อาร์ดับบลิว; Sanford, JC รูปลักษณ์ใหม่ของไวรัสเก่า: รูปแบบของการสะสมการกลายพันธุ์ในไวรัสไข้หวัดใหญ่ H1N1 ของมนุษย์ตั้งแต่ปี 1918 ทฤษฎี ไบโอล ยา แบบอย่าง. 2012, 9, 42. [CrossRef] [PubMed]
110. คริสต์ เอ็มซี; เกดไวย, อ.; Xu, J.; Donis โร; ไวรัส Lu, G. Pandemic (H1N1) 2009 มาเยือนอีกครั้ง: วิวัฒนาการย้อนหลัง ติดเชื้อ เจเนท. อีโวล. เจ โมล เอพิเดมีออล. อีโวล. เจเนท. ติดเชื้อ โรค 2011, 11, 803–811. [ครอสรีฟ]
111. เหล็ก อ.; กูเบลอร์ ดีเจ; Bennett, SN การลดลงตามธรรมชาติของชนิดของไวรัสไข้เลือดออก-2 หลังจากเกิดการระบาดหลายครั้งในเกาะ: การศึกษาสายวิวัฒนาการย้อนหลังของเหตุการณ์ในแปซิฟิกใต้เมื่อสามทศวรรษก่อน ไวรัสวิทยา 2010, 405, 505–512 [ครอสรีฟ] [PubMed]
112. อาเรียน เคเค; แวนแฮม จี; ศิลปะ EJ เอชไอวี-1 พัฒนาไปสู่รูปแบบที่มีความรุนแรงน้อยกว่าในมนุษย์หรือไม่ ณัฐ. รายได้ไมโครไบโอล 2550, 5, 141–151. [ครอสรีฟ] [PubMed]
113. บลองควาร์ต เอฟ.; ราบาวสกี้, เอ็มเค ; เฮอร์เบค เจ; นาลูกาดา, ฉ.; เซอร์วาดดา, ด.; เอลเลอร์ แมสซาชูเซตส์; ร็อบบ์ มล.; เกรย์ อาร์; Kigozi, G.; เลเอนเด็คเกอร์, โอ.; และอื่น ๆ การแลกเปลี่ยนวิวัฒนาการของความรุนแรงในการแพร่เชื้ออธิบายถึงการลดทอนของเอชไอวี-1ในยูกันดา eLife 2016, 5, e20492. [ครอสรีฟ] [PubMed]
114. ตัวแปรเดลต้าที่โดดเด่น 'อาจกลายพันธุ์จนสูญพันธุ์' นักวิทยาศาสตร์กล่าว
115. บทสรุปของเชื้อสาย AY ที่กำหนด
116. แบร์นาสโคนี่, อ.; ปิโนลี พี; อัล คาลาฟ, ร.; Alfonsi, T.; คานาโคกลู, อ.; ซิลิบราซี, ล.; Ceri, S. รายงานเกี่ยวกับการกลายพันธุ์ของ Omicron Spike ใน epitopes และผลกระทบทางภูมิคุ้มกัน/ระบาดวิทยา/จลนพลศาสตร์จากวรรณคดี เข้าถึงได้ทางออนไลน์: https://virological.org/t/reporton-omicron-spike-mutations-on-epitores-and-immunological-epidemiological-kinetics-effects-from-literature/770 (เข้าถึงเมื่อ 20 ธันวาคม 2021)
117. เวนคาทากฤษณัน, อ.; ประวีณ อ.; เลเนแฮน พี; สุรเตคาร, ร.; Raghunathan, บี; นีเซน ม.; Soundararajan, V. Omicron Variant of SARS-CoV-2 มีการแทรกการกลายพันธุ์ของไวรัสสมมุติฐานหรือต้นกำเนิดจีโนมมนุษย์ เข้าถึงได้ทางออนไลน์: https://osf.io/f7txy/ (เข้าถึงเมื่อ 20 ธันวาคม 2564)
118. อาร์เมงโกด์ เจ; Delaunay-Moisan, A.; Thuret, J.-Y.; ฟาน แอนเคน, อี.; อคอสตา-อัลเวียร์, D.; อารากอน, ที; อาเรียส ซี; บลอนเดล ม.; Braakman, I.; คอลเล็ต, เจ.-เอฟ.; และอื่น ๆ ความสำคัญของ SARS-CoV ที่ลดลงตามธรรมชาติ-2ในการต่อสู้กับโควิด-19 สิ่งแวดล้อม. ไมโครไบโอล. พ.ศ. 2563, 22, 2540–2543 [ครอสรีฟ] [PubMed]
119. เดอ เคลิร์ก อ.; สวานโพล, พีไอ ; ลอเรนส์ RF; ซอนโด, ม.; อโบดันรัน, I.; ไลทราส, เอส.; แมคลีน โอ.; โรเบิร์ตสัน, ดีแอล ; Kosakovsky Pond, SL; Zehr เจดี ; และอื่น ๆ อนุรักษ์รูปแบบ recombination ข้ามสกุลย่อยของ coronavirus bioRxiv 2021 [CrossRef]
120. เบียร์, WH; สมิธ เอฟดี; Sanford, JC การสูญหายของข้อมูล: ศักยภาพในการเร่งการลดทอนทางพันธุกรรมตามธรรมชาติของไวรัส RNA ใน ข้อมูลทางชีวภาพ ; World Scientific: สิงคโปร์ 2556; หน้า 369–384. [ครอสรีฟ]
121. สมาคมระบาดวิทยาระดับโมเลกุล SARS ของจีน วิวัฒนาการระดับโมเลกุลของไวรัสโคโรนา SARS ระหว่างการแพร่ระบาดของโรคซาร์สในจีน วิทยาศาสตร์ 2004, 303, 1666–1669 [ครอสรีฟ] [PubMed]
122. เบิร์กแมน ป.; เบลนนาว โอ.; แฮนส์สัน, แอล; มิลเก้, เอส.; โนวัก พี; เฉิน พี; เซอเดอร์ดาห์ล, G.; เอิสเตอร์บอร์ก, อ.; เอ็ดวาร์ด สมิธ, CI; วูลลิมันน์, ดี.; และอื่น ๆ ความปลอดภัยและประสิทธิภาพของวัคซีน mRNA BNT162b2 ต่อ SARS-CoV-2 ในผู้ป่วยที่มีภาวะภูมิคุ้มกันบกพร่อง 5 กลุ่มและกลุ่มควบคุมที่มีสุขภาพดีในการทดลองทางคลินิกแบบ open-label ในอนาคต EBioMedicine 2021, 74, 103705 [CrossRef]
123. นีเซน ม.; อานันท์ ป.; ซิลเวอร์ต อี; สุรเตคาร, ร.; พอว์โลว์สกี้, ซี; กอช พี; เลเนแฮน พี; ฮิวจ์ส, ที.; เซมัวร์, ด.; โอโฮโร เจ.ซี. ; และอื่น ๆ วัคซีนโควิด-19 ลดความหลากหลายทางจีโนมของ SARS-CoV-2: ผู้ป่วยที่ไม่ได้รับการฉีดวัคซีนจะมีความแปรปรวนของการกลายพันธุ์ของแอนติเจนมากกว่า medRxiv 2021 [CrossRef]
124. โฟโคซี, D.; แม็กกี้ เอฟ; แฟรนชินี ม.; แมคคอนเนล เอส; Casadevall, A. การวิเคราะห์ตัวแปรหลบหนีของภูมิคุ้มกันจากการรักษาโดยใช้แอนติบอดีต่อโควิด-19: การทบทวนอย่างเป็นระบบ ภายใน เจ โมล วิทย์ 2021, 23, 29. [CrossRef]
For more information:1950477648nn@gmail.com