การเปิดใช้งาน TLR9 ทำให้เกิด IgA Glycosylation ที่ผิดปกติผ่านทาง APRIL- และ IL-6 ซึ่งเป็นสื่อกลางใน IgA Nephropathy
Mar 11, 2022
ติดต่อ:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Yuko Makita1 , Hitoshi Suzuki1 , Toshiki Kano1 , Akiko Takahata1 , Bruce A. Julian2,3 , Jan Novak3 และ Yusuke Suzuki1
คำสำคัญ: เมษายน; IgA1 ที่ขาดกาแลคโตส; โรคไต IgA; อิลลินอยส์-6; คอมเพล็กซ์ภูมิคุ้มกัน
IgA1 ที่ขาดกาแลคโตส (Gd-IgA1) มีบทบาทสำคัญในการพัฒนาโรคไต IgA(อิแกน). อย่างไรก็ตาม กลไกการก่อโรคที่ขับเคลื่อนการผลิต Gd-IgA1 ยังไม่ได้รับการอธิบายอย่างถี่ถ้วน การกระตุ้นภูมิคุ้มกันโดยธรรมชาติผ่านทาง Toll-like receptor 9 (TLR9) เป็นที่ทราบกันว่าเกี่ยวข้องกับการผลิต Gd-IgA1 ลิแกนด์ที่เหนี่ยวนำการงอกขยาย (APRIL) และ IL-6 ยังเป็นที่รู้จักเพื่อเพิ่มการสังเคราะห์ Gd-IgA1 ใน IgAN โดยเป็นพื้นหลัง เราได้ตรวจสอบว่าการเปิดใช้งาน TLR9 ในเซลล์คัดหลั่ง IgA ส่งผลให้เกิดการผลิต IgA ที่ทำให้เกิดโรคไตมากเกินไปในหนูเมาส์ ddY ที่มีแนวโน้ม IgAN และในเซลล์ IgA1-การหลั่งของมนุษย์ได้อย่างไร การฉีด TLR9 ลิแกนด์ CpG-oligonucleotides ช่วยเพิ่มการผลิตสารเชิงซ้อนของภูมิคุ้มกันไกลโคซิเลต IgA และ IgG-IgA อย่างผิดปกติในหนูเมาส์ ddY ซึ่งจะทำให้รุนแรงขึ้นอาการบาดเจ็บที่ไต. หนูที่กระตุ้นด้วย CpG-oligonucleotide มีระดับ APRIL ในซีรัมที่เพิ่มขึ้นซึ่งมีความสัมพันธ์กับกลุ่มของภูมิคุ้มกันเชิงซ้อน IgA และ IgG-IgA ที่ผิดพลาด ในหลอดทดลองการเปิดใช้งาน TLR9เพิ่มการผลิต IgA ที่ทำให้เกิดโรคไตเช่นเดียวกับ APRIL และ IL-6 ในเซลล์ม้ามของหนูเมาส์ ddY และในเซลล์ที่หลั่ง IgA ของมนุษย์1- อย่างไรก็ตาม การล้มลงของ siRNA ของ APRIL ได้ยับยั้งการผลิต Gd-IgA1 ที่มากเกินไปซึ่งเกิดจาก IL-6 มากเกินไป การทำให้เป็นกลางของ IL-6 ลดการผลิตมากเกินไปที่เกิดจาก CpG-oligonucleotide ของ Gd-IgA1 นอกจากนี้ เส้นทาง APRIL และ IL-6 แต่ละเส้นทาง TLR ที่อาศัยสื่อกลางอย่างอิสระ9-ทำให้เกิดการผลิตมากเกินไปของ Gd-IgA1 ดังนั้น การกระตุ้น TLR9 ได้เพิ่มการสังเคราะห์ IgA ที่ไกลโคซิเลตอย่างผิดปกติ ซึ่งในแบบจำลองหนูเมาส์ของ IgAN ได้ปรับปรุงการบาดเจ็บของไตเพิ่มเติม ดังนั้น APRIL และ IL-6 เสริมฤทธิ์กันและเสริมการสังเคราะห์ Gd-IgA1 อย่างอิสระ
คำชี้แจงการแปล
การบำบัดเฉพาะโรคที่มุ่งเป้าไปที่ IgA1 ที่ขาดกาแลคโตสสามารถก่อให้เกิดการรักษาในอนาคตของโรคไต IgA. ผลลัพธ์จากการศึกษานี้ ซึ่งแสดงให้เห็นการมีส่วนร่วมของลิแกนด์ที่เหนี่ยวนำการงอกขยาย (APRIL) และอินเตอร์ลิวคิน-6 (IL-6) ในการผลิตมากเกินไปของไกลโคซิเลต IgA อย่างผิดปกติ สนับสนุนเหตุผลสำหรับการกำหนดเป้าหมาย APRIL และ IL{ {3}} ในโรคไต IgA (IgAN) อันที่จริง การศึกษาเมื่อเร็ว ๆ นี้แสดงให้เห็นผลในเชิงบวกของโมโนโคลนอลแอนติบอดีต้าน APRIL ใน IgAN ของหนู 1 และการศึกษาทางคลินิกที่มีแอนติบอดี APRIL เป็นกลางกำลังดำเนินอยู่ในผู้ป่วย IgAN
โรคไตอักเสบจาก IgA (IgAN) ซึ่งเป็นโรคไตวายเรื้อรังที่พบได้บ่อยที่สุด2 ทำให้เกิดโรคไตวายเรื้อรังระยะสุดท้ายในผู้ป่วย 20 ถึง 40 เปอร์เซ็นต์ภายใน 20 ปีหลังจากเริ่มมีอาการของโรคนี้3 แม้ว่าการเกิดโรคของ IgAN จะยังคงมีการอธิบายอย่างถี่ถ้วน macroscopic hematuria พร้อมกันกับการติดเชื้อของระบบทางเดินหายใจส่วนบนแสดงให้เห็นว่าระบบภูมิคุ้มกันของเยื่อเมือกมีบทบาทสำคัญในอาการทางคลินิกของ IgAN.4

Cistanchetubulosaป้องกันไตโรค, คลิกที่นี่เพื่อรับตัวอย่าง
ไกลโคซิเลชันผิดปกติของ IgAเป็นศูนย์กลางในการเกิดโรคของ IgAN Glomerular IgA ในผู้ป่วยที่มี IgAN ถูกจำกัดให้อยู่ในคลาสย่อย IgA1 และอุดมไปด้วยโมเลกุลที่มี O-glycans บริเวณบานพับบางส่วนที่ขาดกาแลคโตส (IgA1 ที่ขาดกาแลคโตส [Gd-IgA1])5,6 นอกจากนี้ ระดับ Gd ในซีรัม -IgA1 และ IgA1-ที่ประกอบด้วยคอมเพล็กซ์ภูมิคุ้มกัน(IC) ที่มีออโตแอนติบอดีจำเพาะ Gd-IgA1 สูงขึ้นในผู้ป่วย IgAN.7–9 อย่างไรก็ตาม กลไกสำหรับการผลิต Gd-IgA1 ยังไม่เป็นที่เข้าใจอย่างถ่องแท้
เราใช้โมเดลเมาส์ ddY ที่มีแนวโน้ม IgAN ในการศึกษานี้ หนู ddY พัฒนาอาการบาดเจ็บที่ไตโดยเลียนแบบมนุษย์ที่มี IgAN10 แม้ว่าหนูจะไม่มีโมเลกุล IgA ที่มี O-glycans ตามปกติสำหรับ IgA1 ของมนุษย์ แต่ IgAN ของมนุษย์และแบบจำลองเมาส์ ddY ที่มีแนวโน้ม IgAN นี้มีลักษณะเฉพาะของโรคบางอย่าง เช่น ระดับความสูงในซีรัม ของไกลโคซิเลต IgA และ IgG-IgA IC.6,11 อย่างผิดปกติ อันที่จริง ไกลโคซิเลชันของ IgA ผิดปกติอันเนื่องมาจากการขาด b1 4-กาแลคโตซิเลชันของ N-glycans ทำให้เกิด IgAN ของหนู เนื่องจากระดับซีรัมที่มีน้ำหนักโมเลกุลสูงในซีรัม IgA และ IC ที่มี IgA ที่มีการสะสมของไตและการบาดเจ็บของไตตามมา หนูทดลอง 12 ddY แสดงโปรตีนในปัสสาวะและไตอักเสบจากไตที่มีการงอกขยาย mesangial ร่วมกับการสะสมของ IgA และ C3 ในโกลเมอรูไล การศึกษาการเชื่อมโยงทั่วทั้งจีโนมระบุตำแหน่งของผู้สมัครที่เชื่อมโยงกับความก้าวหน้าของ IgAN ในหนูทดลอง ddY13 ตำแหน่งดังกล่าวรวมถึงยีนที่ทำงานคล้ายกับยีนที่เกี่ยวข้องกับ IgAN ของมนุษย์14,15 การค้นพบนี้ชี้ให้เห็นว่า IgAN ในหนู ddY และในมนุษย์อาจได้รับผลกระทบ อย่างน้อยก็บางส่วนจากยีนที่อ่อนแอเหมือนกัน แม้ว่าลักษณะทางโมเลกุลของ IgA ของหนูและ IgA1 ของมนุษย์จะแตกต่างกัน แต่ glycosylated IgA อย่างผิดปกติมีแนวโน้มที่จะสร้างไอซี IgA และ IgG-IgA ที่เป็นโพลีเมอร์ซึ่งต่อมาจะผลักดันให้เกิดการบาดเจ็บที่ไตในแบบจำลอง ddY murine ของ IgAN เช่นเดียวกับใน IgAN ของมนุษย์ ดังนั้น โมเดลหนู ddY จึงมีคุณสมบัติทั่วไปบางอย่างกับ IgAN ของมนุษย์ และสามารถเป็นเครื่องมือที่มีประโยชน์สำหรับการวิเคราะห์ลักษณะทางจุลพยาธิกำเนิดต่างๆ ของ IgAN
Toll-like receptors (TLRs) เป็นโมเลกุลสำคัญในระบบภูมิคุ้มกันโดยกำเนิดและมีส่วนเกี่ยวข้องในการเกิดโรคของ IgAN.16–20 แอนติเจนภายนอกที่ได้มาจากเชื้อโรคกระตุ้นเส้นทางการส่งสัญญาณ TLR9-MyD8821 กระบวนการนี้นำไปสู่ การสังเคราะห์ไซโตไคน์ที่ทำให้เกิดการอักเสบเพิ่มขึ้นอย่างมีนัยสำคัญ เช่น อินเตอร์เฟอรอนชนิดที่ 1 และอินเทอร์ลิวคิน-6 (IL-6) เมื่อเร็วๆ นี้ เราได้แสดงให้เห็นว่าการเปิดใช้งาน TLR9 นั้นรุนแรงขึ้นอาการบาดเจ็บที่ไตในหนูเมาส์ ddY ที่มีแนวโน้ม IgAN ที่มีระดับซีรั่มของ IgA และ IgG-IgA ICs ในซีรัม นอกจากนี้ ความหลากหลายจำเพาะของ TLR9 ยังสัมพันธ์กับความก้าวหน้าของโรคในผู้ป่วยที่มี IgAN.16 ระดับซีรั่มของ tumor necrosis factor-a และ IL{{ 6}} สูงขึ้นในผู้ป่วยที่มี IgAN.23 นอกจากนี้ IL-6 และ IL-4 ยังเพิ่มการผลิต IgA1 และเน้นย้ำถึงระดับของการขาดกาแลคโตส เพิ่มการสังเคราะห์ Gd-IgA1 โดย IgA{{13} }การคัดแยกเซลล์ออกจากผู้ป่วยที่มี IgAN.24 การค้นพบนี้ชี้ให้เห็นว่า IL-6 อาจเป็นตัวกลางสำคัญของกระบวนการนี้24,25
ยีนของ tumor necrosis factor ligand superfamily member 13 (TNFSF13) เข้ารหัสลิแกนด์ที่กระตุ้นการงอกขยาย (APRIL) ซึ่งเป็นไซโตไคน์ส่วนกลางสำหรับการเจริญเต็มที่และการอยู่รอดของเซลล์บี26 APRIL แบ่งตัวรับสัญญาณบางตัวที่สำคัญสำหรับการพัฒนา B-cell กับอีกเซลล์หนึ่ง ลิแกนด์ซูเปอร์แฟมิลี TNF, ปัจจัยกระตุ้นบีเซลล์ (BAFF) BAFF ยังเกี่ยวข้องกับการทำให้สัมพรรคภาพเติบโตเต็มที่ของบีเซลล์ การศึกษาการเชื่อมโยงทั่วทั้งจีโนมระบุว่า TNFSF13 เป็นหนึ่งในยีนที่เกี่ยวข้องกับ IgAN.27 แท้จริงแล้วในผู้ป่วย IgAN ระดับ APRIL ในซีรัมจะสูงขึ้น28 และระดับนี้สัมพันธ์กับการพยากรณ์โรคของไต28
เพื่อให้ได้ความเข้าใจที่ดีขึ้นเกี่ยวกับกลไกที่เกี่ยวข้องในการผลิต IgA ที่ไกลโคซิเลตมากเกินไปอย่างผิดปกติผ่านการกระตุ้น TLR9 โดยลิแกนด์ CpG oligodeoxynucleotides (ODN) เราใช้หนูเมาส์ ddY ที่มีแนวโน้ม IgAN และเซลล์ IgA1-ที่หลั่ง IgA ของมนุษย์
ผลลัพธ์
การกระตุ้น TLR9 ทำให้อาการบาดเจ็บที่ไตในหนู ddY รุนแรงขึ้นโดยการเพิ่มการผลิต IgA ที่ทำให้เกิดโรคไต
TLR9 สามารถเปิดใช้งานโดยลิแกนด์ที่เกี่ยวข้อง เช่น CpG-ODN เพื่อทดสอบผลของการกระตุ้น TLR9 ในแบบจำลองหนูของ IgAN เราใช้การฉีดลิแกนด์ในหนูเมาส์ ddY ที่มีแนวโน้ม IgAN หนูที่ฉีดด้วย CpG-ODN ได้พัฒนาการเพิ่มจำนวน mesangial และการขยายตัวของเมทริกซ์นอกเซลล์ (รูปที่ 1a) คะแนนจุลพยาธิวิทยาของไตที่อิงตามการเพิ่มจำนวน mesangial และการขยายตัวของเมทริกซ์ mesangial ในหนูเมาส์ที่ฉีดด้วย CpG-ODN นั้นสูงกว่าค่าในหนูควบคุมอย่างมีนัยสำคัญ (P < 0.01;="" รูปที่="" 1a)="" ระดับอัลบูมินในปัสสาวะในหนูเมาส์ที่ฉีดด้วย="" cpg-odn="" มีค่าสูงขึ้นอย่างมีนัยสำคัญเมื่อเทียบกับระดับของอัลบูมินในหนูควบคุม="" (p="">< 0.{{20}}1;="" รูปที่="" 1a)="" เฉพาะหนูเมาส์ที่ฉีดด้วย="" cpg-odn="" เท่านั้นที่พัฒนาการสะสมของ="" mesangial="" ของ="" iga,="" igg="" และส่วนเติมเต็ม="" c3="" (รูปที่="" 1b)="" หนูเมาส์ที่ฉีดด้วย="" cpg-odn="" แสดงระดับ="" iga="" ในซีรัม="" (p="">< 0.01)="" และ="" igg="" (p="">< 0.01)="" ในซีรัมสูงกว่าหนูควบคุม="" (รูปที่="" 1c)="" อย่างมีนัยสำคัญ="" serum="" iga="" จากหนูที่ฉีดด้วยหนู="" cpg-odn="" มีปฏิกิริยากับ="" ricinus="" communis="" agglutinin-i="" (rca-i)="" และ="" sambucus="" nigra="" agglutinin="" lectins="" ที่ต่ำกว่าจากหนูควบคุม="" (รูปที่="" 1c)="" ซึ่งบ่งชี้ว่ามีปริมาณกาแลคโตสและกรดเซียลิกที่ต่ำกว่า="" -ไกลแคนของมิวรีน="" iga="" นอกจากนี้="" ระดับซีรัมของ="" igg-iga="" ic="" ในหนูเมาส์ที่ฉีดด้วย="" cpg-odn="" นั้นสูงกว่าระดับในหนูควบคุมอย่างมีนัยสำคัญ="" (p="">< 0.05;="" รูปที่="" 1c)="">การเปิดใช้งาน TLR9โดย CpG-ODN ส่งผลให้มีการผลิตไกลโคซิเลต IgA และ IgG-IgA IC มากเกินไป ส่งผลให้ภูมิคุ้มกันที่ซับซ้อนการสะสมและการบาดเจ็บของไต
บีเซลล์และเซลล์เดนไดรต์เกี่ยวข้องกับการตอบสนองของ CpG-ODN
เราตรวจสอบประเภทเซลล์ที่เกี่ยวข้องกับการเหนี่ยวนำให้เกิดการผลิต IgA ที่ไกลโคซิเลตมากเกินไปอย่างผิดปกติเพื่อตอบสนองต่อ CpG-ODN บีเซลล์และเซลล์เดนไดรต์ (DC) ถูกแยกออกจากม้ามของหนูเมาส์ ddY โดยใช้แอนติบอดีต้าน CD19 และ CD11c ของเมาส์โดยการคัดแยกเซลล์ที่กระตุ้นด้วยฟลูออเรสเซนซ์ FL ตามลำดับ การกระตุ้น CpG-ODN ของเซลล์ B ที่แยกได้ทำให้เกิดการผลิต IgA มากเกินไป นอกจากนี้ CpG-ODN เพิ่มการผลิต IgA อย่างมีนัยสำคัญเมื่อบีเซลล์ถูกเพาะเลี้ยงร่วมกับ DC (รูปที่ S1) เสริม ผลลัพธ์เหล่านี้ชี้ให้เห็นว่า CpG-ODN กระตุ้นบีเซลล์โดยตรง และ DCS ได้ปรับปรุงการผลิต IgA เพิ่มเติมเมื่อเปิดใช้งาน TLR9
การผลิต APRIL มากเกินไปทำให้การสังเคราะห์ IgA และ IgG-IgA ICs ไกลโคซิเลตผิดปกติ
เราประเมินว่า APRIL และ/หรือ BAFF เกี่ยวข้องกับการสังเคราะห์ IgA ที่ทำให้เกิดภาวะไตอักเสบจากการกระตุ้น TLR9 หรือไม่ การฉีด CpG-ODN ในหนูเมาส์ ddY ทำให้ระดับ APRIL และ BAFF ในซีรัมสูงขึ้นอย่างมีนัยสำคัญ (รูปที่ 2a) ระดับการแสดงออกของ APRIL ในเซลล์ม้ามมีความสัมพันธ์กับการผลิตไกลโคซิเลต IgA และการก่อตัวของ IgG-IgA IC (รูปที่ 2b) ระดับการแสดงออกของ BAFF ในเซลล์ม้ามมีความสัมพันธ์กับการผลิต IgA ที่ไกลโคซิเลตอย่างผิดปกติแต่ไม่มีกับการก่อรูปของ IgG-IgA IC (รูปที่ 2b) นอกจากนี้ ระดับ APRIL ในซีรัม แต่ไม่มี BAFF มีความสัมพันธ์อย่างมีนัยสำคัญกับระดับซีรั่มที่เพิ่มขึ้นของ glycosylated IgA และ IgG-IgA IC อย่างผิดปกติในหนูเมาส์ที่ฉีด CpG-ODN (รูปที่ 2c) การค้นพบนี้ชี้ให้เห็นว่าทั้ง APRIL และ BAFF อาจเกี่ยวข้องกับการผลิตไกลโคซิเลต IgA อย่างผิดปกติ แม้ว่า APRIL อาจเกี่ยวข้องกับการผลิต IgG-IgA IC มากกว่า

รูปที่ 1|CpG-oligodeoxynucleotide (ODN) กระตุ้นการผลิต IgA ที่เกิดจากไตเทียม การฉีดด้วย CpG-ODN ช่วยเพิ่มระดับเลือดของ glycosylated IgA และ IgG-IgA ภูมิคุ้มกันที่ซับซ้อน (IC) ในเลือดอย่างผิดปกติ และทำให้ไตบาดเจ็บมากขึ้นในหนู ddY (ก) หนู ddY ก่อนการพัฒนาของโรคไต IgA(IgAN) ถูกฉีด ip ด้วย CpG-ODN สามครั้งต่อสัปดาห์เป็นเวลา 12 สัปดาห์ ในการวิเคราะห์ทางจุลพยาธิวิทยาของรอยโรคไต หนูเมาส์ที่ฉีดด้วย CpG-ODN แสดงการเพิ่มจำนวนเซลล์ในเซลล์ mesangial และการขยายตัวของเมทริกซ์นอกเซลล์ แผงด้านขวาแสดงการประเมินอาการบาดเจ็บที่ไตโดยการให้คะแนนแบบกึ่งปริมาณ คะแนนการตรวจชิ้นเนื้อของไตซึ่งประเมินโดยเปอร์เซ็นต์ของโกลเมอรูไลที่มีแผลดังกล่าว แสดงให้เห็นว่าอาการบาดเจ็บที่ไตในหนูที่ฉีดด้วย CpG-ODN นั้นรุนแรงขึ้น ระดับอัลบูมินในปัสสาวะในหนูที่ฉีดด้วย CpG-ODN สูงขึ้นอย่างมีนัยสำคัญเมื่อเปรียบเทียบกับหนูในกลุ่มควบคุม แท่งที่แผงด้านล่าง ¼ ค่าเฉลี่ย ± SEM (b) การวิเคราะห์ทางอิมมูโนฮิสโตเคมีของสิ่งสะสมของไต IgA, IgG และ C3 เฉพาะหนูเมาส์ที่ฉีดด้วย CpG-ODN เท่านั้นที่พัฒนาสิ่งสะสมในแนวขวางของ IgA, IgG และ C3 (c) ระดับซีรั่มของ IgA, IgG และ IgG-IgA ICs เพิ่มขึ้นอย่างมีนัยสำคัญหลังการรักษา CpG-ODN เป็นเวลา 12 สัปดาห์ เซรั่ม IgA ในหนูที่ฉีดด้วย CpG-ODN แสดงปฏิกิริยาที่ต่ำกว่าอย่างมีนัยสำคัญกับ Ricinus communis agglutinin-I (RCA-I) และ Sambucus nigra agglutinin (SNA) เลกตินมากกว่า IgA ในหนูควบคุม ผลลัพธ์เหล่านี้บ่งชี้ว่าการฉีด CpG-ODN เพิ่มระดับซีรั่มของ glycosylated IgA อย่างผิดปกติ แต่ละจุดจะแสดง *P < 0.05,="" **p="">< 0.01.="" od="" ความหนาแน่นของแสง="" หากต้องการเพิ่มประสิทธิภาพการรับชมภาพนี้="" โปรดดูเวอร์ชันออนไลน์ของบทความนี้ที่="">
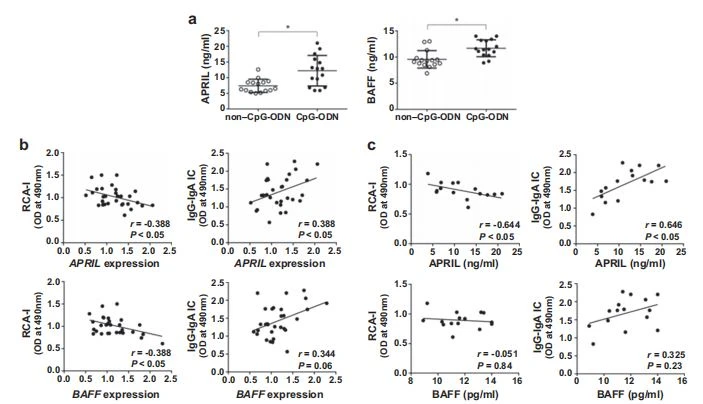
รูปที่ 2|ความสัมพันธ์ระหว่างการผลิตที่มากเกินไปของลิแกนด์ที่เหนี่ยวนำการงอกขยาย (APRIL) และไกลโคซิเลต IgA อย่างผิดปกติในหนูเมาส์ที่ฉีดด้วย CpG-oligodeoxynucleotide (ODN) (a) การฉีดหนู ddY ที่มี CpG-ODN เพิ่มระดับซีรั่มของ B-cell activating factor (BAFF) และ APRIL (b) ระดับการแสดงออกของ BAFF ในเซลล์ม้ามทั้งตัวมีความสัมพันธ์กับปฏิกิริยาที่ลดลงกับเลกตินของ Ricinus communis agglutinin-I (RCA-I) แต่ไม่สัมพันธ์กับการก่อตัวของ IgG-IgA ภูมิคุ้มกันเชิงซ้อน (IC) ในขณะเดียวกัน ระดับการแสดงออกของ APRIL สัมพันธ์กับการผลิต IgA ที่ไกลโคซิเลตอย่างผิดปกติและการก่อตัวของ IgG-IgA IC (c) ในหนูที่ฉีดด้วย CpG-ODN ระดับ APRIL ในซีรัมสัมพันธ์กับปฏิกิริยาที่ลดลงของ IgA กับ RCA-I lectin และระดับ IgG-IgA IC ที่เพิ่มขึ้น ระดับซีรัมของ BAFF ไม่มีความสัมพันธ์กับการผลิตไกลโคซิเลต IgA และการก่อรูปของ IgG-IgA IC บาร์ ¼ ค่าเฉลี่ย - SEM *P < 0.05.="" od="">
IL-6 ที่เหนี่ยวนำให้เกิดการผลิต IgA . ที่ไกลโคซิเลตอย่างผิดปกติ
ระดับซีรัมของ IL{{0}} ในหนูเมาส์ที่ฉีดด้วย CpG-ODN สูงขึ้นอย่างมีนัยสำคัญเมื่อเปรียบเทียบกับหนูเมาส์ควบคุม (P < 0.05;="" รูปที่="" 3a)="" ด้วยการใช้เซลล์ม้ามของหนูเมาส์="" ddy="" ที่มีแนวโน้ม="" igan="" เราตรวจสอบว่า="" tlr9-กระตุ้นการกระตุ้นเซลล์และการผลิต="" iga="" ไกลโคซิเลตมากเกินไปโดย="" il-6="" เป็นตัวกลางหรือไม่="" การกระตุ้น="" cpg-odn="" ช่วยเพิ่มการผลิต="" il-6="" โดยเซลล์ม้ามในหลอดทดลอง="" การเพิ่ม="" il-6="" ลงในอาหารเลี้ยงเชื้อของเซลล์ม้ามเพิ่มการผลิต="" iga="" นอกจากนี้="" il-6="" ยังเพิ่มการสังเคราะห์="" iga="" ที่ไกลโคซิเลตอย่างผิดปกติและการก่อตัวของ="" igg-iga="" ic="" และการผลิต="" april="" ที่เพิ่มขึ้น="" (รูปที่="" 3a)="" il-6–แอนติบอดีที่ทำให้เป็นกลางลด="" cpg-odn–="" iga="" ทั้งหมดที่ถูกเหนี่ยวนำให้เกิด,="" การผลิตไกลโคซิเลต="" iga="" อย่างผิดปกติ,="" และการสร้าง="" igg-iga="" ic="" (รูปที่="" 3b)="" การค้นพบนี้บ่งชี้ว่าการกระตุ้น="" tlr9="" ถูกสื่อกลาง="" อย่างน้อยก็ในบางส่วนโดย="" il-="" 6="" นอกจากนี้="" วิถีทางไกล่เกลี่ยของ="" tlr9-="" อาจเกี่ยวข้องกับการผลิต="" iga="">

cistancheสามารถปรับปรุงได้ไตการทำงาน
APRIL และ IL-6 ปรับปรุงการสังเคราะห์ Gd-IgA1 ในเซลล์คัดหลั่ง IgA ของมนุษย์1-
เราทดสอบเพิ่มเติมว่า APRIL และ IL-6 เป็นเรื่องธรรมดาสำหรับผู้ไกล่เกลี่ยหลักที่ช่วยเพิ่มการผลิต IgA ที่ทำให้เกิดโรคไตใน IgA1-ที่หลั่งเซลล์ การเสริม CpG-ODN เพิ่มการเพิ่มขึ้นของ IL-6, การแสดงออกของ APRIL, การผลิตโปรตีน APRIL และการผลิต IgA และ Gd-IgA1 (รูปที่ 4a) การกระตุ้นด้วย IL-6 และ APRIL ช่วยเพิ่มการผลิต IgA และ Gd-IgA1 (รูปที่ 4b, c) ผลของการกระตุ้น CpG-ODN ต่อการผลิต IgA และ Gd-IgA1 ลดลงบางส่วนโดย IL-6-แอนติบอดีที่ทำให้เป็นกลาง (รูปที่ 4d) นอกจากนี้ APRIL ขนาดเล็กที่รบกวน (si)RNA knockdown ยังลดการผลิตของ IgA และ Gd-IgA1 ที่เกิดจากการกระตุ้น IL-6 (รูปที่ 4b) ซึ่งบ่งชี้ว่า APRIL และ IL-6 ส่งเสริมการสร้าง Gd ร่วมกัน -IgA1.
อภิปรายผล
Mesangial IgA ใน IgAN ของมนุษย์ไม่รวมอยู่ในคลาสย่อย IgA1 ที่แสดง O-glycosylation ที่ผิดปกติ 29,30 IgA1 ของมนุษย์มีบริเวณบานพับที่มี O-glycans ซึ่งไม่มีอยู่ใน IgA.6,31,32 ของหนู อย่างไรก็ตาม ไกลโคซิเลชันที่ผิดปกติของ N-glycans เกี่ยวข้องกับการก่อโรคของแบบจำลองหนูของ IgAN ในหนูเมาส์ ddY โดยมี ความสูงของไกลโคซิเลต IgA และ IC ที่มี IgA ผิดปกติ 11,12 การดัดแปลงอย่างผิดปกติของคาร์โบไฮเดรต IgA ใน O- หรือ N-glycans เป็นคุณสมบัติเฉพาะของ IC ที่ประกอบด้วย IgA ที่เกี่ยวกับไต
การศึกษาหลายชิ้นแสดงให้เห็นการกระตุ้น TLR9 ในการลุกลามของ IgAN.17–19 ในการศึกษานี้ เราแสดงให้เห็นว่าการกระตุ้น TLR9 โดยการฉีด ip ของ CpG-ODN ในหนูเมาส์ ddY ทำให้อาการบาดเจ็บที่ไตรุนแรงขึ้นพร้อมกับการสะสมของ IgA และ IgG ของไต น่าจะเป็นเพราะ ของระดับซีรั่มที่เพิ่มขึ้นของ glycosylated IgA และ IgG-IgA IC อย่างผิดปกติ ยิ่งไปกว่านั้น เราแสดงให้เห็นว่าการกระตุ้น TLR9 เกี่ยวข้องกับการสังเคราะห์ Gd-IgA1 ใน IgA1-การคัดแยกเซลล์ IgA ของมนุษย์

รูปที่ 3|ผลของ CpG-oligodeoxynucleotide (ODN) และ interleukin (IL)-6 ต่อเซลล์ม้ามที่เพาะเลี้ยงของหนูเมาส์ ddY (a) ระดับซีรัมของ IL-6 ในหนูเมาส์ที่ฉีดด้วย CpG-ODN สูงขึ้นอย่างมีนัยสำคัญเมื่อเปรียบเทียบกับหนูเมาส์กลุ่มควบคุม การกระตุ้น CpG-ODN เพิ่มการผลิต IL-6 ของ splenocytes ของหนูเมาส์ ddY ในวัฒนธรรม การฟักไข่ของ splenocytes ของหนูเมาส์ ddY ที่มี recombinant IL-6 เพิ่มการผลิต IgA ทั้งหมดและไกลโคซิเลต IgA อย่างผิดปกติ ส่งผลให้เกิด IgG-IgA ภูมิคุ้มกันเชิงซ้อน (IC) Recombinant IL-6 เพิ่มการผลิตที่มากเกินไปของลิแกนด์ที่เหนี่ยวนำการงอกขยาย (APRIL) (b) เซลล์ม้ามในวัฒนธรรมถูกกระตุ้นด้วย CpG-ODN เมื่อมีหรือไม่มี IL-6–แอนติบอดีที่ทำให้เป็นกลาง แอนติบอดีต้าน IL-6 ลดการผลิต IgA ทั้งหมดและไกลโคซิเลต IgA อย่างผิดปกติ และทำให้การก่อรูปของ IgG-IgA IC ที่เหนี่ยวนำโดย CpG-ODN ลดลง แท่ง ¼ ค่าเฉลี่ย ± SEM * P < 0.05,="" **p="">< 0.01.="" od="" ความหนาแน่นของแสง="" pbs,="" น้ำเกลือบัฟเฟอร์ฟอสเฟต;="" rca-i,="" ricinus="" communis="" agglutinin-i;="" sna,="" ซัมบูคัส="" นิกรา="">

รูปที่ 4|ผลของ CpG-oligodeoxynucleotide (ODN) หรือการเสริมลิแกนด์ที่กระตุ้นการงอกขยาย (APRIL) ต่อ IgA ของมนุษย์1-ที่หลั่งสายพันธุ์ของเซลล์บน IgA1, IgA1 ที่ขาดกาแลคโตส (Gd-IgA1) และอินเตอร์ลิวคิน (IL){{ 9}} การผลิต (a) การเสริม CpG-ODN ช่วยเพิ่มการผลิต IL-6 CpG-ODN ปรับปรุงการแสดงออกของยีนของ APRIL การวิเคราะห์ Western blot แสดงให้เห็นว่า CpG-ODN เพิ่มระดับโปรตีนของ APRIL ผลลัพธ์ถูกประเมินโดย densitometrically การกระตุ้นด้วย CpG-ODN ทำให้เกิดการผลิต IgA และ Gd-IgA1 (b) APRIL ขนาดเล็กที่รบกวน RNA (siRNA) การล้มลงทำให้ IL -6 เกิดการผลิตมากเกินไปของ IgA และ Gd-IgA1 (c) IgA{{2{{30}}}}ซึ่งสร้างเซลล์ที่ถูกกระตุ้นด้วย APRIL ลูกผสมสร้าง IgA และ Gd-IgA1 มากขึ้น (d) IgA1-เซลล์ที่หลั่งออกมาถูกบ่มด้วยแอนติบอดีต้าน IL-6 หลังการกระตุ้น CpG-ODN การผลิตที่เพิ่มขึ้นของ IgA และ Gd-IgA1 ที่เหนี่ยวนำโดย CpG-ODN ลดลงโดยแอนติบอดีต้าน IL-6 และโดยการล้มลงของ siRNA ของ APRIL แท่ง ¼ ค่าเฉลี่ย ± SEM *P < 0.05,="" **p="">< 0.01.="" gadph,="" กลีซาลดีไฮด์-3-ฟอสเฟต="" ดีไฮโดรจีเนส;="" pbs="">
เราประเมินกลไกโดยที่การกระตุ้น TLR9 เป็นสื่อกลางในการผลิต IgA ที่มีไกลโคซิเลตอย่างผิดปกติ BAFF และ APRIL เป็นที่รู้จักสำหรับบทบาทของพวกเขาในการอยู่รอดและการสร้างความแตกต่างของเซลล์บี McCarthy et al.33 แสดงให้เห็นว่า BAFF-overexpressing หนูดัดแปรพันธุกรรมพัฒนาแหล่งสะสมของ IgA mesangial ที่มีอาการบาดเจ็บที่ไตและความผิดปกติของระบบปัสสาวะ 33 เมื่อเร็ว ๆ นี้เราแสดงให้เห็นว่าการแสดงออกของยีน APRIL นั้นสูงขึ้นในศูนย์การงอกของต่อมทอนซิลของผู้ป่วย IgAN นอกจากนี้ การแสดง APRIL มากเกินไปในศูนย์เพาะเลี้ยงต่อมทอนซิลมีความสัมพันธ์กับระดับ Gd-IgA1 ในซีรัมและความรุนแรงของโรคในผู้ป่วยที่มี IgAN.34 การค้นพบนี้ชี้ให้เห็นว่าทั้ง BAFF และ APRIL อาจเกี่ยวข้องกับการเกิดโรคของ IgAN อย่างไรก็ตาม ความสัมพันธ์ระหว่างการเปิดใช้งาน BAFF/APRIL และ TLR9 นั้นไม่ชัดเจน ในการศึกษานี้ การกระตุ้น TLR9 เพิ่มการแสดงออกของยีนและระดับ APRIL ในซีรัม ระดับซีรัมของไกลโคซิเลต IgA ผิดปกติมีความสัมพันธ์กับระดับการแสดงออกของ BAFF และ APRIL ในม้ามโต อย่างไรก็ตาม ระดับ IgG-IgA IC ในซีรัมสัมพันธ์กับระดับการแสดงออกของ APRIL แต่ไม่ใช่ BAFF นอกจากนี้ ระดับ APRIL ในซีรัมยังสัมพันธ์กับการผลิต IgA ไกลโคซิเลตและ IgG-IgA IC ที่มากเกินไปอย่างผิดปกติในหนูที่กระตุ้นด้วย TLR9- ใน IgA1-การหลั่งเซลล์ การกระตุ้น TLR9 ยังทำให้เกิดการผลิต Gd-IgA1 มากเกินไปผ่านทาง APRIL ผลลัพธ์เหล่านี้ชี้ให้เห็นว่า APRIL มีบทบาทสำคัญใน TLR9-เกิดการผลิต IgA ที่เกี่ยวกับไตมากเกินไปและการก่อตัวของ IgG-IgA IC
การตอบสนองตามประเภทเซลล์เพื่อกำหนดบทบาทของเซลล์ B และ T และ DC ควรมีความชัดเจน ในการศึกษานี้ เราประเมินบทบาทของบีเซลล์และดีซีพลาสมาไซทอยด์ TLR9 แสดงออกโดย DC, เซลล์ B และมาโครฟาจ แต่ไม่ใช่โดย T เซลล์ 35–37 ทราบถึงการมีส่วนร่วมของ BAFF/APRIL ต่อการตอบสนองต่อแอนติบอดีที่ไม่ขึ้นกับเซลล์ T38,39 ในที่นี้ เราทดสอบว่าการกระตุ้น TLR9 สามารถเพิ่มการสังเคราะห์ของ TLR9 ได้หรือไม่ IgA ที่ไกลโคซิเลตอย่างผิดปกติและการก่อรูปของ IgG-IgA IC ผ่านทาง APRIL ในลักษณะที่ไม่ขึ้นกับทีเซลล์ เรายังใช้สำเนาเซลล์ IgA1- ของมนุษย์ที่โคลนแล้ว และแสดงให้เห็นว่าการกระตุ้น TLR9 ช่วยเพิ่มการผลิต Gd-IgA1 ผ่าน APRIL และ IL-6 ซึ่งแนะนำว่ากระบวนการนี้ไม่ขึ้นกับเซลล์ T นอกจากนี้เรายังประเมินบทบาทของเซลล์ B และ DC เราแสดงให้เห็นว่า CpG-ODN จำเพาะสำหรับเซลล์ B และ DC เพิ่มการผลิตไกลโคซิเลต IgA อย่างผิดปกติในเซลล์ม้ามทั้งหมด นอกจากนี้เรายังตรวจสอบว่าการกระตุ้น CpG-ODN ในหลอดทดลอง สามารถเพิ่มการผลิต IgA ได้หรือไม่ การกระตุ้น CpG-ODN ของเซลล์ B ที่แยกได้ทำให้เกิดการผลิต IgA มากเกินไป นอกจากนี้ CpG-ODN เพิ่มการผลิต IgA อย่างมีนัยสำคัญเมื่อบีเซลล์ถูกเพาะเลี้ยงร่วมกับ DC (รูปที่ S1) เสริม ผลลัพธ์เหล่านี้ชี้ให้เห็นว่าการเปิดใช้งาน CpG-ODN มีผลมากกว่าการผลิต IgA และไกลโคซิเลชันผิดปกติเป็นสื่อกลางโดย TLR9 ในลักษณะที่ไม่ขึ้นกับเซลล์ T
IL-6 เป็นที่รู้จักในการเน้นย้ำการเพิ่มจำนวนของเซลล์ที่สร้างอิมมูโนโกลบูลินและการสร้างความแตกต่างที่ขั้วของเซลล์พลาสมา 40–42 นอกจากนี้ IL-6 อาจเป็นไซโตไคน์ที่ผู้สมัครหลักสำหรับการสร้างความแตกต่างของเซลล์ตัวช่วย T .43,44 เซลล์ตัวช่วยฟอลลิคูลาร์จำเป็นสำหรับการเจริญเติบโตของสัมพรรคภาพ B-cell, การรวมตัวของสวิตช์คลาส และการสร้างเซลล์หน่วยความจำ B และพลาสมาภายในศูนย์เชื้อโรค43,44 ในรูปแบบเมาส์ลูปัส IL-6 การขาดสารป้องกัน T follicular helper cell differentiation และ germinal-center B-cell expansion ส่งผลให้การผลิต autoantibody ลดลง 45 การศึกษานี้ชี้แจงว่าการกระตุ้น TLR9 โดย CpG-ODN ช่วยเพิ่มการผลิต IL-6 ใน splenocytes ของ IgAN ของหนู IL-6 ทำให้เกิดการผลิตมากเกินไปของ IgA และ IgG-IgA IC ที่ไกลโคซิเลตอย่างผิดปกติในแบบจำลองหนูของ IgAN ในเซลล์ IgA ของมนุษย์1-ที่หลั่งออกมา เรายืนยันว่า IL-6 เพิ่มการผลิต Gd-IgA1.24 การค้นพบของเราแนะนำว่า IL-6 อาจเป็นหนึ่งในโมเลกุลหลักที่กระตุ้นการผลิต IgA ที่ทำให้เกิดภาวะไตมากเกินไป ไกล่เกลี่ยโดยการเปิดใช้งาน TLR9
APRIL มีบทบาทสำคัญในการสลับคลาส IgA และการสร้างความแตกต่างของพลาสมาไซตอยด์46,47 IL-6 ส่งเสริมการแยกส่วนปลายของเซลล์บีกับเซลล์พลาสมาที่หลั่ง IgA41,42 การศึกษาในปัจจุบันแสดงให้เห็นว่า IL{{7} } การกระตุ้นกระตุ้นการผลิต APRIL จากนั้นเราตั้งสมมติฐานว่ามีความสัมพันธ์ระหว่าง APRIL และ IL-6 ที่เป็นสื่อกลางโดยการกระตุ้น TLR9 ที่เหนี่ยวนำให้เกิดการผลิตไกลโคซิเลต IgA อย่างผิดปกติ เราพบว่า IL-6 – แอนติบอดีที่เป็นกลางไม่ได้ขัดขวางการผลิตมากเกินไปที่เกิดจาก CpG-ODN ของ Gd-IgA1 และ siRNA ที่ล้มลงของ APRIL ลดการผลิตมากเกินไปของ Gd-IgA1 ที่เกิดจาก IL-6 ข้อมูลเหล่านี้ชี้ให้เห็นว่า APRIL และ IL-6 ส่งเสริมการผลิต Gd-IgA1 โดยอาศัยการเปิดใช้ TLR9 ร่วมกัน นอกจากนี้ ทั้ง IL-6–neutralizing antibody และ siRNA knockdown ของ APRIL ลดการผลิตของ IgA และ Gd-IgA1 มากกว่า IL-6–ทำให้เป็นกลางแอนติบอดีเพียงอย่างเดียว ดังนั้นวิถีการเปิดใช้งาน TLR9 จึงเกี่ยวข้องกับผลเสริมฤทธิ์กันของ IL-6 และ APRIL ต่อการผลิตแอนติบอดีและไกลโคซิเลชัน (รูปที่ 5) การศึกษาล่าสุดยังระบุด้วยว่า IL-6 ร่วมกับ APRIL ทำให้เกิดการสร้างและการอยู่รอดของเซลล์พลาสมา 48,49 อย่างไรก็ตาม จำเป็นต้องมีการศึกษาในอนาคตเพื่อชี้แจงเส้นทางการส่งสัญญาณระหว่างเซลล์ระหว่าง APRIL และ IL-6 ใน การผลิต IgA ที่เกิดจากไต
cistancheสำหรับไตการติดเชื้อ
สรุปแล้ว,การเปิดใช้งาน TLR9อาการบาดเจ็บที่ไตรุนแรงขึ้นในแบบจำลองของหนูของ IgAN โดยการเพิ่มการผลิตของไกลโคซิเลต IgA อย่างผิดปกติและการก่อตัวของ IgG-IgA IC ในกระบวนการนี้ การผลิต APRIL และ IL-6 ที่มากเกินไปซึ่งเกิดจากการกระตุ้น TLR9 ช่วยเพิ่มการผลิต IgA ที่ทำให้เกิดโรคไตได้ นอกจากนี้ การศึกษาในปัจจุบันได้ชี้แจงว่า APRIL และ IL-6 ทำงานประสานกัน เช่นเดียวกับอิสระในการผลิต IgA ที่มีไกลโคซิเลตอย่างผิดปกติ การค้นพบนี้อาจแจ้งการพัฒนาแนวทางการรักษาแบบใหม่สำหรับ IgAN ในอนาคต
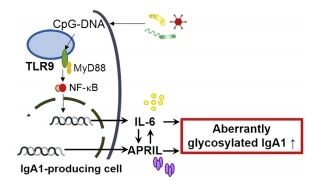
รูปที่ 5|บทบาทเสริมฤทธิ์กันระหว่าง Toll-like receptor 9 (TLR9), ลิแกนด์ที่กระตุ้นการงอกขยาย (APRIL) และอินเตอร์ลิวคิน (IL)-6 ในเซลล์ที่ผลิต IgA ใน IgA nephropathy (IgAN) การเปิดใช้งาน TLR9 ทำให้เกิดการผลิต APRIL และ IL-6 ส่งผลให้
การผลิต IgA ไกลโคซิเลตมากเกินไปอย่างผิดปกติ APRIL และ IL-6 ทำงานร่วมกันเพื่อส่งเสริมการสร้าง IgA ที่ไกลโคซิเลตอย่างผิดปกติ นอกจาก APRIL ที่กระตุ้นการผลิต IL-6 ตามที่รายงานก่อนหน้านี้ IL-6 ยังสามารถปรับปรุงการสังเคราะห์ APRIL ได้อีกด้วย นอกจากนี้ APRIL และ IL-6 ยังส่งเสริมการผลิตไกลโคซิเลต IgA อย่างผิดปกติ NF-kB ปัจจัยนิวเคลียร์-kB
วิธีการ
สัตว์และโปรโตคอลการทดลอง
เมาส์ ddY ที่มีแนวโน้ม IgAN เป็นแบบจำลองที่รู้จักของ IgAN ที่เกิดขึ้นเอง โดยมีอุบัติการณ์ผันแปรและขอบเขตของการบาดเจ็บของไตที่เลียนแบบหนู IgAN.10 ddY ของมนุษย์ แบ่งออกเป็น 3 กลุ่มตามการปรากฏของไตเสียหาย: หนูที่มีหนูที่เริ่มมีอาการเร็วหรือช้าและหนูหยุดนิ่ง โรคที่เริ่มต้นในหนู ddY มีโปรตีนในปัสสาวะและการสะสมของ IgA ในไตหลังอายุ 20 สัปดาห์13 ดังนั้นเราจึงใช้หนู ddY ภายในอายุ 18 สัปดาห์เพื่อประเมินว่าการกระตุ้น TLR9 ทำให้ IgAN รุนแรงขึ้นในแบบจำลองนี้หรือไม่ หนูเมาส์ ddY เพศเมียทั้งหมด 30 ตัว (SLC Japan, Shizuoka, Japan) ได้รับการดูแลที่สถานที่เลี้ยงสัตว์ของมหาวิทยาลัย Juntendo กรุงโตเกียว ประเทศญี่ปุ่น หนูได้รับอาหารเชาปกติ (Oriental Yeast Co., Tokyo, Japan) และน้ำเปล่าและถูกเลี้ยงไว้ในห้องปลอดเชื้อก่อโรคโดยเฉพาะ โปรโตคอลการทดลองได้รับการอนุมัติโดยคณะกรรมการทบทวนจริยธรรมเพื่อการทดลองในสัตว์ของคณะแพทยศาสตร์มหาวิทยาลัย Juntendo เมื่ออายุได้ 6 สัปดาห์ หนูจะถูกสุ่มแบ่งเป็น 2 กลุ่ม กลุ่มหนึ่งได้รับ CpG-ODN ที่ฉีด ip 3 ครั้งต่อสัปดาห์เป็นเวลา 12 สัปดาห์; กลุ่มที่สอง (กลุ่มควบคุม) ถูกฉีดด้วย non–CpG-ODN CpG-ODN และ non–CpG-ODN ถูกสังเคราะห์ทางเคมี (Invitrogen; Thermo Fisher Scientific, Kanagawa, Japan) ลำดับของ ODN คือ TCGTCGTT TTCGGCGCGCGCCG หรือ TGCTGCTTTTGGGGCCCCCC (50/30 ) สำหรับ CpG หรือ ODN ที่ไม่ใช่ CpG ตามลำดับ
การหาค่า IgA, IgG, IgG-IgA IC และไกลโคซิเลต IgA อย่างผิดปกติในซีรัมของหนู
เก็บตัวอย่างเลือดจากหลอดเลือดดำแก้ม เซรั่ม IgA, IgG และ IgG-IgA IC ถูกวัดโดยการทดสอบอิมมูโนดูดซับที่เชื่อมโยงกับแซนวิชด้วยเอนไซม์ (ELISA; Bethyl Laboratories, Montgomery, TX) โดยใช้วิธีดัดแปลงตามรายงานก่อนหน้าของเรา50 การสอบวิเคราะห์การจับกับเลกตินคือ ใช้ในการเข้าถึงไกลโคฟอร์มของ IgA Biotinylated RCA-I (Vector Laboratories, Burlingame, CA) และ Sambucus nigra bark lectin (Vector Laboratories) ที่จำแนกกาแลคโตสและกรดเซียลิกที่ติดอยู่กับกาแลคโตส (ส่วนใหญ่ในการเชื่อมโยง a2,6) ตามลำดับ ถูกนำมาใช้ในการทดสอบนี้ 51 ซีรั่มเจือจาง ถูกเติมที่ 100 ng ของ IgA ต่อหลุม แผ่นไมโครไทเทอร์ที่เคลือบด้วย IgA ต้านหนูเมาส์ 1 มก./มล. (100 มล./หลุม) สำหรับการหาปริมาณของ IgA ในซีรัมถูกบ่มด้วยตัวอย่างเหล่านี้ และจากนั้นเติม Sambucus nigra agglutinin หรือ RCA-I ที่เติมไบโอตินด้วยไบโอติน ใช้คอนจูเกต Avidin–horseradish peroxidase (ExtrAvidin; Sigma-Aldrich, St. Louis, MO) ระดับซีรัมของ IgA ที่จับกับไกลโคซิเลตอย่างผิดปกติถูกแสดงออกในหน่วย (1 หน่วยเป็นความหนาแน่นเชิงแสง 1.0 วัดที่ 490 นาโนเมตร) ระดับเซรั่มของ APRIL และ BAFF ถูกวัดโดยใช้ชุด APRIL ELISA ของเมาส์ (MyBioSource, ซานดิเอโก, แคลิฟอร์เนีย) และชุด BAFF ELISA ของเมาส์ (R&D Systems, Minneapolis, MN) ตามโปรโตคอลของผู้ผลิต
การทดสอบสำหรับ Gd-IgA1 ที่ผลิตโดย IgA ของมนุษย์1-การหลั่งเซลล์
แซนด์วิช ELISA สำหรับ Gd-IgA1 ถูกสร้างขึ้นโดยใช้ Gd-IgA1– แอนติบอดีจำเพาะ (IBL, Japan)52 Gd-IgA1–แอนติบอดีจำเพาะ (7.5 มก./มล.) ที่เจือจางในสารละลายน้ำเกลือบัฟเฟอร์ฟอสเฟตถูกเคลือบบนจาน ELISA เป็นเวลา 18 ปี ชั่วโมงที่อุณหภูมิห้อง ตัวอย่างถูกนำไปใช้และบ่มเป็นเวลา 2 ชั่วโมงที่อุณหภูมิห้อง เพลตถูกล้างและบ่มเป็นเวลา 2 ชั่วโมงที่อุณหภูมิห้องด้วย 1:1000- แอนติ-ฮิวแมน IgA1 a1 a1 ของมนุษย์ที่ถูกคอนจูเกตด้วยเมาส์แรดเปอร์ออกซิเดสที่เจือจางแล้วของหนูเมาส์ 1-โมโนโคลนัลแอนติบอดีแบบสายโซ่ (เซาเทิร์นไบโอเทค, เบอร์มิงแฮม, AL) หลังจากล้างจานได้รับการพัฒนาด้วยสารละลายโอฟีนิลีนไดเอมีน SIG-MAFAST (Sigma-Aldrich) และปฏิกิริยาหยุดลงด้วยการเติมกรดซัลฟิวริก 1 โมลาร์ (วาโกะ โอซาก้า ญี่ปุ่น) ระดับของ Gd-IgA1 ถูกอนุมานโดยอ้างถึงเส้นโค้งมาตรฐาน (4-การปรับเส้นโค้งลอจิสติกส์พารามิเตอร์) ของความหนาแน่นเชิงแสงที่ 490 นาโนเมตร และแสดงออกเป็นหน่วย Gd-IgA1 ที่สร้างด้วยเอนไซม์จาก IgA152 ในพลาสมาของมนุษย์ถูกเจือจางตามลำดับ (1.37–1000 ng/ml) เพื่อสร้างเส้นโค้งมาตรฐาน ในการศึกษานี้ 1 หน่วยถูกกำหนดเป็น 1 ng/mL ของมาตรฐาน Gd-IgA1.52
การประเมินอาการบาดเจ็บที่ไตในหนู ddY
ไตwere removed after perfusion with normal saline solution. Renal tissue specimens for microscopic examination were fixed in 20% formaldehyde, embedded in paraffin, cut into 3-mm-thick sections, and then stained with periodic acid–Schiff. Specimens were quantitatively analyzed to determine the percentage of glomeruli with segmental and global sclerosis and/or mesangial cell proliferation and/or increase in the mesangial matrix. Each section was scored semiquantitatively for percentages of glomeruli with aforementioned lesions (0, 0%; 1, 1% to 24%; 2, 25% to 49%; and 3, >50 เปอร์เซ็นต์ของ 20 glomeruli)13,53,54 คะแนนสูงสุดทั้งหมดสำหรับแต่ละส่วนคือ 9 ตัวอย่างไตสำหรับ immunofluorescence ถูกแช่ในสารประกอบอุณหภูมิการตัดที่เหมาะสมที่สุด (Sakura Finetek Japan Co. โตเกียว ประเทศญี่ปุ่น) และเก็บไว้ที่ –80 องศา ชิ้นงานทดสอบถูกตัดเป็นท่อนๆ ที่มีความหนา 3-มม. ตรึงด้วยอะซิโตนที่ –20 องศาเป็นเวลา 5 นาที ล้างด้วยน้ำเกลือบัฟเฟอร์ฟอสเฟต บล็อกด้วยสารปิดกั้น (DS Pharma Biomedical Co., Osaka, Japan) ที่อุณหภูมิห้องเป็นเวลา 30 นาที แล้วฟักที่อุณหภูมิห้องเป็นเวลา 2 ชั่วโมงด้วยแอนติบอดีหลักต่อไปนี้: IgA ที่ต่อต้านหนูในหนูแพะ Alexa conjugated แพะต่อต้านหนู IgG และหนูต่อต้าน-C3 (Bethyl Laboratories) หลังจากล้างอีก 3 ครั้งด้วยน้ำเกลือบัฟเฟอร์ฟอสเฟต สไลด์ก็ถูกติดตั้งด้วยสื่อสำหรับยึด (Dako, Tokyo, Japan) ตัวอย่างถูกวิเคราะห์และถ่ายภาพโดยใช้กล้องจุลทรรศน์เลเซอร์แบบคอนโฟคอล (Olympus Corporation, Tokyo, Japan)
ปฏิกิริยาลูกโซ่โพลีเมอเรสเชิงปริมาณแบบเรียลไทม์
สกัด RNA จากเซลล์ม้ามโดยใช้สารละลาย Torizol (Invitrogen, Tokyo, Japan) และทำให้บริสุทธิ์ด้วย RNeasy Mini Kit (74106; Qiagen, Valencia, CA) ปฏิกิริยาลูกโซ่โพลีเมอเรสเชิงปริมาณแบบเรียลไทม์ดำเนินการโดยใช้ระบบปฏิกิริยาลูกโซ่โพลีเมอเรส Applied Biosystems 7500 Real-Time โดยใช้ SYBR Green PCR Master Mix (Applied Biosystems, Tokyo, Japan) และไพรเมอร์เฉพาะ: mouse TLR9 forward primer TCTCCCAACATGGTTCCGTCG, reverse primer TGCAGTCCAGGCCATGA; เมาส์ MyD88 ไพรเมอร์ไปข้างหน้า GCACCTGTGTCTGGTCCATT, ไพรเมอร์ย้อนกลับ CTGTTGGA CACCTGGAGAGA; และยีนดูแลดูแลบ้าน กลีซาลดีไฮด์-3-ฟอสเฟต ดีไฮโดรจีเนส ฟอร์เวิร์ดไพรเมอร์ CATTGTGGAAG GGCTCATGA รีเวิร์สไพรเมอร์ TCTTCTGGGTGGCAGTGATG สภาวะการขยายมีดังนี้: อุ่นก่อนที่อุณหภูมิ 95 องศาเป็นเวลา 20 วินาที และจากนั้น 40 รอบของการเปลี่ยนสภาพที่ 95 องศาเป็นเวลา 3 วินาที และการหลอมและการต่อขยายที่ 60 องศาเป็นเวลา 30 วินาที การทดสอบการแสดงออกของยีน TaqMan เฉพาะ Homo sapiens (Life Technologies, Carlsbad, CA) ถูกซื้อสำหรับไพรเมอร์ของ APRIL, Hs00601664_g1, Mm03809849-s1 และ BAFF, Mm01168134-m1 . เงื่อนไขการหมุนเวียนของปฏิกิริยาลูกโซ่โพลีเมอเรสของ TaqMan มีดังนี้: อุ่นก่อนที่อุณหภูมิ 95 องศาเป็นเวลา 20 วินาที จากนั้นปรับสภาพ 40 รอบที่ 95 องศาเป็นเวลา 3 วินาที และการหลอมและยืดออกที่ 60 องศาเป็นเวลา 30 วินาที
การศึกษาในหลอดทดลองกับม้ามโตของหนู ddY
เซลล์ม้ามถูกเพาะเลี้ยงในอาหารเลี้ยงเชื้อ Roswell Park Memorial Institute-1640 ที่เสริมด้วยซีรัมของทารกในครรภ์ 20 เปอร์เซ็นต์ สเตรปโตมัยซิน 100 มก./มล. และเพนิซิลลิน 100 ยู/มล. เซลล์เม็ดเลือดแดงถูกสลายใน Red Blood Cell Lysing Buffer (R7757; Sigma-Aldrich) ที่อุณหภูมิห้องเป็นเวลา 1 นาที ตามด้วยการล้างใน Roswell Park Memorial Institute–1640 medium.50 การเพาะเลี้ยงเซลล์ถูกเก็บไว้ในตู้ฟักที่มีความชื้น 37 องศาด้วย ร้อยละ 5 CO2 คลาส C CpG-ODN (TCGTCGTTTTCGGCGCGCGCCG) ถูกใช้เป็นลิแกนด์ TLR9 IL-6 ลูกผสม, แอนติบอดีต้าน IL-6 และกลุ่มควบคุมไอโซไทป์ IgG1 ของหนูแรทได้รับมาจากระบบ R&D เซลล์ถูกเพาะเลี้ยงด้วยความเข้มข้นปานกลางหรือความเข้มข้นที่แนะนำของ CpG-ODN, 10 ng/ml recombinant IL-6 และแอนติ-IL6 แอนติบอดี 100 นาโนกรัม/มิลลิลิตร IgA, IgA ที่ไกลโคซิเลตอย่างผิดปกติ, IgG-IgA IC และ APRIL ที่ผลิตโดยเซลล์ม้ามถูกวัดโดย ELISA หลังจากการฟักตัวในหลอดทดลอง 72-ชั่วโมง ในหลอดทดลอง
การศึกษาในหลอดทดลองด้วย IgA ของมนุษย์1-การคัดแยกสายเซลล์
บีเซลล์จากเลือดของบุคคลที่มีสุขภาพดีถูกทำให้เป็นอมตะด้วยไวรัส Epstein-Barr ถูกคัดลอกมาย่อยเพื่อให้เกิด IgA1-การคัดแยกเซลล์ และเพาะเลี้ยงตามที่อธิบายไว้ นอกจากนี้ เรายืนยันการแสดงออกของตัวรับสำหรับ APRIL/BAFF และ IL -6. เพาะเลี้ยงเซลล์ในอาหารเลี้ยงเชื้อ Roswell Park Memorial Institute-1640 ที่เสริมด้วยซีรั่มลูกวัวในครรภ์ 20 เปอร์เซ็นต์ สเตรปโตมัยซิน และเพนิซิลลินในตู้อบความชื้น 37 องศาพร้อมคาร์บอนไดออกไซด์ 5 เปอร์เซ็นต์ คลาส B CpG-ODN (TCGTCGTTTTGTCGTTTTGTCGTT) ถูกใช้เป็นลิแกนด์ TLR9 IL-6 ลูกผสม, APRIL ลูกผสม, แอนติบอดีต้าน IL-6 และแอนติบอดีควบคุม IgG ของแพะได้รับมาจากระบบ R&D เซลล์ถูกเพาะเลี้ยงด้วยความเข้มข้นปานกลางหรือความเข้มข้นที่แนะนำของ CpG-ODN, 50 ng/ml recombinant IL-6, APRIL ลูกผสม 40 ng/ml และแอนติบอดีต้าน IL-6 100 ng/ml เป็นเวลา 72 ชั่วโมง
ซับตะวันตก
สารลอยเหนือตะกอนจากเซลล์ที่หลั่ง IgA1-แยกออกโดยโซเดียม โดเดซิล ซัลเฟต-โพลีอะคริลาไมด์ เจล อิเล็กโทรโฟรีซิสภายใต้สภาวะรีดิวซ์โดยใช้เจลเกรเดียนท์ของแผ่นพื้นแบบเกรเดียนท์ 5 เปอร์เซ็นต์ถึง 15 เปอร์เซ็นต์ เจลถูกถ่ายโอนไปยังเยื่อพอลิไวนิลลิดีน ไดฟลูออไรด์ และบ่มด้วยแอนติบอดีจำเพาะสำหรับ APRIL (Abcam Inc., Cambridge, MA) และกลีซาลดีไฮด์-3-ฟอสเฟต ดีไฮโดรจีเนส (Abcam Inc) รอยเปื้อนถูกมองเห็นโดยเคมีลูมิเนสเซนส์โดยใช้เคมีลูมิเนสเซนส์ที่ได้รับการปรับปรุง (GE Healthcare, โตเกียว, ญี่ปุ่น) และเครื่องตรวจจับการเรืองแสง (Konica Minolta Healthcare, Tokyo, Japan) ผลลัพธ์ถูกประเมินโดย densitometrically
เมษายน siRNA ล้มลง
IgA ของมนุษย์1-หลั่งเซลล์ถูกเพาะเลี้ยงใน24-เพลตเพาะเลี้ยงหลุมและทรานส์เฟกด้วย siRNA จำเพาะ APRIL (GS8741, Qiagen) หรือกลุ่มควบคุมที่ไม่กำหนดเป้าหมาย siRNA (GS10673, Qiagen) โดยใช้โปรโตคอลการทรานส์เฟกชันตามคำแนะนำของผู้ผลิต . หลังจากการบ่มเป็นเวลา 24 ชั่วโมง เซลล์ถูกบ่มด้วย IL-6 รีคอมบิแนนท์ 50 นาโนกรัม/มิลลิลิตร (ระบบ R&D) เป็นเวลา 72 ชั่วโมง หลังจากการฟักไข่ เซลล์และส่วนลอยเหนือตะกอนถูกเก็บเกี่ยวเพื่อวัดค่า IgA และ Gd-IgA1
การวิเคราะห์ทางสถิติ
วิเคราะห์ความสัมพันธ์ระหว่างพารามิเตอร์ต่างๆ โดยใช้การวิเคราะห์ความแปรปรวน ข้อมูลแสดงเป็นค่าเฉลี่ย± SD หรือค่ามัธยฐาน ค่า P < {{0}}.05="" ถือว่ามีนัยสำคัญทางสถิติ="" การวิเคราะห์ทางสถิติทั้งหมดดำเนินการโดยใช้="" graphpad="" prism="" เวอร์ชัน="" 6.0="" สำหรับ="" windows="" (ซอฟต์แวร์="" graphpad,="" ซานดิเอโก,="">

cistancheสำหรับไตอาการของโรค
การเปิดเผยข้อมูล
ผู้เขียนทั้งหมดประกาศว่าไม่มีผลประโยชน์ที่แข่งขันกัน
กิตติกรรมประกาศ
การศึกษานี้ได้รับการสนับสนุนบางส่วนโดย JSPS KAKENHI Grant No. 18K08252 และโครงการวิจัยเชิงปฏิบัติสำหรับโรคไตจากหน่วยงานวิจัยและพัฒนาทางการแพทย์แห่งประเทศญี่ปุ่น AMED JN และ BAJ ได้รับการสนับสนุนบางส่วนโดย National Institutes of Health ให้ทุน DK078244 และ DK082753 เราขอขอบคุณคุณ Terumi Shibata สำหรับความช่วยเหลือด้านเทคนิคที่ยอดเยี่ยมของเธอ เราขอขอบคุณ Ms. Takako Ikegami และ Ms. Tomomi Ikeda (Division of Molecular and Biochemical Research, Juntendo University Graduate School of Medicine) และคุณ Tamami Sakanishi (Division of Cell Biology, Juntendo University Graduate School of Medicine) สำหรับความช่วยเหลือด้านเทคนิคที่ยอดเยี่ยม .
วัสดุเสริม
ไฟล์เสริม (PDF)
รูปที่ S1 CpG-oligodeoxynucleotide (ODN) – เซลล์บีที่ถูกกระตุ้นและเซลล์เดนไดรต์ (DC) ช่วยเพิ่มการผลิต IgA เพิ่มเติม บีเซลล์และ DC ถูกแยกออกจากม้ามของหนูเมาส์ ddY การกระตุ้น CpG-ODN เพิ่มการผลิต IgA ในเซลล์ B ที่แยกได้ การเพิ่มขึ้นนี้ได้รับการปรับปรุงเพิ่มเติมโดยการเพาะเลี้ยงเซลล์ B ร่วมกับ DC *P < 0.05.="" วิธีการโดยละเอียดมีอยู่ในวิธีการเสริม="">
ข้อมูลอ้างอิง
1. Myette JR, Kano T, Suzuki H และอื่น ๆ แอนติบอดีที่เป็นเป้าหมายของ Proliferation Inducing Ligand (APRIL) คือการรักษา IgA nephropathy ที่ปลอดภัยและมีประสิทธิภาพ ไตอินเตอร์ 2019;96:104–116.
2. Levy M, Berger J. มุมมองทั่วโลกของโรคไต IgA Am J ไต Dis. 1988;12:340–347.
3. D'Amico G. glomerulonephritis ที่พบบ่อยที่สุดในโลก: IgA nephropathy คิวเจ เมด 1987;64:709–727.
4. Feehally J, Beattie TJ, Brenchley PE และอื่น ๆ การศึกษาตามลำดับของระบบ IgA ในการกำเริบของโรคไต IgA ไตอินเตอร์ 1986;30:924–931.
5. ไวแอตต์ อาร์เจ จูเลียน บีเอ โรคไต IgA N Engl เจ เมด. 2013;368:2402–2414.
6. Suzuki H, Yasutake J, Makita Y, และคณะ IgA nephropathy และ IgA vasculitis ที่เป็นโรคไตอักเสบมีลักษณะร่วมกันซึ่งเกี่ยวข้องกับการเกิดโรคที่มุ่งเน้น IgA1- ที่ขาดกาแลคโตส ไตอินเตอร์ 2018;93:700–705.
7. กลาสซ็อค อาร์เจ การวิเคราะห์การทำงานของแอนติบอดีใน IgA nephropathy เจ คลิน อินเวสท์ 2552;119:1450–1452.
8. Moldoveanu Z, Wyatt RJ, Lee JY และอื่น ๆ ผู้ป่วยที่เป็นโรคไต IgA จะเพิ่มระดับ IgA1 ที่ขาดกาแลคโตสในซีรัม ไตอินเตอร์ 2550;71: 1148–1154.
9. Suzuki H, Moldoveanu Z, Hall S และอื่น ๆ IgA1-การคัดแยกเซลล์ออกจากผู้ป่วยที่เป็นโรคไตจาก IgA ทำให้เกิดไกลโคซิเลต IgA1 อย่างผิดปกติ เจ คลิน อินเวสท์ 2008;118:629–639.
10. Imai H, Nakamoto Y, Asakura K และอื่น ๆ การสะสม IgA ของไตที่เกิดขึ้นเองในหนูเมาส์ ddY: แบบจำลองสัตว์ของโรคไตอักเสบ IgA ไตอินเตอร์ 1985;27:756–761.
11. Okazaki K, Suzuki Y, Otsuji M และอื่น ๆ การพัฒนาแบบจำลองของโรคไต IgA ที่เริ่มมีอาการ เจ แอม ซ็อก เนโฟรล 2012;23:1364–1374.
12. Nishie T, Miyaishi O, Azuma H และอื่น ๆ การพัฒนาของอิมมูโนโกลบูลิน A โรคไต- คล้ายกับโรคในหนูทดลองที่มีเบต้า-1,4-galactosyltransferase-I แอม เจ ปทุม. 2007;170:447–456.
13. Suzuki H, Suzuki Y, Yamanaka T, และคณะ การสแกนทั่วทั้งจีโนมในแบบจำลองโรคไตของ IgA แบบใหม่ระบุตำแหน่งที่อ่อนแอบนโครโมโซมของหนู 10 ในบริเวณที่สังเคราะห์กับ IGAN1 ของมนุษย์บนโครโมโซม 6q22-23 เจ แอม ซ็อก เนโฟรล 2005;16:1289–1299.
14. Takei T, Iida A, Nitta K และอื่น ๆ ความสัมพันธ์ระหว่าง single-nucleotide polymorphisms ในซีเล็คตินยีนและอิมมูโนโกลบูลิน เอ โรคไต แอม เจ ฮุม เจเน็ต 2002;70:781–786.
15. Gharavi AG, Yan Y, Scolari F และอื่น ๆ โรคไตจาก IgA ซึ่งเป็นสาเหตุที่พบบ่อยที่สุดของภาวะไตอักเสบจากไต เชื่อมโยงกับ 6q22-23 แนท เจเนท. 2000;26:354–357.
16. Suzuki H, Suzuki Y, Narita I และอื่น ๆ Toll-like receptor 9 ส่งผลต่อความรุนแรงของ IgA nephropathy เจ แอม ซ็อก เนโฟรล 2008;19:2384–2395.
17. Nakata J, Suzuki Y, Suzuki H และอื่น ๆ การเปลี่ยนแปลงของ IgA1 ที่ขาดกาแลคโตสในซีรัมในซีรั่มในภาวะไตผิดปกติของ IgA หลังการผ่าตัดต่อมทอนซิลและการรักษาด้วยสเตียรอยด์ ป.ล. หนึ่ง 2014;9:e89707.
18. Sato D, Suzuki Y, Kano T และอื่น ๆ การแสดงออกของ Tonsillar TLR9 และประสิทธิภาพของ Tonsillectomy กับ steroid pulse therapy ในผู้ป่วย IgA nephropathy การปลูกถ่าย Nephrol Dial 2012;27:1090–1097.
19. Coppo R, Camilla R, Amore A และอื่น ๆ นิพจน์ที่เหมือนตัวรับค่าโทร 4 เพิ่มขึ้นในเซลล์โมโนนิวเคลียร์ที่ไหลเวียนของผู้ป่วยโรคไตอิมมูโนโกลบูลิน A คลีนิกเอ็กซ์พี อิมมูนอล 2010;159:73–81.
20. Maiguma M, Suzuki Y, Suzuki H และอื่น ๆ สังกะสีในอาหารเป็นตัวปรับสภาพแวดล้อมที่สำคัญในความก้าวหน้าของ IgA nephropathy ป.ล. หนึ่ง 2014;9: e90558.
21. Kawai T, Akira S. ส่งสัญญาณไปยัง NF-kappaB โดยตัวรับที่เหมือนโทร เทรนด์ Mol Med 2007;13:460–469.
22. Kuwata H, Matsumoto M, Atarashi K และอื่น ๆ IkappaBNS ยับยั้งการเหนี่ยวนำของชุดย่อยของยีนที่ขึ้นอยู่กับตัวรับค่าโทรและจำกัดการอักเสบ ภูมิคุ้มกัน 2549;24:41–51.
23. Rostoker G, Rymer JC, Barnard G และอื่น ๆ ความไม่สมดุลในซีรัม proinflammatory cytokines และตัวรับที่ละลายน้ำได้: บทบาทสมมุติในการลุกลามของโรคไต IgA ที่ไม่ทราบสาเหตุ (IgAN) และ Henoch Schönlein purpura nephritis และเป้าหมายที่เป็นไปได้ของการบำบัดด้วยอิมมูโนโกลบูลิน? คลีนิกเอ็กซ์พี อิมมูนอล 1998;114:468–476.
24. Suzuki H, Raska M, Yamada K, และคณะ ไซโตไคน์เปลี่ยน IgA1 O-ไกลโคซิเลชันโดยควบคุมเอนไซม์ C1GalT1 และ ST6GalNAc-II ที่ไม่เป็นระเบียบ เจ ไบโอล เคม. 2014;289:5330–5339.
25. Yamada K, Huang ZQ, Raska M และอื่น ๆ การยับยั้งการส่งสัญญาณ STAT3 ช่วยลดการผลิต IgA1 autoantigen ใน IgA nephropathy ไต Int Rep. 2017;2:1194–1207.
26. Schneider P, MacKay F, Steiner V และอื่น ๆ BAFF ลิแกนด์ใหม่ของแฟมิลีปัจจัยเนื้อร้ายของเนื้องอก กระตุ้นการเติบโตของเซลล์ B เจ เอ็กซ์พี เมด 1999;189: 1747–1756.
27. Kiryluk K, Li Y, Scolari F และอื่น ๆ การค้นพบตำแหน่งความเสี่ยงใหม่สำหรับโรคไตจาก IgA เกี่ยวข้องกับยีนที่เกี่ยวข้องกับภูมิคุ้มกันต่อเชื้อโรคในลำไส้ แนท เจเนท. 2014;46:1187–1196.
28. Han SS, Yang SH, Choi M และอื่น ๆ บทบาทของสมาชิก TNF superfamily 13 ในการลุกลามของ IgA nephropathy เจ แอม ซ็อก เนโฟรล 2016;27:3430– 3439.
29. Hiki Y, Odani H, Takahashi M และอื่น ๆ แมสสเปกโตรเมทรีพิสูจน์ให้เห็นว่าไกลโคซิเลชันต่ำกว่า O ของ IgA1 ของไตในโรคไตของ IgA ไตอินเตอร์ 2001;59: 1077–1085.
30. Allen AC, Bailey EM, Brenchley PE และอื่น ๆ Mesangial IgA1 ใน IgA nephropathy แสดง O-glycosylation ผิดปกติ: การสังเกตในผู้ป่วยสามราย ไตอินเตอร์ 2001;60:969–973.
31. Hiki Y. โอลิโกแซ็กคาไรด์ที่เชื่อมโยงกับ O ของบริเวณบานพับ IgA1: บทบาทของโครงสร้างที่ผิดปกติในการเกิดขึ้นและ/หรือความก้าวหน้าของ IgA nephropathy คลินิก Exp Nephrol. 2552;13:415–423.
32. Mestecky J, Tomana M, Moldoveanu Z และอื่น ๆ บทบาทของ glycosylation ผิดปกติของโมเลกุล IgA1 ในการเกิดโรคของ IgA nephropathy ไตความดันโลหิต Res. 2008;31:29–37.
33. McCarthy DD, Kujawa J, Wilson C และอื่น ๆ หนูที่แสดงออก BAFF มากเกินไปจะพัฒนาโรคไตที่เกี่ยวข้องกับ flflora commensal commensal เจ คลิน อินเวสท์ 2011;121:3991–4002.
34. Muto M, Manfroi B, Suzuki H และอื่น ๆ การกระตุ้นด้วยตัวรับค่าโทร 9 ทำให้เกิดการแสดงออกที่ผิดปกติของลิแกนด์ที่กระตุ้นการเพิ่มจำนวนโดยเซลล์ B ศูนย์กลางการงอกของต่อมทอนซิลในโรคไต IgA เจ แอม ซ็อก เนโฟรล 2017;28:1227–1238.
35. Latz E, Schoenemeyer A, Visintin A และอื่น ๆ TLR9 ส่งสัญญาณหลังจากย้ายจาก ER ไปยัง CpG DNA ในไลโซโซม นัท อิมมูนอล. 2004;5:190–198.
36 Hornung V, Rothenfusser S, Britsch S และอื่น ๆ การแสดงออกเชิงปริมาณของรีเซพเตอร์ที่เหมือนโทรลล์ 1-10 mRNA ในชุดย่อยของเซลล์ของเซลล์ที่มีโมโนนิวเคลียร์ในเลือดส่วนปลายของมนุษย์และความไวต่อ CpG โอลิโกดีออกซีนิวคลีโอไทด์ เจ อิมมูนอล 2002;168:4531–4537.
37. Kadowaki N, Ho S, Antonenko S และอื่น ๆ ชุดย่อยของสารตั้งต้นของเซลล์เดนไดรต์ของมนุษย์แสดงรีเซพเตอร์ที่เหมือนโทรลต่างกันและตอบสนองต่อแอนติเจนของจุลินทรีย์ที่แตกต่างกัน เจ เอ็กซ์พี เมด 2001;194:863–869.
38. He B, Xu W, Santini PA และอื่น ๆ แบคทีเรียในลำไส้กระตุ้นการสลับคลาสของอิมมูโนโกลบูลิน A(2) ที่ไม่ขึ้นกับเซลล์ T โดยกระตุ้นการหลั่งเซลล์เยื่อบุผิวของ cytokine APRIL ภูมิคุ้มกัน 2007;26:812–826.
39. Mackay F, Schneider P. ถอดรหัส BAFF แนท เรฟ อิมมูนอล. 2552;9: 491–502.
40. Kunimoto DY, Nordan RP, Strober W. IL-6 เป็นปัจจัยร่วมที่มีศักยภาพของ IL-1 ในการสังเคราะห์ IgM และของ IL-5 ในการสังเคราะห์ IgA เจ อิมมูนอล 1989;143:2230–2235.
41. Beagley KW, Eldridge JH, Lee F และอื่น ๆ การสังเคราะห์ Interleukins และ IgA interleukin 6 ของมนุษย์และของหนูทำให้เกิดการหลั่ง IgA อัตราสูงในเซลล์ B ที่รับ IgA เจ เอ็กซ์พี เมด 1989;169:2133–2148.
42. Ramsay AJ, สามี AJ, Ramshaw IA และอื่น ๆ บทบาทของอินเตอร์ลิวคิน-6ในการตอบสนองของแอนติบอดี IgA ของเยื่อเมือก ในร่างกาย ศาสตร์. 1994;264:561– 563.
43. Nurieva RI, Chung Y, Martinez GJ และอื่น ๆ Bcl6 เป็นตัวกลางในการพัฒนาเซลล์ตัวช่วย T follicular ศาสตร์. 2552;325:1001–1005.
44. Poholek AC, Hansen K, Hernandez SG และอื่น ๆ การควบคุมในร่างกายของการพัฒนาเซลล์ตัวช่วย Bcl6 และ T follicular เจ อิมมูนอล 2010;185: 313–326.
45. Jain S, Park G, Sproule TJ และอื่น ๆ Interleukin 6 เร่งการตายโดยส่งเสริมความก้าวหน้าของโรคที่คล้ายกับ lupus erythematosus-like ของหนู BXSB.Yaa ป.ล. หนึ่ง 2016;11:e0153059.
46. Litinskiy MB, Nardelli B, Hilbert DM และอื่น ๆ DCs ทำให้เกิด CD40-การสลับคลาสอิมมูโนโกลบูลินอิสระผ่าน BLyS และ APRIL นัท อิมมูนอล. 2002;3:822–829.
47. Castigli E, Wilson SA, Scott S และอื่น ๆ TACI และ BAFF-R เป็นสื่อกลางในการสลับไอโซไทป์ในเซลล์ B เจ เอ็กซ์พี เมด 2005;201:35–39.
48. Jourdan M, Chen M, Robert N และอื่น ๆ IL-6 สนับสนุนการสร้างเซลล์พลาสมาที่มีอายุยืนยาวของมนุษย์ร่วมกับปัจจัยที่ละลายในเซลล์ APRIL หรือ stromal มะเร็งเม็ดเลือดขาว 2014;28:1647–1656.
49. Chu VT, Fröhlich A, Steinhauser G, และคณะ Eosinophils จำเป็นสำหรับการบำรุงรักษาเซลล์พลาสม่าในไขกระดูก นัท อิมมูนอล. 2011;12: 151–159.
50. Suzuki H, Suzuki Y, Aizawa M และอื่น ๆ โพลาไรซ์ Th1 ในโรคไต IgA ของหนูที่ควบคุมโดยเซลล์ที่ได้จากไขกระดูก ไตอินเตอร์ 2007;72: 319–327.
51. Chintalacharuvu SR, Emancipator SN. ไกลโคซิเลชันของ IgA ที่ผลิตโดยเซลล์ B ของหนูถูกเปลี่ยนแปลงโดยไซโตไคน์ Th2 เจ อิมมูนอล 1997;159:2327– 2333.
52. Yasutake J, Suzuki Y, Suzuki H และอื่น ๆ แนวทางใหม่ที่ไม่ขึ้นกับเลกตินเพื่อตรวจหา IgA1 ที่ขาดกาแลคโตสในโรคไตจาก IgA การปลูกถ่าย Nephrol Dial 2015;30:1315–1321.
53. Katafuchi R, Kiyoshi Y, Oh Y, และคณะ Glomerular score เป็นผู้พยากรณ์โรคใน IgA nephropathy: ประโยชน์และข้อจำกัด คลินเนโฟรล. 1998;49:1–8.
54. Ballardie FW, Roberts IS. ควบคุมการทดลองในอนาคตของ prednisolone และ cytotoxics ในโรคไต IgA แบบก้าวหน้า เจ แอม ซ็อก เนโฟรล 2002;13: 142–148.