ปรับปรุงหน่วยความจำการรับรู้วัตถุโดยใช้การกระตุ้นด้วยแม่เหล็ก Transcranial ซ้ำหลังการเข้ารหัสส่วนที่ 1
Aug 15, 2024
เชิงนามธรรม
ความเป็นมา: เป็นที่ทราบกันดีว่าการกระตุ้นสมองส่งผลต่อวิถีทางมาตรฐานและโปรตีนที่เกี่ยวข้องกับความจำ อย่างไรก็ตาม ความสามารถในการกระตุ้นสมองเพื่อปรับปรุงความจำก็ยังมีผลลัพธ์ที่ขัดแย้งกัน ซึ่งอาจเนื่องมาจากระยะเวลาในการกระตุ้นที่แปรผัน
มีความเชื่อมโยงอย่างใกล้ชิดระหว่างการกระตุ้นสมองและความจำ การกระตุ้นสมองสามารถส่งเสริมการทำงานของเซลล์ประสาทในสมอง จึงช่วยเพิ่มความจำและความสามารถทางปัญญา
ประการแรก การกระตุ้นสมองสามารถส่งเสริมการเชื่อมต่อระหว่างเซลล์ประสาทได้ การกระตุ้นสมองจะทำให้การสื่อสารและการเชื่อมต่อระหว่างเซลล์ประสาทเกิดขึ้นบ่อยและมีประสิทธิภาพมากขึ้น การเชื่อมต่อเหล่านี้จะมีเสถียรภาพและเป็นจริงมากขึ้น ทำให้สมองมีความยืดหยุ่น สร้างสรรค์ และรอบคอบมากขึ้น ข้อดีเหล่านี้จะทำให้คุณได้เปรียบในการเรียนรู้และการใช้ชีวิต
ประการที่สอง การกระตุ้นสมองสามารถทำให้ความจำดีขึ้นได้ การกระตุ้นสมองบ่อยๆ สามารถเพิ่มความมีชีวิตชีวาและสุขภาพของสมองได้ จึงช่วยเพิ่มความจำ มีความสัมพันธ์ที่สำคัญระหว่างสุขภาพของสมองกับความทรงจำและกิจกรรมการรับรู้ การกระตุ้นสมองจะช่วยให้สมองฟื้นตัว เติบโต และซ่อมแซมได้ ด้วยวิธีนี้ มันจะง่ายกว่าสำหรับเราในการเรียนรู้ความรู้หรือรับข้อมูลที่มีความหมายจากชีวิต และเราจะสามารถจัดเก็บและเรียกคืนข้อมูลเหล่านั้นในสมองได้ดีขึ้น
นอกจากนี้การกระตุ้นสมองยังสามารถส่งเสริมการเรียนรู้และการประยุกต์ใช้ข้อมูลใหม่ๆ ในชีวิตเรามักเจอปัญหาต่างๆ มากมาย ซึ่งเราไม่รู้ว่าจะรับมืออย่างไร การกระตุ้นสมองบ่อยๆ จะทำให้เข้าใจข้อมูลที่ซับซ้อนได้เร็วและแม่นยำมากขึ้น ค่อยๆ ปรับให้เข้ากับข้อมูล ค้นหาวิธีประมวลผล และรับมือกับข้อมูลได้ดีขึ้น ทำให้เราจัดการกับสิ่งต่างๆ ได้ง่ายขึ้น
กล่าวโดยสรุป ผ่านการกระตุ้นสมอง เราจะมีความยืดหยุ่น สร้างสรรค์ และมีความคิดมากขึ้น เราจะเผชิญกับปัญหาและความท้าทายในชีวิตด้วยความมั่นใจมากขึ้น การกระตุ้นสมองเป็นวิธีที่ดีในการปรับปรุงความสามารถทางปัญญา เสริมสร้างการเรียนรู้ และปรับปรุงความจำ ขอให้เรายึดมั่นในแผนการออกกำลังกายสมอง รักษาทัศนคติเชิงบวก คิดบวก พัฒนาตนเองให้ดีขึ้น และตระหนักถึงอุดมคติของเรา จะเห็นได้ว่าเราต้องปรับปรุงความจำ และ Cistanche ก็สามารถปรับปรุงความจำได้อย่างมาก เพราะ Cistanche ยังสามารถควบคุมความสมดุลของสารสื่อประสาท เช่น การเพิ่มระดับของอะเซทิลโคลีน และปัจจัยการเจริญเติบโต ซึ่งมีความสำคัญมากต่อความจำและการเรียนรู้ นอกจากนี้ Cistanche ยังช่วยเพิ่มการไหลเวียนของเลือดและส่งเสริมการส่งออกซิเจน ซึ่งช่วยให้สมองได้รับสารอาหารและพลังงานที่เพียงพอ ซึ่งจะช่วยปรับปรุงความมีชีวิตชีวาและความอดทนของสมอง
คลิกรู้เพื่อปรับปรุงหน่วยความจำในการทำงาน
สมมติฐาน: เราตั้งสมมติฐานว่าการกระตุ้นด้วยแม่เหล็กผ่านกะโหลกศีรษะ (rTMS) ซ้ำๆ ที่ได้รับหลังจากการเรียนรู้และภายในระยะเวลาก่อนที่จะดึงข้อมูลสามารถช่วยปรับปรุงความจำได้ วิธีการ: เราปลูกฝังหนู B6129SF2/J เพศผู้ (n ¼ 32) ด้วยสิ่งที่แนบมากับกะโหลกศีรษะเพื่อยึดคอยล์ rTMS เพื่อให้หนูได้รับการกระตุ้นอย่างสม่ำเสมอไปยังบริเวณหน้าผากขณะเคลื่อนที่อย่างอิสระ
จากนั้นหนูจะเข้าสู่ขั้นตอนการสุ่มตัวอย่างการทดสอบการรู้จำวัตถุและได้รับการรักษาที่ þ3, þ24, þ48 ชั่วโมงหลังการทดสอบ การบำบัดประกอบด้วยการกระตุ้น rTMS 10 นาที 10 เฮิร์ตซ์ (TMS, n ¼ 10), การบำบัดหลอก (SHAM, n ¼ 11) หรือกลุ่มควบคุมที่ไม่ได้ทำการทดสอบพฤติกรรมหรือรับ rTMS (การควบคุม n ¼ 11)
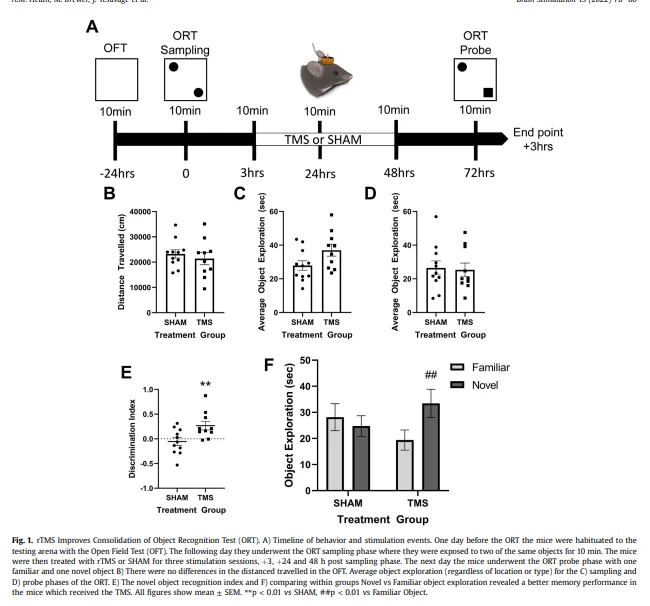
ที่ þ72 hmice ได้รับการทดสอบเพื่อการสำรวจวัตถุใหม่เทียบกับวัตถุที่คุ้นเคย ผลลัพธ์: ที่ 72-h มีเพียงหนูที่ได้รับ rTMS เท่านั้นที่มีการสำรวจวัตถุใหม่มากกว่าวัตถุที่คุ้นเคย
เรายังแสดงให้เห็นอีกว่าการส่งเสริม synaptic GluR2 และการรักษาการเชื่อมต่อ synaptic ใน perirhinal cortex และ hippocampal CA1 มีความสำคัญต่อผลกระทบนี้
นอกจากนี้เรายังพบหลักฐานว่าการเปลี่ยนแปลงเหล่านี้เชื่อมโยงกับเส้นทาง CAMKII และ CREB ในเซลล์ประสาทฮิปโปแคมปัส
สรุป: ด้วยการเชื่อมโยงผลกระทบทางชีวภาพที่ทราบของ rTMS กับวิถีหน่วยความจำ เราได้แสดงหลักฐานว่า rTMS มีประสิทธิภาพในการปรับปรุงหน่วยความจำเมื่อได้รับระหว่างขั้นตอนการรวมและบำรุงรักษา
1. บทนำ
เป็นที่รู้กันว่าการกระตุ้นสมองแบบไม่รุกรานส่งผลต่อวิถีทางมาตรฐานและโปรตีนที่เกี่ยวข้องกับความจำ อย่างไรก็ตาม การศึกษาในปัจจุบันที่ได้ตรวจสอบผลของการกระตุ้นสมอง โดยเฉพาะการกระตุ้นด้วยแม่เหล็กผ่านกะโหลกศีรษะซ้ำๆ (rTMS) พบว่าหน่วยความจำมีผลลัพธ์ที่ขัดแย้งกัน [1]
เหตุผลนี้อาจเกิดจากการกำหนดเป้าหมายการกระตุ้นในเวลาที่ต่างกันระหว่างการสร้างความทรงจำและการดึงข้อมูล [1] หลักฐานแสดงให้เห็นว่าการกำหนดเป้าหมาย rTMS ที่ขั้นตอนหลังการเข้ารหัสหรือการรวมเข้าด้วยกันอาจเป็นประโยชน์สำหรับการพัฒนาความทรงจำระยะยาวที่มั่นคง [2]e4]
การรวมเป็นขั้นตอนที่เปลี่ยนหน่วยความจำระยะสั้นไปเป็นหน่วยความจำระยะยาว (LTM) กระบวนการนี้ขึ้นอยู่กับการสังเคราะห์โปรตีนเฉพาะเวลา ซึ่งแปลงข้อมูลใหม่ให้เป็นการปรับเปลี่ยนซินแนปติกที่เสถียรพร้อมกับความหนาแน่นของตัวรับโพสซินแนปติกที่เพิ่มขึ้น [5,6]
ความสำคัญของการสังเคราะห์โปรตีนเฉพาะเวลาและภูมิภาคนี้แสดงให้เห็นในการศึกษาที่ขัดขวางการสังเคราะห์โปรตีนเดโนโว ตัวอย่างเช่น การศึกษาชิ้นหนึ่งที่ขัดขวางการสังเคราะห์โปรตีนในฮิบโปแคมปัส 3-h แต่ไม่ใช่ 6-h หลังเหตุการณ์การเรียนรู้ ทำให้ LTM บกพร่องแต่ไม่รวมถึงความจำระยะสั้นในหนู[7]
ในบรรดาโปรตีนเหล่านี้ มีการระบุเส้นทางการส่งสัญญาณที่สำคัญหลายประการที่ได้รับการควบคุมและมีความสำคัญในกระบวนการนี้
มีวิถีการส่งสัญญาณหลายวิถีที่ไซแนปส์ ซึ่งเป็นการส่งสัญญาณการปกคลุมด้วยตัวรับและความมั่นคงของกระดูกสันหลังที่จำเป็นสำหรับ LTM สิ่งเหล่านี้ถูกกระตุ้นผ่านเหตุการณ์กระตุ้นศักยภาพในระยะยาว (LTP) และมักจะได้รับการปรับปรุงด้วยปัจจัยทางระบบประสาท เช่น ปัจจัยทางระบบประสาทที่ได้มาจากสมอง (BDNF) [8]
BDNF มีความสำคัญเป็นพิเศษในการสร้างความทรงจำระยะยาว เนื่องจากการปิดกั้นการสังเคราะห์ BDNF ในเวลาที่กำหนด การเรียนรู้ต่อไปนี้จะขัดขวางการรวมตัวของมัน [5]
BDNF จับกับตัวรับไทโรซีนไคเนส (TrkB) และสามารถเริ่มต้นวิถีการส่งสัญญาณได้หลายวิถี เช่น วิถีโปรตีนไคเนสที่กระตุ้นการทำงานของไมโทเจน/ไคเนสที่ควบคุมสัญญาณนอกเซลล์ (ERK) หรือวิถีทาง phospholipase Cg เส้นทางการส่งสัญญาณเหล่านี้มาบรรจบกันในการเปิดใช้งานปัจจัยควบคุมการถอดรหัสโปรตีนที่จับกับองค์ประกอบที่ตอบสนองต่อไซคลิกแอมป์ (CREB)
โปรตีนที่กระตุ้นแคลเซียม เช่น โปรตีนไคเนส II ที่ขึ้นกับแคลเซียม/คาลโมดูลิน (CAMKII) ยังมีบทบาทในการควบคุมยีนที่กระตุ้นการทำงานของ CREB[9e11] และยังสามารถเป็นสื่อกลางในการแสดงออกของซินแนปติกของตัวรับ AMPA กลูตามาเทอจิคได้โดยตรง และทำให้โครงสร้างไซแนปติกมีความเสถียร [12e15] .
เส้นทางการส่งสัญญาณเหล่านี้ร่วมกันส่งผลให้เกิดการแสดงออกของตัวรับการเปลี่ยนแปลงและการโยกย้ายที่เป็นสื่อกลางในการกระตุ้นที่เพิ่มขึ้นที่ไซแนปส์ ดังนั้นจึงทำหน้าที่รักษาเสถียรภาพของไซแนปส์และมีส่วนช่วยในการรักษา LTP ที่ยืดเยื้อ [16] ที่สำคัญ การศึกษาก่อนหน้านี้แสดงให้เห็นว่ามีความเป็นไปได้ที่จะปรับปรุงการรวมหน่วยความจำ โดยการเปิดใช้งานเส้นทางการรวมกลุ่มเหล่านี้อีกครั้งเป็นระยะๆ ในการตั้งค่าการทดลอง [17]
การศึกษาก่อนหน้านี้ได้แสดงให้เห็นถึงความสามารถของ rTMS ในการส่งผลโดยตรงต่อวิถีทางเฉพาะเหล่านี้ในสมอง การศึกษาในสัตว์ทดลองแสดงให้เห็นว่า rTMS เพิ่มระดับ BDNF ในสมอง [18e20] ยิ่งไปกว่านั้น ในหลอดทดลอง rTMS ส่งผลให้ Ca2þ เพิ่มขึ้นในเซลล์ประสาท ซึ่งเป็นโมเลกุลส่งสัญญาณที่โดดเด่นในวิถีทาง CAMKII [18] นอกจากนี้ CAMKII และ CREB phosphorylation ที่เพิ่มขึ้นก็แสดงให้เห็นในหลอดทดลองหลัง rTMS [20,21]
rTMS ยังส่งผลโดยตรงต่อการแสดงออกของตัวรับซินแนปติก โดยเพิ่มความหนาแน่นของตัวรับ AMPA [22e24] และควบคุมหน่วยย่อยของตัวรับ AMPA Glutamate Receptor 1(GluR1) และ Glutamate Receptor 2 (GluR2) [25,26]
ดังนั้น asrTMS จึงเปิดใช้งานวิถีทางเหล่านี้ ซึ่งจะมีประสิทธิภาพมากที่สุดในการปรับปรุงหน่วยความจำในระหว่างขั้นตอนการรวมข้อมูล การศึกษานี้ตรวจสอบการใช้ rTMS เพื่อปรับปรุงหน่วยความจำโดยกำหนดเป้าหมายไปที่การกระตุ้นของการรวมและขั้นตอนการบำรุงรักษาของหน่วยความจำ
เราตั้งสมมติฐานว่า rTMS ที่ได้รับการจัดการตามงานการเรียนรู้และภายในระยะเวลาก่อนการดึงข้อมูล สามารถปรับปรุงประสิทธิภาพของหน่วยความจำได้ นี่จะเป็นผลมาจากการเปิดใช้งานเส้นทางที่เกี่ยวข้องกับหน่วยความจำอีกครั้งเป็นระยะ ซึ่งได้รับอิทธิพลจาก rTMS เช่นกัน
ด้วยการใช้แบบจำลองสัตว์ของ LTM แบบเป็นตอนเฉพาะ เราแสดงให้เห็นว่า rTMS ปรับปรุงหน่วยความจำอ็อบเจ็กต์เมื่อได้รับภายใน 72- ชั่วโมงระหว่างการเข้ารหัสและการดึงข้อมูล ในขณะที่หนูที่ได้รับการบำบัดแบบ SHAM ไม่ได้รักษาหน่วยความจำไว้
ผลกระทบนี้ได้รับการสนับสนุนโดยการเปลี่ยนแปลงการเชื่อมต่อของซินแนปติกในเยื่อหุ้มสมองรอบนอกและ CA1 การเปิดใช้งาน CREB และ CAMKII ที่เพิ่มขึ้น และการเปลี่ยนแปลงแบบไดนามิกในหน่วยย่อยของตัวรับ AMPA ที่ไซแนปส์
2. วัสดุและวิธีการ
2.1. สัตว์
เราใช้หนู B6129SF2/J เพศผู้ n ¼ 33 ตัว อายุ 2e4 เดือนสำหรับการศึกษานี้ หนูทุกตัวอาศัยอยู่ภายใต้วงจรมืด 12- ชั่วโมง/12- ชั่วโมง โดยสามารถเข้าถึงอาหารและน้ำแห้งได้ฟรี การดูแลและขั้นตอนสัตว์ทั้งหมดเป็นไปตามพระราชบัญญัติสวัสดิภาพสัตว์ และเป็นไปตามแนวทางของสถาบัน และได้รับอนุมัติจากคณะกรรมการวิจัยสัตว์ของ VA Palo Alto
2.2. การผ่าตัดรองรับคอยล์
หนูแต่ละตัวได้รับการผ่าตัดเพื่อติดขดลวดที่ช่วยให้สัตว์ตื่นตัวด้วย rTMS กระตุ้นได้อย่างสม่ำเสมอ รายละเอียดเกี่ยวกับขั้นตอนการผ่าตัดสามารถพบได้ใน Poh et al., 2018[27]
โดยสรุป สัตว์ได้รับการดมยาสลบด้วยไอโซฟลูเรน 3% และคงสภาพไว้ที่ 2e3% ด้วยโคนจมูก หลังจากโกนและทำความสะอาดบริเวณนั้นเพื่อความปลอดเชื้อแล้ว ให้ใช้มีดผ่าตัดทำแผลทัลขนาดประมาณ 10 มม.
เชิงกรานถูกขูดออกเบาๆ และติดส่วนรองรับคอยล์ที่ทำไว้ล่วงหน้าไว้ที่เบรกมาด้วยไซยาโนอะคริเลต และเสริมด้วยซีเมนต์ทันตกรรม จากนั้นจึงเย็บแผลรอบแนวรองรับคอยล์
2.3. ขั้นตอนพฤติกรรมและการกระตุ้น
สำหรับภาพรวมของพฤติกรรมและขั้นตอนการกระตุ้น โปรดดูภาพประกอบ 1ก. หลังจากพักฟื้นจากการผ่าตัดคอยล์พยุงเป็นเวลาห้าวัน ได้มีการนำหัวข้อดังกล่าวไปยังกรงกระตุ้นและขั้นตอนคอยล์ที่แยกจากกันเป็นเวลาสามวัน
ในวันสุดท้ายของการทดสอบการทำให้คุ้นเคยของคอยล์ หนูได้ทำการทดสอบ Open Field Test (OFT) เป็นเวลา 10- นาที ซึ่งทำหน้าที่เป็นการทดสอบความคุ้นเคยสำหรับการทดสอบการรับรู้วัตถุ (ORT) ด้วย วันรุ่งขึ้น หนูได้สัมผัสกับขั้นตอนการสุ่มตัวอย่าง ORT โดยมีวัตถุเดียวกันสองชิ้นเป็นเวลา 10 นาที วัตถุมีขนาดใกล้เคียงกัน แต่มีสีและรูปร่างต่างกัน วัตถุเหล่านี้ถูกวางไว้ในมุมตรงข้ามของสนามทดสอบสี่เหลี่ยม
หัวข้อหลักสามชั่วโมงต่อมาถูกสุ่มแบ่งออกเป็นสองกลุ่มการรักษา TMS ซึ่งได้รับการกระตุ้นแบบออกฤทธิ์ที่ 10- นาทีของ 10 Hz rTMS และ SHAM ซึ่งได้รับการปฏิบัติแบบเดียวกัน ยกเว้นขดลวดปิดในระหว่างการกระตุ้น
ทั้งหนู TMS และ SHAM ได้รับการรักษาอีกครั้ง24- และ 48- ชั่วโมงหลังการทำความคุ้นเคย ในวันสุดท้าย (72- ชั่วโมงหลังการทำความคุ้นเคย) หนูได้รับการทดสอบ ORT เป็นเวลา 10- นาทีด้วยวัตถุที่คุ้นเคยหนึ่งชิ้นและวัตถุใหม่หนึ่งชิ้น
เพื่อตรวจสอบว่าการสำรวจวัตถุใหม่นั้นมากกว่าวัตถุที่คุ้นเคยหรือไม่ เราคำนวณดัชนีการเลือกปฏิบัติ (((การสำรวจวัตถุนวนิยาย)-(การสำรวจวัตถุที่คุ้นเคย))/((การสำรวจวัตถุนวนิยาย)þ(การสำรวจวัตถุที่คุ้นเคย))) เราเลือก 72-h เนื่องจากทั้งการศึกษาก่อนหน้า [28] และข้อมูลนำร่อง (ไม่แสดง) แสดงให้เห็นว่าภายใต้สภาวะปกติ หนูจะไม่เก็บหน่วยความจำ ORT ไว้ ณ จุดนี้

ทั้งประเภทวัตถุและตำแหน่งของวัตถุนวนิยายมีความสมดุลระหว่างกลุ่ม สำหรับการทำให้คุ้นเคย การสุ่มตัวอย่าง และเซสชั่นการสอบสวน หนูจะได้รับเวลา 30 นาทีเสมอในการปรับตัวให้เข้ากับห้องทดลองก่อนการทดลอง และทำความสะอาดวัตถุและเวทีด้วยเอธานอล 70% หลังจากหนูแต่ละตัว
เพื่อตรวจสอบผลกระทบของงานด้านพฤติกรรมเพียงอย่างเดียว เรายังรวมกลุ่มที่ได้รับการปฏิบัติเช่นเดียวกับหนู SHAM ยกเว้นว่าพวกเขาไม่ได้ทำ ORT
แต่พวกเขาได้สัมผัสกับเซสชันการสุ่มตัวอย่างและโพรบ แต่ไม่มีวัตถุใดๆ เมาส์ตัวหนึ่งในกลุ่ม TMS ไม่ถึงเกณฑ์ที่กำหนดของการสำรวจทั้งสองวัตถุทั้งหมด 20- ในเซสชั่นการสุ่มตัวอย่าง และดังนั้นจึงถูกแยกออกจากการศึกษา หนูตัวนี้ไม่รวมอยู่ในการวิเคราะห์ทางชีวเคมีที่ตามมา
หนูอื่นๆ ทั้งหมดถึงเกณฑ์ทั้งในการสุ่มตัวอย่างและเซสชันการสอบสวน หากไม่รวมเมาส์ตัวเดียว ตัวเลขสุดท้ายในกลุ่มการทดลองคือ TMS n ¼ 10, SHAM n ¼ 11 และ CONTROLn ¼ 11
2.4. รอยเปื้อนแบบตะวันตก
สามชั่วโมงหลังเซสชั่นการสำรวจ หนูจะต้องเสียสละด้วยการกินคีตามีนเกินขนาด และเนื้อเยื่อฮิปโปแคมปัสและฟรอนทัลคอร์เทกซ์จะถูกผ่าอย่างรวดเร็วบนน้ำแข็งแห้ง และเก็บไว้ที่อุณหภูมิ 80 C
ตัวอย่างเหล่านี้ถูกทำให้เป็นเนื้อเดียวกันด้วยรีเอเจนต์การสกัดโปรตีนซินแนปติกแบบเย็นน้ำแข็ง 300 มล. (เทอร์โมไซแอนติฟิค) พร้อมด้วยค็อกเทลตัวยับยั้งโปรตีเอส 1 ตัว (โรช) และยาเม็ดฟอสฟาเตสอินฮิบิเตอร์ค็อกเทล (โรช) 1 ตัว (ต่อ 10 มล.) เป็นเวลา 5 วินาที
โฮโมจีเนตถูกปั่นแยกที่ 1200 กรัม เป็นเวลา 10 นาทีเพื่อกำจัดเศษเซลล์ออก ส่วนเหนือตะกอนถูกนำไปใช้และส่วนหนึ่งของส่วนเหนือตะกอนถูกแบ่งส่วนสำหรับการวิเคราะห์ของโฮโมจีเนตแบบเต็ม ส่วนที่เหลือถูกปั่นเหวี่ยงที่ 15,000 กรัม เป็นเวลา 20- นาทีที่ 4 C
เม็ดที่มีไซแนปโตโซมถูกแขวนลอยอีกครั้งอย่างอ่อนโยนใน Syn-Per ที่เนื้อเยื่อ 1.5 มล./กรัม เพื่อสร้าง Synaptic Homogenate มีการใช้นาโนดรอปเพื่อหาปริมาณความเข้มข้นของโปรตีนในตัวอย่าง
โฮโมจีเนตแบบเต็มและไซแนปติก โฮโมจีเนตถูกเก็บไว้ที่ 80 C จนกระทั่งการวิเคราะห์ ทั้งโฮโมจีเนตแบบเต็มและซินแนปติกถูกเจือจางเป็น PBS เย็นแบบน้ำแข็ง 4 มก./มล. และผสมกับบัฟเฟอร์การโหลดโปรตีน 1:4 (LiCor) และเมอร์แคปโตเอทานอล 1:4000 จากนั้นให้ความร้อนที่ 95 C เป็นเวลา 5- นาทีที่บรรจุลงในเจล Mini PROTEAN TGX (Bio-Rad)
หลังจากการแยกโดยใช้อิเล็กโทรโฟเรซิสที่ 100 V โปรตีนจะถูกถ่ายโอนไปยังเมมเบรนซับไนโตรเซลลูโลส (GE Healthcare Lifesciences) เมมเบรนถูกล้างใน SuperSignal WesternBlot Enhancer Antigen Pretreatment Solution (Thermo Scientific) จากนั้นปิดกั้นด้วย Blocking Buffer (Rockland) และซีรัมแพะ 1% เป็นเวลา 1- ชม.
หลังจากการปิดกั้น เมมเบรนถูกบ่มด้วยแอนติบอดีปฐมภูมิที่เจือจางใน SuperSignal Western BlotEnhancer Primary Antibody Diluent (Thermo Scientific) ข้ามคืนที่อุณหภูมิห้อง
แอนติบอดีปฐมภูมิที่ใช้คือโมโนโคลนอลของเมาส์ ERK 1/2 (1:1000, เทคโนโลยีชีวภาพของซานตาครูซ), โมโนโคลนอลของกระต่าย phospho-p44/42 MAPK (pERK 1:1000, เทคโนโลยีการส่งสัญญาณของเซลล์), โมโนโคลนอลของหนู CREB (1:500, เทคโนโลยีการส่งสัญญาณของเซลล์), โมโนโคลนอลของกระต่าย ฟอสโฟ-CREB (S133) (pCREB1:500, เทคโนโลยีการส่งสัญญาณของเซลล์), โมโนโคลนอล CAMKIIalpha ของกระต่าย (1:1000, เทคโนโลยีการส่งสัญญาณของเซลล์), โมโนโคลนอลฟอสโฟ-CAMKII ของหนูเมาส์ (Thr286) (pCAMKII 1:1000, อินไวโตรเจน), โมโนโคลนัลของเมาส์โมโนโคลนอล GluR1 (1: 750, เทคโนโลยีชีวภาพซานตาครูซ), แรบบิทโมโนโคลนอลฟอสโฟ-GluA1 (S845) (pGluR1(845) 1:750, CellSignaling Technologies), แรบบิท โมโนโคลนอล ฟอสโฟ-GluA1 (S831)(pGluR1(831) 1:750, เทคโนโลยีการส่งสัญญาณเซลล์), เมาส์ โมโนโคลนอล GluR2 (1:750, อินไวโตรเจน), โพลีโคลนอล ฟอสโฟ-GluR2(S880) ของกระต่าย (pGluR2 1:500, Invitrogen), โมโนโคลนอลของหนูเมาส์ TrkB (1:500, BD Transduction Laboratories) หรือ โพลีโคลนอล ฟอสโฟ-TrkB ของกระต่าย Tyr816) (pTrkB 1:500, EMD มิลลิพอร์)
ใช้ Rabbit polyclonal Cofilin (1:2000, Sigma) สำหรับการควบคุมการโหลดแบบมาตรฐาน ภายหลังการล้างใน TBS-Tween เมมเบรนถูกบ่มเป็นเวลา 1 ชั่วโมงที่อุณหภูมิห้องในแพะต้านกระต่าย 800 และแพะต้านหนูเมาส์ 680(1:3000, LiCor)
อิมมูโนลอตถูกถ่ายภาพโดยใช้ระบบสร้างภาพอินฟราเรด Odyssey Clx (LiCor) และการวิเคราะห์ข้อมูลของความเข้มของแถบสีถูกดำเนินการโดยใช้ Image Studio (LiCor)
2.5. อิมมูโนวิทยา
สามชั่วโมงหลังเซสชั่นการสอบสวน หนูที่ถูกสังเวยด้วยการใช้ยาเกินขนาดคีตามีน จากนั้นจึงถูกกระจายไปทั่วหัวใจด้วย PBS เย็น 50 มิลลิลิตร 1 โมลาร์
สมองถูกตรึงทันทีในสารละลายพาราฟอร์มัลดีไฮด์ 4% ที่ 4 C และถ่ายโอนไปยังซูโครส 30% ใน PBS เป็นเวลาอย่างน้อย 48- ชั่วโมง ก่อนที่จะทำการแช่แข็งเป็นส่วนขนาด 30 มม. ส่วนที่ลอยอย่างอิสระถูกปิดกั้นและซึมผ่านได้ด้วยซีรั่มลาแพะ 10% ในไทรทัน 0.1% ใน 1 โมลาร์ PBS จากนั้นบ่มเป็นเวลา 48-hด้วยโพลีโคลนอล PSD95 ของกระต่าย (1:300, เทอร์โมไซแอนทิฟิค) และโมโนโคลนอลของหนูเมาส์ SV2A (1:300, เทคโนโลยีชีวภาพซานตาครูซ)
จากนั้นนำส่วนต่างๆ บ่มเป็นเวลา 1- ชม. ด้วยแอนติบอดีทุติยภูมิAlexa Fluor แพะต่อต้านกระต่าย 568 (1:500, Invitrogen) และต่อต้านเมาส์ Alexa Fluorgoat 488 (1:500, Invitrogen จากนั้นนำชิ้นส่วนมาล้างด้วยสีย้อมนิวเคลียร์ DAPI (1:1000, ซิกมา) ติดบนสไลด์ และปิดด้วยฟลูออโรเมาท์ (เทอร์โมไซแอนทิฟิค)
การย้อมสีถูกหาปริมาณในเยื่อหุ้มสมองส่วนหน้า (FC), ฮิปโปแคมปัส CA1 หลัง, เยื่อหุ้มสมองเอนโทรฮินัล (EC) และเยื่อหุ้มสมองเพริรินัล (PC)
ภาพ Zstacked ถ่ายด้วยกล้องจุลทรรศน์ฟลูออเรสเซนต์ BZ-X700 (Keyence) ที่กำลังขยาย 40 เท่า เพื่อระบุจุดเชื่อมต่อแบบซินแนปติกทั่วทั้งชิ้น puncta PDS95 ทั้งหมด, puncta SV2A และการจัดกลุ่ม (หมายถึง puncta สองอันที่อยู่ติดกันหรือทับซ้อนกัน) ถูกนับจากอย่างน้อยสี่ภาพสำหรับแต่ละพื้นที่ และค่าเฉลี่ยของผลลัพธ์ที่ได้มาสำหรับเมาส์แต่ละตัว การหาปริมาณของ % การจัดกลุ่มเสร็จสมบูรณ์โดยการนับ (การทับซ้อนกันของ SV2A และ PSD95)/(SV2A และ PSD95 ทั้งหมด) ปุนตะ
2.6. สถิติ
ข้อมูลทั้งหมดเป็นไปตามสมมติฐานของภาวะปกติตามที่ประเมินโดยการตรวจสอบความเบ้ ความโด่ง และค่าชาปิโร วิลค์ของเศษเหลือที่คำนวณได้ และไม่มีการละเมิดความแปรปรวนของความเป็นเนื้อเดียวกันตามที่ประเมินโดยใช้สถิติของ Levene
สำหรับการทดสอบพฤติกรรม การทดสอบทีของนักเรียนถูกนำมาใช้เพื่อเปรียบเทียบ SHAM กับ TMS สำหรับการสำรวจวัตถุแปลกใหม่และคุ้นเคยภายในกลุ่ม มีการใช้ RepeatedMeasures ANOVA สองทาง
ข้อมูลอิมมูโนฮิสโตเคมีและข้อมูลเวสเทิร์นบล็อตได้รับการทดสอบสำหรับนัยสำคัญโดยใช้ One-WayANOVA สำหรับการเปรียบเทียบแบบคู่หลังกิจทั้งหมด การปรับ Tukey ถูกนำมาใช้โดยมีนัยสำคัญที่ p < 0.05

หากความแปรปรวนสม่ำเสมอถูกละเมิด นัยสำคัญจะถูกกำหนดด้วย WelchTest และภายหลังได้รับการแก้ไขด้วย Games-Howell กรณีเหล่านี้จะถูกบันทึกไว้ในผลลัพธ์ สถิติทั้งหมดดำเนินการโดยใช้SPSS (เวอร์ชัน 22, IBM) และกราฟถูกสร้างขึ้นโดยใช้ GraphPad (เวอร์ชัน 7, ปริซึม)
For more information:1950477648nn@gmail.com