การรับรู้ของสมองของลำดับเวลาของนวนิยายที่เรียนรู้ก่อนหน้านี้: การประมวลผลพร้อมกันที่แตกต่างกันส่วนที่ 2
Aug 11, 2023
การได้มาซึ่งข้อมูล
เราได้รับข้อมูล MRI และ MEG ทางกายวิภาคในเซสชันอิสระสองเซสชัน ข้อมูล MEG ได้มาจากการใช้ระบบ Elekta Neuromag TRIUX (Elekta Neuromag, เฮลซิงกิ, ฟินแลนด์) ซึ่งมี 306 ช่องสัญญาณ เครื่องนี้ติดตั้งอยู่ในห้องที่มีการป้องกันสนามแม่เหล็กที่โรงพยาบาลมหาวิทยาลัย Aarhus ประเทศเดนมาร์ก ข้อมูลถูกบันทึกที่อัตราการสุ่มตัวอย่าง 1,000 Hz พร้อมการกรองแอนะล็อกที่ 0.1–330 Hz ก่อนการวัด เราได้ตั้งค่าระดับเสียงไว้ที่ 50 เดซิเบล ซึ่งสูงกว่าเกณฑ์การได้ยินขั้นต่ำของผู้เข้าร่วมแต่ละคน ยิ่งไปกว่านั้น ด้วยการใช้ดิจิไทเซอร์สามมิติ (Polhemus Fastrak, Colchester, VT, USA) เราได้บันทึกรูปร่างศีรษะของผู้เข้าร่วมและตำแหน่งของคอยล์หัวทั้งสี่ที่เกี่ยวข้องกับจุดสังเกตทางกายวิภาคสามจุด (ตำแหน่งจมูก และตำแหน่งก่อนหูทางซ้ายและขวา)
ด้วยการพัฒนาวิทยาศาสตร์และเทคโนโลยีอย่างต่อเนื่อง แนวคิดและเทคโนโลยีใหม่ ๆ มากมายได้ปรากฏขึ้นในชีวิตของเรา เทคโนโลยี MEG ก็เป็นหนึ่งในนั้น MEG เป็นเทคนิคทั่วไปในการวัดกิจกรรมทางไฟฟ้าในสมองของมนุษย์ ใช้ควอนตัมอินเตอร์เฟอโรมิเตอร์ยิ่งยวด (SQUID) เพื่อตรวจจับกิจกรรมทางไฟฟ้าของเซลล์ประสาท เทคโนโลยี MEG สามารถช่วยให้เราเข้าใจหลักการทำงานของสมองมนุษย์ได้ดีขึ้น จากนั้นจึงสำรวจความลึกลับของสติปัญญาของมนุษย์
นอกจากการศึกษากิจกรรมทางไฟฟ้าของเซลล์ประสาทแล้ว เทคโนโลยี MEG ยังสามารถประเมินและศึกษาความจำของมนุษย์ได้อีกด้วย การศึกษาจำนวนมากแสดงให้เห็นถึงความสัมพันธ์ระหว่างเทคโนโลยี MEG และหน่วยความจำ ด้วยการศึกษาและวิเคราะห์ข้อมูลจำนวนมาก นักวิทยาศาสตร์สามารถใช้เทคโนโลยี MEG เพื่อติดตามความจุหน่วยความจำของผู้คนและวิธีที่ผู้คนต่างๆ ประมวลผลความทรงจำ
จากการวิจัย นักวิทยาศาสตร์สามารถระบุและวัดกิจกรรมทางไฟฟ้าในส่วนต่างๆ ของสมองมนุษย์ผ่านการวิเคราะห์เทคโนโลยีและข้อมูล MEG ซึ่งช่วยให้เราเข้าใจโหมดการทำงานของสมอง ข้อมูลเหล่านี้สามารถช่วยให้เราเข้าใจความจำและกระบวนการรับรู้ได้ดีขึ้น และในทางกลับกัน พัฒนาวิธีที่ดีขึ้นในการปรับปรุงความจำของผู้คน
นอกจากนี้ การศึกษาจำนวนมากยังแสดงให้เห็นว่า มีความเป็นไปได้ที่จะใช้วิธีการและเทคนิคต่างๆ เพื่อปรับปรุงความจำ การใช้เทคนิคและแบบฝึกหัดการจำที่แตกต่างกันทำให้เราสามารถออกกำลังกายสมองและปรับปรุงความสามารถในการจดจำได้ สำหรับผู้ที่ต้องการปรับปรุงหน่วยความจำ การทำความเข้าใจเทคโนโลยี MEG และการวิเคราะห์ข้อมูลถือเป็นขั้นตอนสำคัญ
ดังนั้นจึงมีความสัมพันธ์ที่แยกกันไม่ออกระหว่างเทคโนโลยี MEG และหน่วยความจำ ด้วยการวิเคราะห์ข้อมูลจำนวนมาก เราจะสามารถเข้าใจวิธีการทำงานของสมองมนุษย์และกระบวนการสร้างความจำได้ดีขึ้น จากนั้นจึงพัฒนาวิธีการที่ดีขึ้นเพื่อปรับปรุงความสามารถด้านความจำของเรา เราเชื่อว่าในอนาคต ด้วยการพัฒนาและปรับปรุงเทคโนโลยีอย่างต่อเนื่อง เราจะมีวิธีการและเทคโนโลยีมากขึ้นเพื่อช่วยให้เราพัฒนาและใช้ความสามารถด้านความจำของเราได้ดียิ่งขึ้น จากมุมมองนี้ เราจำเป็นต้องปรับปรุงความจำของเรา Cistanche สามารถปรับปรุงความจำได้อย่างมาก เนื่องจาก Cistanche ยังสามารถควบคุมสมดุลของสารสื่อประสาท เช่น การเพิ่มระดับของอะเซทิลโคลีนและปัจจัยการเจริญเติบโต ซึ่งมีความสำคัญมากต่อความจำและการเรียนรู้ นอกจากนี้ เนื้อสัตว์ยังช่วยเพิ่มการไหลเวียนของเลือดและส่งเสริมการส่งออกซิเจน ซึ่งช่วยให้สมองได้รับสารอาหารและพลังงานที่เพียงพอ ซึ่งจะช่วยเพิ่มความมีชีวิตชีวาและความทนทานของสมอง

คลิกอาหารเสริมเพื่อปรับปรุงหน่วยความจำ
ตำแหน่งของคอยล์หัวได้รับการบันทึกระหว่างการบันทึกทั้งหมดโดยใช้การระบุตำแหน่งหัวอย่างต่อเนื่อง (cHPI) ช่วยให้เราสามารถติดตามตำแหน่งหัวแม่มือที่แน่นอนภายในเครื่องสแกน MEG ในแต่ละจุดเวลา เราใช้ข้อมูลนี้เพื่อทำการแก้ไขการเคลื่อนไหวที่แม่นยำในขั้นตอนต่อมาของการวิเคราะห์ข้อมูล
ข้อมูล MRI ทางกายวิภาคที่บันทึกไว้สอดคล้องกับโครงสร้าง T1 พารามิเตอร์การรับข้อมูลสำหรับการสแกนมีการรายงานดังนี้: ขนาดว็อกเซล=1.0 × 1.0 × 1.0 มม. (หรือ 1.0 มิลลิเมตร3); ขนาดเมทริกซ์ที่สร้างขึ้นใหม่ 256 × 256; เวลาสะท้อน (TE) 2.96 ms และเวลาการทำซ้ำ (TR) 5,000 ms และแบนด์วิดท์ 240 Hz/Px ในขั้นตอนต่อมาของการวิเคราะห์ การสแกน MR แบบถ่วงน้ำหนักแบบ T1- แต่ละครั้งจะถูกลงทะเบียนร่วมกับเทมเพลตสมอง MNI มาตรฐานผ่านการแปลงแบบแอฟฟินี จากนั้นจึงอ้างอิงไปยังพื้นที่เซ็นเซอร์ MEG โดยใช้ข้อมูลรูปร่างศีรษะ Polhemus และข้อมูลทั้งสาม คะแนนความไว้วางใจที่วัดได้ในระหว่างเซสชัน MEG
การประมวลผลข้อมูลล่วงหน้า
ข้อมูลเซ็นเซอร์ MEG แบบดิบ (กราดิโอมิเตอร์ระนาบ 204 ตัวและแมกนีโตมิเตอร์ 102 ตัว) ได้รับการประมวลผลล่วงหน้าโดย MaxFilter (Taulu และ Simola 2006) เพื่อลดสัญญาณรบกวนที่เกิดขึ้นภายนอกหนังศีรษะโดยใช้การแยกพื้นที่สัญญาณ ภายในเซสชันเดียวกัน Maxfilter ยังปรับสัญญาณสำหรับการเคลื่อนไหวของศีรษะและสุ่มตัวอย่างจาก 1,{5}} เป็น 250 Hz
ข้อมูลถูกแปลงเป็นรูปแบบ SPM และวิเคราะห์เพิ่มเติมใน Matlab (MathWorks, Natick, Massachusetts, USA) โดยใช้ OSL (OHBA Software Library) ซึ่งเป็นกล่องเครื่องมือที่มีให้ใช้งานฟรีซึ่งอาศัยการรวมกันของ FSL (Woolrich et al. 2009) SPM (Penny et al. 2007) และ Fieldtrip (Oostenveld et al. 2011) รวมถึงฟังก์ชันที่สร้างขึ้นภายในองค์กร ใช้ตัวกรองรอยบาก (48–52 Hz) เพื่อแก้ไขการรบกวนที่อาจเกิดขึ้นกับกระแสไฟฟ้า ข้อมูลถูกลดขนาดลงไปอีกเป็น 150 เฮิรตซ์ และข้อมูลบางส่วนซึ่งถูกแก้ไขโดยสิ่งประดิษฐ์ขนาดใหญ่ จะถูกลบออกหลังจากการตรวจสอบด้วยสายตา
จากนั้น เพื่อละทิ้งการรบกวนของการกระพริบตาและความผิดปกติของการเต้นของหัวใจจากข้อมูลสมอง การวิเคราะห์องค์ประกอบอิสระ (ICA) จึงถูกนำมาใช้เพื่อแยกย่อยสัญญาณดั้งเดิมให้เป็นส่วนประกอบอิสระ จากนั้นส่วนประกอบที่ทำให้เกิดการกระพริบตาและการเต้นของหัวใจจะถูกแยกออกก่อนแล้วจึงทิ้งไป สัญญาณถูกสร้างขึ้นใหม่โดยใช้ส่วนประกอบที่เหลือ (Mantini และคณะ 2011) จากนั้นเกิดขึ้นในการทดลอง 80 ครั้ง (หนึ่งรายการสำหรับข้อความที่ตัดตอนมาแต่ละเพลง) นาน 3,500 มิลลิวินาทีในแต่ละครั้ง (โดยมีเวลาก่อนกระตุ้น 100 มิลลิวินาทีที่ใช้สำหรับการแก้ไขพื้นฐาน) ( รูปที่ 1B)
การทดสอบแบบตัวแปรเดียวและการจำลองแบบมอนติคาร์โลบนเซ็นเซอร์ MEG
แม้ว่าจุดสนใจหลักของเราอยู่ที่ข้อมูลสมองที่สร้างขึ้นใหม่จากแหล่งที่มา MEG แต่การวิเคราะห์ข้อมูลเซ็นเซอร์ MEG ครั้งแรกนั้นได้รับการคำนวณ โดยสอดคล้องกับคำแนะนำที่ล้ำสมัยสำหรับแนวทางปฏิบัติที่ดีที่สุดในการวิเคราะห์ MEG (Gross et al. 2013)

ดังนั้น เช่นเดียวกับการศึกษาที่เกี่ยวข้องกับงาน MEG และการตรวจคลื่นสมองด้วยคลื่นไฟฟ้า (EEG) จำนวนมาก (รวมและคณะ 2013) เราจึงหาค่าเฉลี่ยของการทดลองตามเงื่อนไข โดยได้รับการทดลองเฉลี่ยครั้งสุดท้ายสองครั้งสำหรับ M และ N ตามลำดับ จากนั้น เรารวมระนาบกราดิโอมิเตอร์แต่ละคู่เข้าด้วยกันด้วยผลรวมรากกำลังสอง หลังจากนั้น เราทำการทดสอบทีสำหรับแต่ละจุดเวลาในช่วงเวลา 0–2.500 วินาทีและแต่ละระนาบกราดิโอมิเตอร์รวมกัน ซึ่งตัดกันระหว่าง M กับ N
เพื่อแก้ไขการเปรียบเทียบหลายรายการ เราได้คำนวณการจำลองมอนติคาร์โล (MCS) (Kroese et al. 2011) ด้วยการเรียงสับเปลี่ยน 1,000 บนกลุ่มของผลลัพธ์ที่มีนัยสำคัญที่เกิดจากการทดสอบที เราพิจารณาคลัสเตอร์ดั้งเดิมที่มีนัยสำคัญซึ่งมีขนาดใหญ่กว่าขนาดคลัสเตอร์สูงสุด 99.9% ของข้อมูลที่ดัดแปลง รายละเอียดเพิ่มเติมเกี่ยวกับขั้นตอนที่ใช้กันอย่างแพร่หลายนี้สามารถพบได้ใน Bonetti และคณะ (2020), Bonetti, Brattico, Carlomagno และคณะ (2021a), โบเน็ตติ, บรูซโซเน, เซดกี และอื่นๆ (2021b), Bonetti, Brattico, Vuust และคณะ (2021c) และ Fernández-Rubio, Brattico และคณะ (2022a), FernàndezRubio, Carlomagno และคณะ (2022b), เฟอร์นันเดซ-รูบิโอ, โอลเซ่น และคณะ (2022c)
การวิเคราะห์นี้ทำให้เกิดความแตกต่างอย่างมากระหว่างเงื่อนไขการทดลอง นอกจากนี้ กิจกรรมของสมองที่บันทึกไว้ในช่อง MEG ซึ่งก่อตัวเป็นกลุ่มที่มีนัยสำคัญซึ่งส่งออกโดยการวิเคราะห์ MCS ได้สรุปอนุกรมเวลา ซึ่งนำเสนอองค์ประกอบความถี่หลักสองส่วน ดังที่แสดงในรูปที่ S2A ส่วนประกอบความถี่ที่เร็วกว่าจะถึงจุดสูงสุดหลังจากการนำเสนอแต่ละรายการที่สร้างลำดับ ในขณะที่ส่วนประกอบความถี่ที่ช้ากว่าจะมาพร้อมกับลำดับทั้งหมด
หลักฐานนี้ได้รับการสนับสนุนเพิ่มเติมโดยการคำนวณการแปลงเวฟเล็ต Morlet ที่ซับซ้อน (Daubechies 1992) กับข้อมูลเซ็นเซอร์ MEG ทั้งหมด ซึ่งเน้นการมีส่วนร่วมหลักของ 1 และ 4 Hz ไปยังสัญญาณ MEG ที่บันทึกไว้ระหว่างการทำงาน (รูปที่ S2B) นอกจากนี้ การวิเคราะห์นี้แสดงกำลังที่เห็นได้ชัดแต่อ่อนกว่าประมาณ 10 Hz
มีข้อสังเกตว่า กำลัง 10 เฮิร์ตซ์ไม่ได้ถูกล็อคด้วยเวลาเพื่อชดเชยการเริ่มต้นของซีเควนซ์ดนตรี ดังนั้น การวิเคราะห์ต่อไปนี้ของเราจึงมุ่งเน้นไปที่ย่านความถี่สองย่านซึ่งกำหนดไว้ที่ประมาณ 1 และ 4 เฮิร์ตซ์เป็นหลัก เนื่องจากเป็นความถี่ที่มีพลังมากที่สุด สองแบนด์นี้คือ 0.1–1 และ 2–8 Hz นอกจากนี้ เราทำการวิเคราะห์เพิ่มเติมเกี่ยวกับช่วงความถี่ที่กำหนดไว้ประมาณ 10 เฮิรตซ์ เนื่องจากมีกำลังที่ลดลงแต่สามารถแยกแยะได้ วงดนตรีดังกล่าวคือ 8–12 Hz
ที่สำคัญ เราตั้งสมมติฐานว่าคลื่นความถี่ 2–8 และ 0.1–1 Hz จัดทำดัชนีกระบวนการหลักสองกระบวนการที่เกี่ยวข้องกับงานทดลองของเรา: การประมวลผลรายการเดี่ยวที่สร้างลำดับเวลา (i—การประมวลผลในพื้นที่) และการรับรู้ ลำดับชั่วคราวเป็นวัตถุที่เหนือกว่าที่ครอบคลุม (ii— การประมวลผลระดับโลก)
การฟื้นฟูแหล่งที่มา
เราใช้วิธีการสร้างแหล่งกำเนิดใหม่ที่ทันสมัยเพื่อประมาณแหล่งที่มา ซึ่งสร้างสัญญาณที่เราบันทึกไว้ในเซ็นเซอร์ MEG (รูปที่ 1C และรูปที่ 2A) (Huang et al. 1999; Hillebrand และ Barnes 2{{ 7}}05) ที่สำคัญ อัลกอริธึมการสร้างแหล่งที่มาใหม่ได้รับการคำนวณอย่างเป็นอิสระสำหรับคลื่นความถี่สามย่านที่เกี่ยวข้องในการศึกษา (0.1–1, 2–8 และ 8–12 Hz) เพื่อระบุลักษณะการตอบสนองที่เกิดขึ้นต่อ M และ N ในคลื่นความถี่ทั้งสามที่แตกต่างกันนี้ . โดยเฉพาะขั้นตอนต่อไปนี้ถูกนำมาใช้
ขั้นแรก ข้อมูลต่อเนื่อง (ก่อนยุค) จะถูกกรองผ่านแถบความถี่ออกเป็นสามย่านความถี่ ประการที่สอง ข้อมูลที่กรอง (แยกจากกันสำหรับทั้งสามแบนด์) ได้ถูกยุคสมัยแล้ว ประการที่สาม ข้อมูลยุคจะถูกส่งไปยังอัลกอริธึมการฟื้นฟูแหล่งที่มาที่อธิบายไว้ด้านล่าง
อัลกอริธึมดังกล่าวเกี่ยวข้องกับสองขั้นตอนต่อมา: (i) การออกแบบแบบจำลองไปข้างหน้าและ (ii) การคำนวณโซลูชันผกผัน แบบจำลองข้างหน้าเป็นแบบจำลองทางทฤษฎีที่ถือว่าแหล่งกำเนิดสมองแต่ละแหล่งเป็นไดโพลที่ทำงานอยู่ และอธิบายว่ากำลังรวมของไดโพลดังกล่าวจะสะท้อนผ่านเซ็นเซอร์ MEG ทั้งหมดอย่างไร (ในกรณีของเรา เราใช้ทั้งแมกนีโตมิเตอร์และกราดิโอมิเตอร์ระนาบ) (Huang et al. 1999)
ที่นี่ เราใช้ตาราง 8- มม. ซึ่งส่งกลับตำแหน่งไดโพล 3,559 ตำแหน่ง (voxels) ภายในสมองทั้งหมด หลังจากลงทะเบียนข้อมูล T1 โครงสร้างแต่ละรายการด้วย fiducials (ข้อมูลเกี่ยวกับจุดสังเกตส่วนหัว) แบบจำลองข้างหน้าจะถูกคำนวณโดยใช้วิธีการที่ใช้กันอย่างแพร่หลายที่เรียกว่า "Single Shell" ซึ่งนำเสนอโดยละเอียดโดย Nolte (2003) ผลลัพธ์ของการคำนวณดังกล่าวเรียกอีกอย่างว่าแบบจำลองฟิลด์ข้อมูลลูกค้าเป้าหมายถูกจัดเก็บไว้ในเมทริกซ์ L (แหล่งที่มา × ช่องสัญญาณ MEG) ในบางกรณีที่ไม่มีโครงสร้าง T1 เราทำการคำนวณฟิลด์ลูกค้าเป้าหมายโดยใช้เทมเพลต (MNI152-T1 ที่มีความละเอียดเชิงพื้นที่ 8- มม.)
ขั้นตอนที่สองของการสร้างแหล่งที่มาขึ้นใหม่คือการคำนวณวิธีแก้ปัญหาแบบผกผัน (เช่น การประมาณค่าเครื่องกำเนิดสัญญาณประสาทตามกิจกรรมของสมองที่บันทึกด้วย MEG) ในการศึกษาของเรา เราเลือกบีมฟอร์มมิ่ง ซึ่งเป็นหนึ่งในอัลกอริธึมที่ได้รับความนิยมและมีประสิทธิภาพมากที่สุดที่มีอยู่ในสาขานี้ (Huang et al. 1999; Hillebrand และ Barnes 2005) ขั้นตอนนี้ใช้ชุดน้ำหนักที่แตกต่างกันตามลำดับที่ใช้กับตำแหน่งของแหล่งที่มา เพื่อแยกการมีส่วนร่วมของแต่ละแหล่งที่มาในกิจกรรมที่บันทึกโดยช่อง MEG สำหรับแต่ละช่วงเวลา (Hillebrand และ Barnes 2005; Brookes et al. 2007) ในระดับเทคนิคมากขึ้น วิธีแก้ปัญหาแบบผกผันที่ใช้บีมฟอร์มมิ่งสามารถอธิบายได้ด้วยขั้นตอนหลักต่อไปนี้
ขั้นแรก ข้อมูลที่บันทึกโดยเซ็นเซอร์ MEG (B) ณ เวลา t สามารถอธิบายได้ด้วยสมการต่อไปนี้ (3):
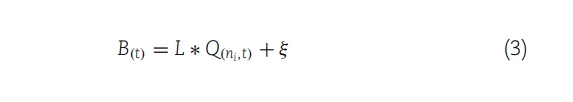
โดยที่ L เป็นแบบจำลองสนามตะกั่วที่อธิบายไว้ข้างต้น Q คือเมทริกซ์ไดโพลที่มีกิจกรรมของไดโพลแต่ละตัวที่ใช้งานอยู่ (q) เมื่อเวลาผ่านไป และ ε คือสัญญาณรบกวน (ดู Huang et al. (2004) สำหรับรายละเอียดเพิ่มเติม) ดังนั้น เพื่อแก้ปัญหาผกผัน เราต้องคำนวณ Q โดยใช้บีมฟอร์มมิ่ง ขั้นตอนดังกล่าวจะหมุนรอบการคำนวณน้ำหนักที่ใช้กับเซ็นเซอร์ MEG ในแต่ละจุดเวลา ดังที่แสดงสำหรับไดโพลเดี่ยว q ในสมการ (4 ):

อันที่จริงเพื่อให้ได้ q ควรคำนวณน้ำหนัก W (ตัวห้อย T หมายถึงเมทริกซ์ทรานสโพส) ในการทำเช่นนั้น การสร้างบีมฟอร์มิงอาศัยการคูณเมทริกซ์ระหว่าง L และเมทริกซ์ความแปรปรวนร่วมระหว่างเซ็นเซอร์ MEG (C) ซึ่งคำนวณจากการทดลองที่ต่อกัน โดยเฉพาะอย่างยิ่งสำหรับแหล่งที่มาของสมองแต่ละแหล่ง n น้ำหนัก Wn จะถูกคำนวณดังนี้:

สิ่งที่ต้องสังเกตคือ การคำนวณแบบจำลองสนามตะกั่วนั้นทำขึ้นสำหรับทิศทางหลักสามทิศทางของแต่ละแหล่งกำเนิดสมอง (ไดโพล) ตามข้อมูลของ Nolte (Nolte 2003) อย่างไรก็ตาม ก่อนที่จะคำนวณน้ำหนัก การวางแนวจะลดลงเหลือหนึ่งโดยใช้อัลกอริธึมการแบ่งแยกค่าเอกพจน์ในการคูณเมทริกซ์ที่รายงานในสมการ (6) ขั้นตอนนี้ถูกนำมาใช้อย่างกว้างขวางเพื่อลดความซับซ้อนของเอาท์พุตบีมฟอร์มมิ่ง (Huang et al. 2004; Woolrich et al. 2011)
ในที่นี้ l แสดงถึงแบบจำลองฟิลด์ข้อมูลลูกค้าเป้าหมายที่มีการวางแนวสามทิศทาง ในขณะที่ L คือแบบจำลองการวางแนวเดียวที่ได้รับการแก้ปัญหาที่ใช้ใน (5)
สุดท้ายนี้ ตามที่กล่าวไว้ข้างต้น เกี่ยวกับการใช้การเข้ารหัสของอัลกอริธึมดังกล่าว เราได้ใช้กล่องเครื่องมือ Matlab เช่น OSL, FieldTrip, SPM (ฟังก์ชันสำหรับการประมวลผลล่วงหน้า MEEG และกล่องเครื่องมือการสร้างลำแสง SPM) และ FSL ยิ่งไปกว่านั้น โค้ดเหล่านั้นยังได้รับการเสริมด้วยสคริปต์และฟังก์ชันที่สร้างขึ้นภายในบริษัทอีกด้วย

กิจกรรมของสมองในแต่ละองค์ประกอบของลำดับเวลา
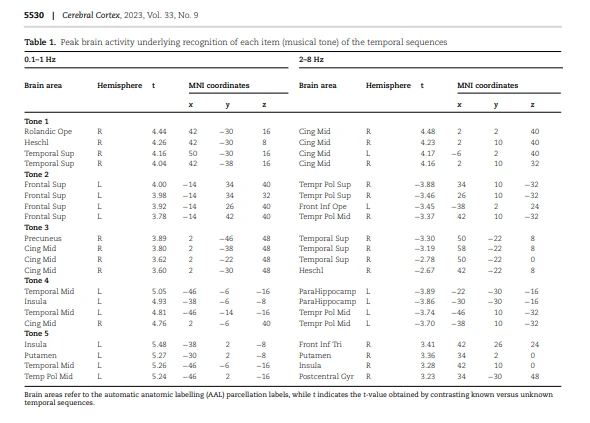
อันดับแรก เราต้องการตรวจสอบการทำงานของสมองที่เป็นพื้นฐานของแต่ละรายการในลำดับเวลาของเรา (รูปที่ 1D, รูปที่ S3, S4, ตารางที่ 1 และตาราง S1) ที่นี่ เราคำนวณค่าสัมบูรณ์ของอนุกรมเวลาที่สร้างขึ้นใหม่ เนื่องจากเราสนใจความแรงสัมบูรณ์ของสัญญาณ
เพื่อทำการวิเคราะห์ระดับแรกสำหรับผู้เข้าร่วมแต่ละคน เราใช้โมเดลเชิงเส้นทั่วไป (GLM) แบบจำลองดังกล่าวได้รับการคำนวณจากแหล่งข้อมูลที่สร้างขึ้นใหม่สำหรับแต่ละจุดเวลาและแหล่งที่มาของสมอง (Hunt et al. 2012) GLM ส่งคืนผลกระทบหลัก (ความเปรียบต่างของการประมาณค่าพารามิเตอร์ (COPE)) ของ M และ N รวมถึงความเปรียบต่าง พวกเขาถูกจ้างงานเนื่องจากพวกเขาได้รับอนุญาตให้ได้รับผลกระทบหลักซึ่งได้รับการปรับอย่างมากตามความแปรปรวนของผู้เข้าร่วม ผลลัพธ์เหล่านี้ถูกส่งไปยังการวิเคราะห์ระดับที่สอง โดยใช้การทดสอบทีหนึ่งตัวอย่างที่มีความแปรปรวนเชิงพื้นที่ที่ได้รับจากเคอร์เนลเกาส์เซียน (เต็มความกว้างที่ครึ่งสูงสุด: 50 มม.) (Huang et al. 2004)
ในกรณีนี้ เราสนใจที่จะสังเกตการทำงานของสมองที่แตกต่างกันซึ่งเป็นรากฐานของการจดจำลำดับเวลาของ M และ N โดยแยกจากแต่ละย่านความถี่และรายการ (โทนเสียงดนตรี) ที่สร้างลำดับดังกล่าว ดังนั้นเราจึงคำนวณการจำลองมอนติคาร์โล (MCS) แบบคลัสเตอร์ 15 (5 โทน × 3 ย่านความถี่) บนผลการวิเคราะห์ระดับที่สอง (ระดับกลุ่ม) โดยเฉลี่ยในช่วงเวลาห้าเวลาที่สอดคล้องกับระยะเวลาของโทนเสียงดนตรี . การวิเคราะห์ MCS ประกอบด้วยการเรียงสับเปลี่ยน 1,000 และเกณฑ์การสร้างคลัสเตอร์ที่ P < 0.05 (จากการทดสอบระดับที่สอง) โดยเฉพาะอย่างยิ่ง การทดสอบ MCS ประกอบด้วยการตรวจจับกลุ่มเชิงพื้นที่ของค่าที่มีนัยสำคัญในข้อมูลต้นฉบับ จากนั้นข้อมูลดังกล่าวจะถูกเรียงสับเปลี่ยน และตรวจพบกระจุกเชิงพื้นที่ของค่านัยสำคัญที่เรียงสับเปลี่ยน ขั้นตอนนี้ได้รับการคำนวณหลายครั้ง (เช่น 1,000) และก่อให้เกิดการกระจายการอ้างอิงของขนาดคลัสเตอร์ที่ตรวจพบสำหรับการเรียงสับเปลี่ยนแต่ละครั้ง ในที่สุด ขนาดคลัสเตอร์ดั้งเดิมก็ถูกนำมาเปรียบเทียบกับการกระจายอ้างอิง คลัสเตอร์ดั้งเดิมจะถือว่ามีนัยสำคัญหากขนาดคลัสเตอร์ของข้อมูลที่ดัดแปลงมีขนาดใหญ่กว่าขนาดคลัสเตอร์ดั้งเดิมน้อยกว่าระดับ MCS ในกรณีนี้ เนื่องจากเราคำนวณการวิเคราะห์ 15 ครั้ง เราจึงแก้ไขการเปรียบเทียบหลายรายการโดยการหารระดับ MCS มาตรฐาน (=0.05) ด้วย 15 ทำให้ได้ MCS ที่อัปเดต=0.003 (เช่น ต้นฉบับ คลัสเตอร์มีความสำคัญหากขนาดของคลัสเตอร์มีขนาดใหญ่กว่า 99.7% ของขนาดคลัสเตอร์ที่เปลี่ยนแปลง)
เนื่องจากช่วงความถี่ช่วงใดช่วงหนึ่งที่ใช้ในการศึกษานี้ค่อนข้างต่ำ ({{0}}.1–1 Hz) เราจึงคำนวณการสร้างแหล่งกำเนิดใหม่และความแตกต่างระหว่าง M และ N สำหรับ 0.1–1 Hz โดยใช้สามช่วงที่แตกต่างกัน เส้นพื้นฐาน (500, 1,000 และ 2,000 ms) สิ่งนี้ทำเพื่อแสดงให้เห็นว่าผลลัพธ์ดั้งเดิมของเราไม่ได้ขับเคลื่อนด้วยความยาวของเส้นฐาน ผลลัพธ์ของขั้นตอนนี้แสดงไว้ในรูปที่ S5 และรายงานโดยละเอียดในตาราง S2

การจัดกลุ่มฟังก์ชัน K-mean
เพื่อเสริมผลลัพธ์ก่อนหน้านี้ของเรา และให้คำอธิบายโดยละเอียดเพิ่มเติมเกี่ยวกับขอบเขตเชิงพื้นที่ของแหล่งที่มาของสมองที่ทำงานตลอดจนกิจกรรมของพวกเขาในช่วงเวลาหนึ่ง เราได้กำหนดการแบ่งส่วนสมองตามหน้าที่การใช้งาน เรานำสิ่งที่เรียกว่าการจัดกลุ่มฟังก์ชันแบบเคมีนมาใช้ ซึ่งประกอบด้วยชุดของอัลกอริธึมการจัดกลุ่มแบบเคมีน ซินากาและหยาง (2020) ดำเนินการเกี่ยวกับข้อมูลการทำงานและข้อมูลเชิงพื้นที่ของอนุกรมเวลาของแหล่งกำเนิดสมองที่สร้างขึ้นใหม่ (voxels) แต่ละอนุกรม วิธีการนี้ได้รับการปฏิบัติตามสำหรับสองย่านความถี่ที่ส่งคืนผลลัพธ์ที่แข็งแกร่งที่สุดในการวิเคราะห์ครั้งก่อนของเรา และเชื่อมโยงกับรายการเดียวของลำดับหรือกับลำดับทั้งหมด คือ 0.1–1 และ 2–8 Hz
โดยเฉพาะอย่างยิ่งในขั้นตอนแรก อัลกอริธึมการจัดกลุ่มฟังก์ชัน k-means คำนวณการจัดกลุ่มบนพารามิเตอร์การทำงานพื้นฐาน เช่น ค่าสูงสุดและดัชนีที่สอดคล้องกันของอนุกรมเวลาว็อกเซล เราอ้างถึงขั้นตอนนี้ว่าเป็นการจัดกลุ่มฟังก์ชัน ขั้นตอนนี้ส่งคืนชุดพัสดุอิสระที่จัดกลุ่มตามโปรไฟล์การทำงานของ voxels ของสมอง อันที่จริง พัสดุดังกล่าวอาจมีว็อกเซลที่พุ่งสูงสุดในเวลาเดียวกันโดยประมาณ (รูปที่ 2B ซ้าย) หรือที่มีความแรงสัมบูรณ์ใกล้เคียงกัน (รูปที่ 2B ขวา) ตามที่เป็นไปได้ แนะนำให้จัดกลุ่มตามดัชนีอนุกรมเวลาสูงสุดเมื่อการทำงานของสมองถูกแปลในภูมิภาคต่างๆ ในเวลาต่างกัน
ในทางกลับกัน เมื่อกิจกรรมมีความสัมพันธ์อย่างมากกับ voxels ของสมองส่วนใหญ่ การจัดกลุ่มควรทำตามค่าอนุกรมเวลาสูงสุด และจะช่วยในการระบุตัวกำเนิดหลักของสัญญาณประสาท ในการศึกษานี้ 0.1– 1 Hz (การประมวลผลลำดับทั่วโลก) นำเสนอจุดสูงสุดของกิจกรรมที่แตกต่างกันซึ่งเปลี่ยนแปลงไปตามกาลเวลา ดังนั้นจึงถูกจัดกลุ่มโดยพิจารณาดัชนีเวลาของจุดสูงสุดดังกล่าว แตกต่างกัน 2–8 Hz (การประมวลผลเฉพาะที่ของลำดับ) แสดงกิจกรรมที่มีความสัมพันธ์กันอย่างมาก ดังนั้นจึงถูกรวมกลุ่มโดยใช้ค่าสัมบูรณ์ของกิจกรรมสูงสุดดังกล่าว ดังที่ทำกันอย่างแพร่หลายในการวิเคราะห์การจัดกลุ่ม (Garcia-Dias et al. 2019) ในกรณีของเรา การคำนวณอัลกอริธึมการจัดกลุ่มบนชุดลำดับของ k คลัสเตอร์ก็มีประโยชน์เช่นกัน (ตั้งแต่ k=2 ถึง 20) จากนั้น โซลูชันการจัดกลุ่มที่ดีที่สุดจะถูกตัดสินใจตามกลยุทธ์การประเมินที่รู้จักกันดี (การวิเคราะห์พฤติกรรม) เช่น วิธี/กฎข้อศอก (Liu และ Deng 2021) และค่าสัมประสิทธิ์ภาพเงา (Al-Zoubi และ Al Rawi 2008)
วิธีข้อศอกประกอบด้วยการวางแผนผลรวมของข้อผิดพลาดกำลังสอง (SSE) ขององค์ประกอบที่เป็นของกลุ่มที่เกี่ยวข้องกับเซนทรอยด์ของคลัสเตอร์ โดยเป็นฟังก์ชันของโซลูชันคลัสเตอร์ที่มีจำนวนเพิ่มมากขึ้นเรื่อยๆ จากนั้น วิธีการนี้จะแนะนำให้ระบุ "ข้อศอก" ของเส้นโค้งด้วยสายตาว่าเป็นจำนวนคลัสเตอร์ที่จะใช้ ค่าสัมประสิทธิ์ภาพเงาคือค่า (ตั้งแต่ −1 ถึง +1) ซึ่งแสดงความคล้ายคลึงกันขององค์ประกอบกับกระจุกของมัน (การทำงานร่วมกัน) เมื่อเปรียบเทียบกับกระจุกอื่น ๆ (การแยก) ค่าสัมประสิทธิ์ภาพเงาที่สูงบ่งชี้ว่าองค์ประกอบนั้นเข้าคู่กับคลัสเตอร์ได้ดีแต่ไม่ดีกับคลัสเตอร์ข้างเคียง
เมื่อตัดสินใจเลือกโซลูชันการจัดกลุ่มเชิงพื้นที่ที่ดีที่สุดแล้ว ควรคำนวณการจัดกลุ่มที่สองเกี่ยวกับข้อมูลเชิงพื้นที่ (การจัดกลุ่มเชิงพื้นที่ รูปที่ 2C) แท้จริงแล้ว การทำงานของสมองส่วนใหญ่อธิบายได้ด้วยพารามิเตอร์ 2 ตัว ตำแหน่งเชิงพื้นที่ และความแปรผันตามเวลา การรวมกลุ่มของ voxels ของสมองเดิมออกเป็นพื้นที่ทำงานที่แตกต่างกันอาจส่งผลให้มีพื้นที่ขนาดใหญ่ที่เกี่ยวข้องกับเครือข่ายของพื้นที่สมองที่แยกออกจากกันซึ่งมีการทำงานในเวลาเดียวกัน ดังนั้น เพื่อกำหนดการแบ่งพื้นที่ที่ดีขึ้น จึงเป็นประโยชน์ที่จะดำเนินการวิเคราะห์การจัดกลุ่มบนพิกัดเชิงพื้นที่ของแต่ละพื้นที่การทำงานด้วย ในการศึกษาของเรา เราได้พิจารณาพิกัดเชิงพื้นที่สามมิติ (ในปริภูมิ MNI) ของวอเซลที่สร้างแต่ละผืนหน้าที่การทำงาน การคำนวณการจัดกลุ่มนี้ดำเนินการสำหรับชุดลำดับของโซลูชันคลัสเตอร์ k (ตั้งแต่ k=2 ถึง 10) สำหรับพัสดุครั้งละหนึ่งชุด สำหรับการจัดกลุ่มฟังก์ชัน เราได้ประเมินวิธีแก้ปัญหาที่ดีที่สุดสำหรับการจัดกลุ่มเชิงพื้นที่โดยใช้กฎข้อศอกและค่าสัมประสิทธิ์ภาพเงา การจัดกลุ่มฟังก์ชัน k-means เสร็จสมบูรณ์เมื่อดำเนินการตามขั้นตอนนี้กับพัสดุที่ใช้งานได้ทั้งหมด ซึ่งแนะนำการแบ่งกลุ่มที่มีประสิทธิผลสำหรับงานทดลองโดยพิจารณาจากข้อมูลเชิงพื้นที่และเชิงพื้นที่ (ตัวอย่างถูกรายงานในรูปที่ S7, ตาราง S3 และ S4 สำหรับ 0.1– 1 Hz และรูปที่ S8, ตาราง S5, S6 และ S7 สำหรับ 2–8 Hz) ในขั้นตอนสุดท้าย อนุกรมเวลาของวอเซลสมองของแต่ละพัสดุจะถูกนำมาเฉลี่ยรวมกันเพื่อให้อนุกรมเวลาสุดท้ายสำหรับพัสดุ ข้อมูลเพิ่มเติมเกี่ยวกับการจัดกลุ่มฟังก์ชัน k-means มีการรายงานในวัสดุเสริม
ความแตกต่างเมื่อเวลาผ่านไปสำหรับแต่ละพัสดุ
ในที่นี้ การจัดกลุ่มฟังก์ชันแบบเคมีนได้ดำเนินการกับผลกระทบหลักระดับกลุ่มของ M และ N โดยเฉลี่ยรวมกัน จากนั้น เพื่อให้ได้เอฟเฟกต์หลักของ M และ N สำหรับแต่ละพัสดุและผู้เข้าร่วม เราได้เฉลี่ยเอฟเฟกต์หลักระดับแรกของ M และ N (จาก GLM) เหนือ voxels สมองที่เป็นของแพ็คเกจการทำงานแต่ละอัน ซึ่งส่งผลให้มีอนุกรมเวลาใหม่สำหรับผู้เข้าร่วมแต่ละคน พัสดุที่ใช้งานได้ และเงื่อนไขการทดลอง (M และ N) อนุกรมเวลาดังกล่าวถูกส่งไปยังคอนทราสต์ที่ไม่แปรเปลี่ยน (M กับ N; รูปที่ 2D, วิธีการ และรูปที่ S9 และ S10, ผลลัพธ์) โดยเฉพาะอย่างยิ่ง สำหรับแต่ละพัสดุและจุดเวลา เราได้คำนวณการทดสอบทีสองตัวอย่างหนึ่งรายการ (เกณฑ์ P < 0.05) ซึ่งตัดกันผลกระทบหลักของ M กับ N จากนั้น เราแก้ไขการเปรียบเทียบหลายรายการโดยใช้ วิธี MCS สองมิติที่มีการพีชคณิต 1,000 (MCS P < 0.001) รายละเอียดเพิ่มเติมเกี่ยวกับขั้นตอนทางสถิติที่นำมาใช้กันอย่างแพร่หลายนี้มีอยู่ใน Bonetti และคณะ (2020), Bonetti, Brattico, Carlomagno และคณะ (2021a), โบเน็ตติ, บรูซโซเน, เซดกี และอื่นๆ (2021b), Bonetti, Brattico, Vuust และคณะ (2021c) เช่นเดียวกับการวิเคราะห์อื่นๆ การดำเนินการดังกล่าวถูกสังเกตสำหรับคลื่นความถี่หลักสองคลื่นที่ตรวจสอบในการศึกษา (รูปที่ 3 และตาราง S8)
ผลลัพธ์
การออกแบบการทดลองและการวิเคราะห์เซ็นเซอร์ MEG
ในตอนแรก หลังจากประมวลผลข้อมูล MEG ล่วงหน้าแล้ว (ดูรูปที่ 1A และ B และวัสดุและวิธีการสำหรับรายละเอียด) เราได้เปรียบเทียบการทำงานของสมองที่เป็นรากฐานของการจดจำ M กับ N ซึ่งถูกบันทึกโดยเซ็นเซอร์ MEG ขั้นตอนนี้ส่งคืนคลัสเตอร์ที่มีนัยสำคัญขนาดใหญ่ (P < 0.001, ขนาดคลัสเตอร์ k=2,117, ค่าเฉลี่ย=3.29, เวลา=0.547–1.180 วินาที) แสดงการทำงานของสมองที่แข็งแกร่งขึ้นสำหรับ M กับ N นอกจากนี้ กิจกรรมของสมองที่บันทึกไว้ในช่อง MEG ที่ก่อตัวเป็นกลุ่มที่มีนัยสำคัญดังกล่าวได้สรุปอนุกรมเวลา ซึ่งนำเสนอองค์ประกอบความถี่หลักสององค์ประกอบ ดังที่แสดงในรูปที่ S2A ส่วนประกอบความถี่ที่เร็วกว่าจะถึงจุดสูงสุดหลังจากการนำเสนอแต่ละรายการที่สร้างลำดับ ในขณะที่ส่วนประกอบความถี่ที่ช้ากว่าจะมาพร้อมกับลำดับทั้งหมด หลักฐานนี้ได้รับการสนับสนุนเพิ่มเติมโดยการคำนวณของการแปลงเวฟเล็ต Morlet ที่ซับซ้อนต่อการตอบสนองที่ปรากฏซึ่งบันทึกโดยข้อมูลเซ็นเซอร์ MEG ทั้งหมดที่เน้นการมีส่วนร่วมหลักของ 1 และ 4 Hz ไปยังสัญญาณ MEG ที่บันทึกระหว่างงาน (รูปที่ S2B) ดังนั้นการวิเคราะห์ต่อไปนี้ของเราจึงเน้นไปที่ย่านความถี่สองย่านซึ่งกำหนดไว้ประมาณ 1 และ 4 Hz ซึ่งก็คือ 0.1–1 และ 2– 8 Hz ที่สำคัญ เราตั้งสมมติฐานว่าย่านความถี่ 2–8 และ 0.1–1 เฮิร์ตซ์จัดทำดัชนีกระบวนการหลักสองกระบวนการที่เกี่ยวข้องกับงานทดลองของเรา: การประมวลผลรายการเดี่ยวที่สร้างลำดับชั่วคราว (i—การประมวลผลเฉพาะที่) และการรับรู้ลำดับชั่วคราวในฐานะผู้บังคับบัญชาที่ครอบคลุม วัตถุ (ii— การประมวลผลทั่วโลก)
แหล่งที่มาของการทำงานของสมองที่สร้างขึ้นใหม่และการวิเคราะห์รายการเดียว
เราเปรียบเทียบการทำงานของสมองที่สร้างขึ้นใหม่ภายใต้ลำดับ M กับ N (ดูวัสดุและวิธีการสำหรับรายละเอียด) ผลลัพธ์ที่แตกต่างกันเกิดขึ้นสำหรับสองย่านความถี่หลัก ({{0}}.1–1 และ 2–8 Hz) กิจกรรมของสมองสำหรับ 0.1–1 Hz นั้นแข็งแกร่งกว่าสำหรับ M เทียบกับ N โดยเฉพาะอย่างยิ่งในระหว่างการประมวลผลของสามรายการสุดท้ายของลำดับ ดังที่ปรากฎในรูปที่ 1D มะเดื่อ S3 – S5 กิจกรรมดังกล่าวได้อธิบายเครือข่ายสมองที่แพร่หลายซึ่งอยู่ภายใต้การประมวลผลทั่วโลกของลำดับ เกี่ยวข้องกับบริเวณสมองที่เกี่ยวข้องกับความทรงจำและกระบวนการประเมิน เช่น cingulate gyrus, ฮิบโปแคมปัส, อินซูลา, เพอคิวลัมหน้าผาก และด้อยกว่า เยื่อหุ้มสมองขมับ (MCS P < 0.001) ในทางกลับกัน การทำงานของสมองสำหรับย่านความถี่ 2–8 Hz โดยรวมแข็งแกร่งกว่าสำหรับ N กับ M และเกี่ยวข้องกับเยื่อหุ้มสมองการได้ยินเป็นหลัก (MCS P <0.001) สถิติของ voxels สมองที่มีนัยสำคัญสูงสุดสำหรับความถี่ 0.1–1 และ 2–8 Hz ได้รับการรายงานในตารางที่ 1 ในขณะที่ผลลัพธ์ที่ครอบคลุมสำหรับแถบความถี่ทั้งสามได้อธิบายไว้ในตาราง S1 และ S2
ความแตกต่างกับ ROI ที่ได้รับตามหน้าที่
เพื่อระบุลักษณะเฉพาะของกิจกรรมของสมองที่แผ่ขยายออกไปในช่วงเวลาหนึ่งโดยสมบูรณ์ เราได้กำหนดการแบ่งส่วนตามหน้าที่ของสมองโดยใช้การจัดกลุ่มฟังก์ชันแบบเคมีน (ดูวัสดุและวิธีการ และรูปที่ 2 และรูปที่ S6 สำหรับรายละเอียด) โดยแยกจากกันสำหรับ {{3} ย่านความถี่ }.1–1 และ 2–8 Hz สิ่งนี้ส่งผลให้เกิดอนุกรมเวลาใหม่สำหรับผู้เข้าร่วมแต่ละราย พัสดุเชิงการทำงาน และเงื่อนไขการทดลอง (M และ N) ซึ่งถูกส่งไปยังคอนทราสต์ที่ไม่แปรเปลี่ยน (M เทียบกับ N) (รูปที่ 3) และแก้ไขสำหรับการเปรียบเทียบหลายรายการโดยใช้ MCS แบบคลัสเตอร์
เช่นเดียวกับการวิเคราะห์ครั้งก่อนของเรา ตรวจพบการทำงานของสมองที่แข็งแกร่งที่สุดในแถบที่ช้ากว่าสำหรับ M ที่น่าสังเกตคือขยายจากการวิเคราะห์ครั้งแรกของเรา ผลลัพธ์ใหม่เหล่านี้เน้นชุดของชุดของชุดของสมองที่ทำงานตามลำดับที่มาพร้อมกับการประมวลผลของลำดับขมับ ดังที่แสดงในรูปที่ 3A สมองแสดงกิจกรรมเริ่มต้นในเยื่อหุ้มสมองการได้ยินด้านขวา โดยมีคุณลักษณะพิเศษคือพลังที่แรงกว่าเล็กน้อยสำหรับ M กับ N (รูปที่ 3A พื้นที่ 1: P < 0.0{ {10}}1, ขนาดคลัสเตอร์ k=39; หมายถึงค่า t=2.72; เวลาตั้งแต่การโจมตีของวัตถุครั้งแรก: 0–0 25 วิ) ต่อไป เราสังเกตการทำงานของระบบประสาทในเยื่อหุ้มสมองการได้ยินด้านซ้าย แต่ไม่มีความแตกต่างที่มีนัยสำคัญระหว่างเงื่อนไขการทดลอง (รูปที่ 3A พัสดุ 2) เริ่มต้นระหว่างรายการที่สองและสามและจุดสูงสุดในช่วงรายการที่ห้าของลำดับขมับ เราสังเกตเห็นการระเบิดของกิจกรรมในไจรัสซิงกูเลต์ ซึ่งแข็งแกร่งกว่าสำหรับ M เทียบกับ N (รูปที่ 3A, ส่วนที่ 3: P < {{34} }.001, k=92; t-value=2.73; เวลา: 0.45–1.05 วินาที) ด้วยความล่าช้าเล็กน้อย ลักษณะที่คล้ายกันก็ปรากฏขึ้นสำหรับห่อสมองขนาดใหญ่ที่ประกอบด้วยอินซูลา ส่วนหน้าของคอร์เทกซ์ขมับส่วนล่าง ฮิปโปแคมปัส และเพอคิวลัมส่วนหน้า เป็นอีกครั้งที่ M แข็งแกร่งกว่า N อย่างมาก (รูปที่ 3A, พัสดุ 4: P < 0.001, k=77; t-value=2.79; เวลา: 0.69– 1.19 วินาที) ในที่สุด เมื่อถึงจุดสูงสุดก่อนเวลาตอบสนองเฉลี่ยสำหรับการจัดหมวดหมู่ของผู้เข้าร่วม พบว่ามีกิจกรรมที่แข็งแกร่งกว่าในไจรัสหลังส่วนกลางและเยื่อหุ้มสมองรับความรู้สึกสำหรับ M กับ N (รูปที่ 3A, พัสดุ 5, คลัสเตอร์หลัก: P < 0.001, k=142; t-value=2.68; เวลา: 0.94–1.88 วินาที)

ในทางกลับกัน การวิเคราะห์ย่านความถี่ 2–8 เฮิร์ตซ์แสดงให้เห็นกลุ่มที่มีนัยสำคัญหลายกลุ่มของกิจกรรมที่แข็งแกร่งกว่าสำหรับ N และ M รอบจุดสูงสุดที่คมชัดของอนุกรมเวลา โดยเฉพาะอย่างยิ่งเมื่อเปรียบเทียบกับการวิเคราะห์ครั้งแรกของเราสำหรับ 5 รายการของลำดับเวลา ขั้นตอนที่สองนี้ระบุขอบเขตชั่วคราวของความแตกต่างดังกล่าวอย่างชัดเจน ซึ่งสอดคล้องกับสามเสียงสุดท้ายของลำดับชั่วคราว โดยเฉพาะความแตกต่างดังกล่าวเกี่ยวข้องกับสิทธิ (รูปที่ 3B, พัสดุ 1, คลัสเตอร์หลัก I: P < 0.001, k=11, t-value {{ 9}}.51; เวลา: 0.89–0.95 วินาที; II: P < 0.001, k {{ 17}}; t-value=2.22; เวลา: 1.21– 1.28 วินาที) และออกจากเยื่อหุ้มสมองการได้ยินหลัก (รูปที่ 3B, พัสดุ 2, คลัสเตอร์หลัก I: P < 0.{{46 }}01, k=12, ค่า t=−3.70; เวลา: 0.74–{{6{{7{{ 76}}}}}}.81 s; II: P < 0.001, k {{40}}; t-value {{ 42}}.09; เวลา: 0.87–{{1{{105}}1}}.95 วินาที; III: P < {{113} }.001, k {{50}}; t-value=2.90; เวลา: 0.64–0.69 วินาที) ด้วยความแรงที่ลดลง จึงมีการสังเกตกลุ่มของกิจกรรมที่คล้ายกันทางด้านขวา (รูปที่ 3B, พัสดุ 3, คลัสเตอร์หลัก I: P < 0.001, k=13, ค่า t=3.08; เวลา : 1.19– 1.27 s; II: P < 0.001, k=12; t-value=3.61; time: 0.89–0.96 s) และเยื่อหุ้มสมองส่วนการได้ยินรองและบริเวณ hippocampal ด้านซ้าย (รูปที่ 3B, พัสดุ 4, คลัสเตอร์หลัก I: P < 0.001, k=12, t-value {{86}} −2.97; เวลา: 0.74–0.81 s; II: P < 0.001, k {{95 }}; t-value=2.86; เวลา: 0.87–0.93 s) และ cingulate (รูปที่ 3B, พัสดุ 5, คลัสเตอร์หลัก I: P < 0.001, k=10, t-value { {109}}.03; เวลา: 0.90–0.96 วินาที; II: P < 0.001, k=9; t-value=−2.29; เวลา: 0.79– 0.84 วินาที) รายละเอียดเพิ่มเติมเกี่ยวกับความแตกต่างเหล่านี้ถูกรายงานไว้ในตาราง S8 และแสดงไว้อย่างกว้างขวางในรูปที่ เอส 9 และ เอส 10

โดยสรุป รูปที่ 4 แสดงให้เห็นปรากฏการณ์ที่น่าสนใจในเชิงคุณภาพ ในขณะที่การตอบสนองแบบ "เวฟเล็ต" ต่อเสียงแรกแสดงให้เห็นกิจกรรมที่คล้ายกันมากบนคอร์เทกซ์การได้ยินปฐมภูมิ (พาร์เซล i) และคอร์เทกซ์การได้ยินรอง อินซูลา บริเวณฮิปโปแคมปัส (พาร์เซล ii) และซิงกูเลท (พาร์เซล iii) จุดสูงสุดของเสียงต่อไปนี้แสดงให้เห็นความแตกต่างที่แตกต่างกัน แนวโน้ม โดยเฉพาะอย่างยิ่งในการตอบสนองต่อรายการที่สามและสี่ของลำดับ ในกรณีนี้ คอร์เทกซ์การได้ยินทุติยภูมิ อินซูลา บริเวณฮิปโปแคมปัส และซิงกูเลต์ ดูเหมือนจะถึงจุดสูงสุดก่อนคอร์เทกซ์การได้ยินปฐมภูมิ อย่างไรก็ตาม ตรงกันข้ามกับสิ่งที่อาจปรากฏในตอนแรก สิ่งนี้อาจไม่ได้บ่งชี้ถึงการตอบสนองที่เร็วขึ้นในพื้นที่เหล่านั้น ตัวอย่างเช่น เมื่อมองที่จุดสูงสุดประมาณ 0.5 วินาที (สี่เหลี่ยมจัตุรัสสีแดงแรกในรูปที่ 4) จุดสูงสุดแรก (ส่วนใหญ่เกิดขึ้นสำหรับเยื่อหุ้มสมองส่วนการได้ยินทุติยภูมิ อินซูลา พื้นที่ฮิปโปแคมปัส และซิงกูเลต์) ควรสอดคล้องกัน ไปยังส่วนประกอบ P300 ไปยังเสียงที่สองของรูปแบบ ในขณะที่จุดสูงสุดที่สอง (ส่วนใหญ่เกิดขึ้นสำหรับเยื่อหุ้มสมองการได้ยินหลัก) อาจเป็น P50 ไปยังเสียงที่สาม ปรากฏการณ์ที่คล้ายคลึงกันเกิดขึ้นกับรายการต่างๆ ของลำดับต่อไปนี้ (ตามที่ระบุไว้ในสี่เหลี่ยมสีแดงอันอื่นๆ)
สิ่งนี้อาจชี้ให้เห็นว่าในขณะที่การมีส่วนร่วมของเปลือกสมองการได้ยินปฐมภูมินั้นแข็งแกร่งกว่าสำหรับส่วนประกอบแรก (เช่น P50 และ N100) ซึ่งจัดทำดัชนีกระบวนการระดับล่าง แต่ส่วนประกอบในภายหลัง เช่น P300 อาจส่วนใหญ่ถูกสร้างขึ้นโดยพื้นที่ลำดับที่สูงกว่า เช่น การได้ยินรอง คอร์เทซ อินซูลา บริเวณฮิปโปแคมปัส และคอร์เทซซิงกูเลต ในสถานะปัจจุบัน นี่เป็นเพียงการสังเกตเชิงคุณภาพที่เรียกร้องให้มีการศึกษาในอนาคตโดยมีเป้าหมายเพื่อตรวจสอบปรากฏการณ์นี้โดยเฉพาะและในเชิงปริมาณ
การอภิปราย
การศึกษา MEG โดยใช้ลำดับดนตรีเผยให้เห็นการประมวลผลแบบคู่พร้อมกันในสมองที่เกี่ยวข้องกับการรับรู้ลำดับเวลาของการได้ยิน ในด้านหนึ่ง การนำเสนอรายการเดี่ยวๆ ในท้องถิ่นที่สร้างลำดับนั้นเชื่อมโยงกับการประมวลผลเฉพาะที่ที่รวดเร็วและสั่นไหวซึ่งขับเคลื่อนโดยเยื่อหุ้มสมองรับความรู้สึก การประมวลผลนี้มีประสิทธิภาพมากขึ้นในการจดจำเสียงที่สร้างลำดับดนตรีที่แปลกใหม่เทียบกับที่จดจำ ในทางกลับกัน การประมวลผลลำดับชั่วขณะทั่วโลกทั้งหมดสัมพันธ์กับการประมวลผลทั่วโลกที่ช้าและพร้อมกัน ซึ่งเกี่ยวข้องกับเครือข่ายที่กว้างขวางของพื้นที่สมองลำดับสูงที่ทำงานตามลำดับ ในกรณีนี้ การทำงานของสมองจะแข็งแกร่งขึ้นอย่างมากสำหรับการจดจำลำดับเหตุการณ์เทียบกับลำดับใหม่
การประมวลผลพร้อมกันแบบคู่นี้เห็นได้ชัดเจนเป็นพิเศษโดยสอดคล้องกับการนำเสนอเสียงสามเสียงสุดท้ายของลำดับ ซึ่งบ่งบอกว่าสมองต้องใช้เสียงอย่างน้อยสองหรือสามเสียงเพื่อเริ่มกระบวนการจดจำ ที่นี่ สมองได้รวบรวมเครือข่ายที่เกี่ยวข้องกับความทรงจำ ความสนใจ การคัดเลือกนักแสดง และการตัดสินใจ พื้นที่สมองดังกล่าว ได้แก่ ฮิปโปแคมปัส (Knierim 2015), cingulate gyrus (Rolls 2019; Pando-Naude et al. 2021; Criscuolo et al. 2022), inferior temporal cortex (Conway 2018), frontal operculum (Indefrey et al. 2001; Behroozmand et อัล. 2015), insula (Uddin 2015) และเยื่อหุ้มสมองส่วนการได้ยินปฐมภูมิและทุติยภูมิ (Elhilali et al. 2004) โดยเฉพาะอย่างยิ่ง กระบวนการทั้งสอง (ทั่วโลกและในระดับท้องถิ่น) เกี่ยวข้องกับบริเวณสมองเดียวกันโดยประมาณ แต่ขึ้นอยู่กับความถี่ที่แตกต่างกันของการตอบสนองของระบบประสาท นอกจากนี้ การประมวลผลเฉพาะที่อาศัยเยื่อหุ้มสมองรับความรู้สึกเป็นหลัก (เช่น เปลือกสมองส่วนการได้ยิน) ในขณะที่การประมวลผลทั่วโลกทำให้มีการคัดเลือกพื้นที่สมองที่มีลำดับสูงกว่า เช่น ซิงกูเลต เยื่อหุ้มสมองขมับส่วนล่าง และฮิปโปแคมปัส
สิ่งที่น่าทึ่งคือ การรู้จำลำดับเวลาของการได้ยินนั้นสัมพันธ์กับเหตุการณ์ที่ค่อยๆ ช้าลงเรื่อยๆ ซึ่งเชื่อมโยงห่วงโซ่ของสมองที่มีลำดับต่ำถึงสูง หลักฐานนี้ ซึ่งสังเกตได้จากย่านความถี่ 0.1–1 เฮิร์ตซ์ อาจบ่งชี้ว่าสมองติดตามและสร้างความเข้าใจที่มีความหมายเกี่ยวกับลำดับชั่วขณะที่กำลังคลี่ออกอย่างต่อเนื่องโดยการสรรหาวิถีทางแบบลำดับชั้นของบริเวณที่ทำงานในเวลาต่อมา ในทางกลับกัน กิจกรรมในย่านความถี่ 2–8 เฮิร์ตซ์แสดงโปรไฟล์เสริม ซึ่งสูงสุดเล็กน้อยหลังจากแต่ละรายการของลำดับเวลา หลักฐานดังกล่าวชี้ให้เห็นว่า แม้ว่าย่านความถี่ 0.1–1 Hz อาจมีส่วนเกี่ยวข้องในการบรรลุความเข้าใจที่ครอบคลุมของลำดับทั้งหมด (การประมวลผลทั่วโลก) แต่ย่านความถี่ 2–8 Hz อาจอธิบายรายละเอียดอย่างเป็นอิสระในรายการเดียว (ในท้องถิ่น กำลังประมวลผล). อย่างไรก็ตาม ผลลัพธ์ของเราไม่สามารถบอกได้อย่างแน่ชัดว่าแถบดังกล่าวแสดงถึงกลไกภายในของสมองหรือเป็นเพียงการกระตุ้นเท่านั้น จำเป็นต้องมีการวิจัยในอนาคตเพื่อตอบคำถามสำคัญนี้
ความแปลกใหม่ของผลลัพธ์ของเราเกี่ยวข้องกับความแรงที่แตกต่างกันของสัญญาณสมองที่สังเกตได้สำหรับคลื่นความถี่ทั้งสองในเงื่อนไขการทดลองของเรา (M และ N) แท้จริงแล้ว แม้ว่าย่านความถี่ 0.1–1 Hz จะให้พลังที่มากกว่าสำหรับลำดับที่จดจำ แต่ย่านความถี่ 2–8 Hz ก็แสดงการตอบสนองที่มากกว่าสำหรับลำดับใหม่ การค้นพบนี้อาจเห็นได้ในแง่ของทฤษฎีการเข้ารหัสเชิงคาดการณ์ (Friston 2012; Vuust et al. 2012; Koelsch et al. 2019) ซึ่งตั้งสมมติฐานว่าสมองอัปเดตแบบจำลองภายในอยู่ตลอดเวลาเพื่อทำนายข้อมูลด้านสิ่งแวดล้อม ในที่นี้ เมื่อสมองรับรู้ถึงลำดับเวลา (เช่น โทนเสียงหมายเลข 2 และ 3 ของลำดับของเรา) สมองอาจคาดการณ์ได้ดีขึ้นถึงสิ่งที่จะเกิดขึ้นซึ่งจดจำไว้ก่อนหน้านี้ รายการที่เสร็จสิ้นลำดับดังกล่าว
ดังนั้นรายการดังกล่าวจะต้องมีการประมวลผลในท้องถิ่นที่ต่ำกว่าดังที่เราสังเกตจากการทดลอง สิ่งที่น่าสนใจ แม้ว่าส่วนใหญ่จะมีการแปลเป็นภาษาท้องถิ่นในคอร์เทกซ์การได้ยินปฐมภูมิ แต่แหล่งกำเนิดประสาทของกิจกรรมย่านความถี่ 2-8 เฮิรตซ์ก็ถูกวางไว้ในบริเวณฮิปโปแคมปัส คอร์เทกซ์การได้ยินทุติยภูมิ อินซูลา และซิงกูเลต ดังที่ได้กล่าวไว้ก่อนหน้านี้ หลักฐานนี้ชี้ให้เห็นว่าบริเวณสมองโดยประมาณเดียวกันนั้นสร้างคลื่นความถี่สองย่านพร้อมกัน โดยมีคุณลักษณะการทำงานที่แตกต่างกันมาก โดยจัดทำดัชนีการประมวลผลลำดับเวลาในระดับท้องถิ่นและระดับโลก ยิ่งไปกว่านั้น เกี่ยวกับการประมวลผลในท้องถิ่น ผลลัพธ์ของเรายังแสดงให้เห็นว่ารายละเอียดของแต่ละเสียงทำให้เกิดอนุกรมเวลาคล้ายเวฟเล็ตโดยมีจุดสูงสุดหลักสามจุด (ส่วนประกอบ) ในที่นี้ การอธิบายรายละเอียดระดับล่างของเสียงโดยองค์ประกอบแรก (เช่น P50 และ N100 (Coles และ Rugg 2008)) มีต้นกำเนิดมาจากเปลือกสมองส่วนการได้ยินปฐมภูมิเป็นหลัก ในทางกลับกัน ส่วนประกอบในเวลาต่อมา เช่น P300 (Coles และ Rugg 2008) ถูกสร้างขึ้นโดยเฉพาะอย่างยิ่งจากพื้นที่ที่มีลำดับสูงกว่า เช่น เยื่อหุ้มสมองส่วนการได้ยินทุติยภูมิ อินซูลา บริเวณฮิปโปแคมปัส และซิงกูเลต์ น่าสังเกตที่ปรากฏการณ์ดังกล่าวปรากฏชัดมากขึ้นภายหลังการเปิดเผยลำดับเวลา โดยเสนอว่าการอธิบายรายละเอียดรายการเดี่ยวๆ อย่างละเอียดมากขึ้นเรื่อยๆ อาจจำเป็นสำหรับสมองในการเข้าใจความหมายของลำดับเวลาทั้งหมด
การศึกษาก่อนหน้านี้หลายงานได้อธิบายการประมวลผลระดับโลกและระดับท้องถิ่นในแง่ของตำแหน่งที่แตกต่างกันของสัญญาณประสาท (เช่น เยื่อหุ้มสมองรับความรู้สึกหลักอยู่ก่อนพื้นที่สมองที่มีลำดับสูงกว่าในการอธิบายรายละเอียดสิ่งเร้าที่เข้ามา (Qiu และ Von Der Heydt 2005) ในทางกลับกัน ใน การศึกษาของเราแสดงให้เห็นว่าบริเวณสมองเดียวกันนั้นดำเนินการ 2 กระบวนการนี้ (ทั่วโลกและท้องถิ่น) ในเวลาเดียวกัน โดยใช้คลื่นความถี่ 2 คลื่นที่เกิดขึ้นพร้อมกัน ซึ่งอาจบ่งบอกถึงการมัลติเพล็กซ์ที่ซับซ้อน ผลลัพธ์เหล่านี้สอดคล้องกับการวิจัยก่อนหน้านี้ซึ่งแสดงให้เห็นกระบวนการสมองที่เกิดขึ้นพร้อมกันของ รายการเดียวกันในการรับรู้ทางการได้ยินและความเข้าใจภาษา (Giraud และ Poeppel 2012)
นอกจากนี้ การศึกษาบางส่วนก่อนหน้านี้ที่ตรวจสอบการประมวลผลการได้ยินและหน่วยความจำสำหรับข้อมูลเสียงรายงานว่าเกิดการตอบสนองช้าคล้ายกับการประมวลผลทั่วโลกที่ช้าของเรา ตัวอย่างเช่น Picton (1978) ได้ให้หลักฐานเกี่ยวกับศักย์ไฟฟ้าในการได้ยินในสมองของมนุษย์เพื่อตอบสนองต่อเสียง เมื่อเร็วๆ นี้ Bidet-Caulet และคณะ (2007) โดยใช้ EEG ในกะโหลกศีรษะ แสดงให้เห็นว่าการเลือกความสนใจต่อข้อมูลเสียงมีความสัมพันธ์กับการตอบสนองที่เกิดขึ้นอย่างต่อเนื่องในบริเวณสมองส่วนการได้ยินทุติยภูมิ ในทำนองเดียวกัน Grimault และคณะ (2014) ศึกษาความจำระยะสั้นทางการได้ยิน รายงานการทำงานของสมองอย่างยั่งยืนในบริเวณหน้าผาก ขมับ และข้างขม่อม เมื่อมีการเก็บรายการการได้ยินหลายรายการไว้ในความทรงจำ จากการค้นพบนี้ Albouy และเพื่อนร่วมงานแสดงการตอบสนองที่ปรากฏขึ้นช้าๆ เมื่อผู้เข้าร่วมถูกขอให้ทำงานด้านความจำโดยใช้การได้ยิน
รายงานเหล่านี้รายงานการตอบสนองของสมองที่ช้าและยั่งยืน โดยเฉพาะเกี่ยวกับการคงอยู่และการควบคุมสิ่งเร้าทางหู (Albouy et al. 2013, 2017)
ในที่สุด การค้นพบของเราเกี่ยวข้องและขยายแนวคิดของสมมติฐานสองกระแสที่รู้จักกันดีของสมอง (Goodale และ Milner 1992; Whitwell et al. 2014) การวางแนวความคิดดังกล่าวเสนอแนวทางหลัก 2 ประการสำหรับการอธิบายข้อมูลภาพและเสียงอย่างละเอียดขั้นสูง ในด้านหนึ่ง กระแสลมหน้าท้องไหลจากบริเวณรับความรู้สึก (เช่น คอร์เทกซ์การมองเห็นและการได้ยิน) ไปยังกลีบขมับด้านใน ซึ่งเป็นลักษณะการประมวลผลที่เกี่ยวข้องกับการจดจำวัตถุเป็นหลัก (Goodale and Milner 1992; Weiller et al. 2021) ในทางกลับกัน กระแสน้ำด้านหลังนำข้อมูลจากเปลือกรับความรู้สึกไปยังกลีบข้างขม่อม เพื่ออธิบายลักษณะเชิงพื้นที่ของสิ่งเร้าอย่างละเอียด (Arbib 2017)
สอดคล้องกับสมมติฐานนี้ ผลลัพธ์ของเราเน้นย้ำบริเวณสมองหลายแห่งของกระแสหน้าท้องที่เกี่ยวข้องในกระบวนการจดจำ เช่น พื้นที่ฮิปโปแคมปัส เพอคิวลัมส่วนหน้า และเยื่อหุ้มสมองขมับส่วนล่าง อย่างไรก็ตาม ผลลัพธ์ของเราได้ขยายความรู้เดิมเกี่ยวกับสมมติฐานแบบสองกระแสเพิ่มเติมโดยให้ข้อสังเกตที่เป็นข้อสรุปที่สำคัญอย่างน้อยสามข้อ (i) การจดจำสมองของลำดับเวลานั้นนำเสนอลักษณะเชิงพื้นที่และกาลเวลาที่เป็นเอกลักษณ์ ซึ่งไม่ได้ใช้ร่วมกับการระบุรายการเดี่ยวหรือรูปแบบซิงโครนัส (ii) นอกเหนือจากบริเวณสมองที่เกี่ยวข้องกับสมมติฐานแบบสองกระแสแล้ว การค้นพบของเรายังแสดงให้เห็นถึงบทบาทพิเศษของ cingulate gyrus เพื่อให้บรรลุการรับรู้ลำดับเวลาของการได้ยิน (iii) ท้ายที่สุด การจดจำลำดับที่เปิดเผยเมื่อเวลาผ่านไปเกี่ยวข้องกับการประมวลผลรายการเดียวกันพร้อมกันแบบคู่ ซึ่งสมองตีความไปพร้อมๆ กันว่าเป็นข้อมูลแต่ละชิ้น (การประมวลผลเฉพาะที่) และส่วนเบื้องต้นของข้อมูลโดยรวมที่ใหญ่กว่า (การประมวลผลทั่วโลก) การศึกษาของเราแสดงให้เห็นว่าการประมวลผลในท้องถิ่นมีความเกี่ยวข้องอย่างมากกับข้อมูลการได้ยินแบบใหม่ ในขณะที่ลำดับดนตรีที่จดจำก่อนหน้านี้ได้รับการยอมรับผ่านการมีส่วนร่วมอย่างมากในการประมวลผลทั่วโลกของสมอง
การวิจัยในอนาคตมีวัตถุประสงค์เพื่อตรวจสอบหัวข้อนี้เพิ่มเติมโดยการศึกษากลไกของสมองที่เป็นรากฐานของการจดจำลำดับเวลาที่ไม่ใช่ดนตรี (เช่น ลำดับของตัวเลข คำ และองค์ประกอบภาพ) นอกจากนี้ บนพื้นฐานของความแตกต่างที่รู้จักกันดีในความสามารถทางปัญญาของคนประเภทต่างๆ (เช่น ผู้สูงวัยและผู้ใหญ่ที่อายุน้อยกว่า (Fernàndez-Rubio, Brattico, et al. 2022a; Fernàndez-Rubio, Olsen, et al. 2022c) นักดนตรีกับ ผู้ที่ไม่ใช่นักดนตรี (Criscuolo et al. 2019; Bonetti, Brattico, Vuust, et al. 2021c) และบุคคลที่มีสุขภาพดีกับผู้ป่วย (Valenzuela และ Sachdev 2006)) การศึกษาในอนาคตควรสำรวจผลกระทบของอายุและสภาวะทางคลินิกต่อกลไกของสมอง การรับรู้ลำดับเวลาที่ซ่อนอยู่
ผลงานของผู้เขียน
แนวความคิด: LB, EB, MLK, PV; วิธีการ: LB, MLK, DP, GDE; ซอฟต์แวร์: ปอนด์; วิเคราะห์: ปอนด์; การสืบสวน: LB, GDO; แหล่งข้อมูล: MLK, PV, EB, LB; การดูแลจัดการข้อมูล: LB; การเขียน—ร่างต้นฉบับ: LB; การเขียน—การทบทวนและการแก้ไข: LB, SEPB, EB, DP, GDE, GDO, PV; การแสดงภาพ: LB, SEPB; การกำกับดูแล: MLK, PV, DP, EB; การบริหารโครงการ: LB, MLK, PV, EB; การเข้าซื้อกิจการเงินทุน: LB, PV, MLK

รับทราบ
เราขอขอบคุณ Riccardo Proietti, Giulio Carraturo, Mick Holt และ Holger Friis สำหรับความช่วยเหลือในการทดลองทางประสาทวิทยาศาสตร์ นอกจากนี้เรายังขอขอบคุณนักจิตวิทยา Tina Birgitte Wisbech Carstensen สำหรับความช่วยเหลือในการบริหารการทดสอบทางจิตวิทยาและแบบสอบถาม และ Francesco Carlomagno สำหรับความช่วยเหลือในการจัดแสดงบทความ
วัสดุเสริม
สามารถหาวัสดุเสริมได้ที่ Cerebral Cortex ออนไลน์
เงินทุน
ศูนย์ดนตรีในสมอง (MIB) ได้รับทุนจากมูลนิธิวิจัยแห่งชาติเดนมาร์ก (โครงการหมายเลข DNRF117)
LB ได้รับการสนับสนุนจาก Carlsberg Foundation (CF20-0239), Lundbeck Foundation (Talent Prize 2022), Center for Music in the Brain, Linacre College of the University of Oxford และ Society for Education and Music Psychology (SEMPRE's 50th Anniversary โครงการมอบรางวัล)
MLK ได้รับการสนับสนุนจากศูนย์ดนตรีในสมองและศูนย์ Eudaimonia และ Human Flourishing ซึ่งได้รับทุนสนับสนุนจากมูลนิธิ Pettit และ Carlsberg
GD ได้รับการสนับสนุนจากโครงการวิจัยสเปน PSI2016- 75688-P (AEI/FEDER, EU) โดยโครงการวิจัยและนวัตกรรม Horizon 2020 ของสหภาพยุโรปภายใต้ข้อตกลงการให้ทุนหมายเลข 1 720270 (HBP SGA1) และหมายเลข 785907 (HBP SGA2) และโดยโปรแกรม Catalan AGAUR 2017 SGR 1545
นอกจากนี้ เราขอขอบคุณมหาวิทยาลัย Bologna สำหรับการสนับสนุนทางเศรษฐกิจที่มอบให้กับผู้เขียน Giulia Donati และผู้ช่วยนักศึกษา Riccardo Proietti และ Giulio Carraturo และหมวดภาษาอิตาลีของ Mensa: The International High IQ Society สำหรับการสนับสนุนทางเศรษฐกิจที่มอบให้กับ Francesco Carlomagno
อ้างอิง
อัล-ซูบี เอ็มบี, อัล อาร์เอ็ม แนวทางที่มีประสิทธิภาพในการคำนวณค่าสัมประสิทธิ์ภาพเงา เจคอมพิวเตอร์วิทยา 2008:4(3):252–255.
2.อัลบูย พี, แมตต์เอาท์ เจ, บูเอต์ อาร์, มาบี อี, ซานเชซ จี, อเกรา พีอี, ดาลิโกลต์ เอส, เดลปูเอค ซี, แบร์ทรานด์ โอ, คาคลิน เอ และคณะ การรับรู้ระดับเสียงและความจำบกพร่องในภาวะอะมูเซียแต่กำเนิด: การขาดดุลเริ่มต้นในเยื่อหุ้มสมองการได้ยิน สมอง. 2013:136(5):1639–1661.
3.อัลบูอี พี,ไวส์ เอ, ไบเลต์ เอส, ซาตอร์เร อาร์เจ การขึ้นรถไฟแบบเลือกสรรของการสั่นของทีต้าในกระแสน้ำด้านหลังช่วยเพิ่มประสิทธิภาพการทำงานของหน่วยความจำทางการได้ยินอย่างมีสาเหตุ เซลล์ประสาท 2017:94(1):193–206.
4. อาร์บิบ MA. Dorsal และ ventr1982al ถ่ายทอดวิวัฒนาการของสมองที่พร้อมใช้ภาษา: เชื่อมโยงภาษาเข้ากับโลก เจ ภาษาศาสตร์ประสาท. 2017:43:228–253.
5. เบห์รูซมันด์ อาร์, ชีเบค อาร์, แฮนเซน DR, โอยา เอช, โรบิน DA, ฮาวเวิร์ด แมสซาชูเซตส์, กรีนลี เจดีดับบลิว เครือข่ายประสาทสัมผัสและมอเตอร์ที่เกี่ยวข้องกับการผลิตเสียงพูดและการควบคุมมอเตอร์: การศึกษา fMRI นิวโรอิมเมจ 2015:109:418–428.
6. เบอร์ดีเยวา ทีเค, โอลสัน ซีอาร์. จัดอันดับสัญญาณในพื้นที่สี่ส่วนของเปลือกสมองส่วนหน้าของลิงแสมในระหว่างการเลือกการกระทำและวัตถุตามลำดับ เจ นิวโรฟิออล. 2010:104(1):141–159.
7. Bidet-Caulet A, Fischer C, Besle J, Aguera PE, Giard MH, Bertrand, O. ผลของความสนใจแบบเลือกสรรต่อการเป็นตัวแทนทางไฟฟ้าฟิสิกส์ของเสียงที่เกิดขึ้นพร้อมกันในเยื่อหุ้มสมองการได้ยินของมนุษย์ เจ นิวโรสซี. 2007:27(35):9252–9261.
8.โบเน็ตติ แอล, บรัตติโก อี, คาร์โลมักโน่ เอฟ, กาบราล เจ, สตีฟเนอร์ เอ, เดโค จี, วายโบรว์ พีซี, เพียร์ซ เอ็ม, ปานตาซิส ดี, คริงเกลบัค เอ็มแอล พลวัตของสมอง Spatiotemporal ระหว่างการรับรู้ดนตรีของโยฮันน์ เซบาสเตียน บาค bioRxiv. 2020:27.35:9252–9261.
9.โบเน็ตติ แอล, บรัตติโก เอ, คาร์โลมักโน่ เอฟ, โดนาติ จี, กาบราล เจ, เฮามันน์ เอ็นที, เดโค จี, วูสท์ พี, คริงเกลบัค เมลา การเข้ารหัสเสียงดนตรีอย่างรวดเร็วที่พบในการเชื่อมต่อของสมองทั้งหมด นิวโรอิมเมจ 2021ก:245:118735.
10. Bonetti L, Brattico E, Vuust P, Kliuchko M, Saarikallio S. ความฉลาดและดนตรี: ความฉลาดทางสติปัญญาที่ต่ำกว่าเกี่ยวข้องกับการใช้ดนตรีที่สูงขึ้นเพื่อสัมผัสประสบการณ์ความรู้สึกที่รุนแรง เอ็มไพร์สตั๊ดอาร์ต 2021c:39(2):194–215.
For more information:1950477648nn@gmail.com