Anterior Basolateral Amygdala Neurons ประกอบด้วย Remote Fear Memory Engram ตอนที่ 1
Dec 22, 2023
การแนะนำ:
สัญญาณด้านสิ่งแวดล้อมที่คุกคามมักจะสร้างความทรงจำที่น่าหวาดกลัว แต่วิธีการสร้างและจัดเก็บสิ่งเหล่านี้ยังคงมีการสอบสวนอย่างแข็งขัน
ความทรงจำความกลัวเป็นรูปแบบหนึ่งของความทรงจำในสมองของเรา มันเป็นความทรงจำรูปแบบพิเศษที่มักทำให้เรารู้สึกกลัว หวาดกลัว และวิตกกังวล แต่ความสัมพันธ์ระหว่างความทรงจำแห่งความกลัวกับความทรงจำของเรานั้นซับซ้อนมาก
ประการแรก ความทรงจำเกี่ยวกับความกลัวไม่เกี่ยวอะไรกับความทรงจำระยะสั้นของเรา ความทรงจำเกี่ยวกับความกลัวส่วนใหญ่จะถูกเก็บไว้ในคลังความทรงจำระยะยาวของเรา ด้วยเหตุนี้บางครั้งเราจึงมีความทรงจำเมื่อนานมาแล้วลอยอยู่ในจิตใจของเรา
ประการที่สอง ความทรงจำเกี่ยวกับความกลัวไม่จำเป็นต้องส่งผลต่อความทรงจำของเราเสมอไป แม้ว่าสิ่งนี้อาจทำให้ความสนใจและอารมณ์ของเราเปลี่ยนไป แต่ไม่มีหลักฐานว่าจะทำให้สูญเสียความทรงจำ หลายๆ คนยังสามารถแสดงความทรงจำที่แข็งแกร่งได้หลังจากประสบกับเรื่องแย่ๆ บางอย่าง
สุดท้ายนี้ เราไม่ควรปล่อยให้ความทรงจำอันน่าหวาดกลัวกลายเป็นหัวข้อในชีวิตของเรา เราจะต้องดำเนินการเชิงบวกเพื่อประมวลผลความทรงจำเหล่านี้และก้าวไปในทิศทางที่เป็นบวกมากขึ้น ซึ่งรวมถึงการรับการบำบัด การเข้าร่วมสังคม การออกกำลังกายร่างกายและสมอง และการรักษาทัศนคติเชิงบวกและสุขภาพจิต
ดังนั้น แม้ว่าความทรงจำที่น่ากลัวอาจทำให้เราเครียดและไม่สบายใจ แต่เราก็ต้องเชื่อมั่นในความสามารถและความพยายามของเรา เราสามารถเผชิญกับความทรงจำที่น่ากลัวเหล่านี้ เสริมสร้างความทรงจำของเรา เติบโต และกลายเป็นคนที่ดีขึ้นและมีความมั่นใจมากขึ้น จะเห็นได้ว่าเราต้องปรับปรุงความจำของเรา Cistanche Deserticola สามารถปรับปรุงความจำได้อย่างมาก เนื่องจาก Cistanche Deserticola เป็นยาแผนโบราณของจีนที่มีลักษณะพิเศษมากมาย หนึ่งในนั้นคือการปรับปรุงความจำ ประสิทธิภาพของเนื้อสับมาจากส่วนผสมออกฤทธิ์หลายชนิดในเนื้อสับ เช่น กรด โพลีแซ็กคาไรด์ ฟลาโวนอยด์ ฯลฯ ส่วนผสมเหล่านี้สามารถส่งเสริมสุขภาพสมองได้หลายวิธี
คลิกรู้จักหน่วยความจำระยะสั้นว่าจะปรับปรุงอย่างไร
การนึกถึงความทรงจำเกี่ยวกับความกลัวเมื่อเร็วๆ นี้ คิดว่าสะท้อนถึงการกระตุ้นการทำงานของเซลล์ประสาทในบริเวณต่างๆ ของสมอง ซึ่งทำงานในระหว่างการสร้างความจำ ซึ่งบ่งชี้ว่ากลุ่มเซลล์ประสาทที่มีการกระจายตามหลักกายวิภาคและเชื่อมต่อถึงกันประกอบด้วยเอ็นแกรมความทรงจำแห่งความกลัว
อย่างไรก็ตาม ขอบเขตที่เอ็นแกรมการเปิดใช้งานซ้ำทางกายวิภาคยังคงมีอยู่ในระหว่างการเรียกคืนความทรงจำเกี่ยวกับความกลัวในระยะยาว ยังคงไม่ได้รับการสำรวจเป็นส่วนใหญ่ เราตั้งสมมติฐานว่าเซลล์ประสาทหลักในต่อมทอนซิลส่วนหน้า (BLA) ซึ่งเข้ารหัสเวเลนซ์เชิงลบ จะถูกกระตุ้นอีกครั้งอย่างรุนแรงในระหว่างการระลึกถึงความทรงจำจากความกลัวระยะไกล เพื่อขับเคลื่อนพฤติกรรมความกลัว
วิธีการ:
การใช้ลูกหลานที่โตเต็มวัยของหนู TRAP2 และ Ai14 การแสดงออกของ tdTomato แบบถาวรนั้นถูกใช้กับเซลล์ประสาท aBLA "TRAP" ที่ได้รับการกระตุ้น Fos ในระหว่างการปรับสภาพความกลัวตามบริบท (ไฟฟ้าช็อต) หรือการปรับสภาพตามบริบทเท่านั้น (ไม่มีการกระแทก) (n=5/กลุ่ม) . สามสัปดาห์ต่อมา หนูถูกเปิดเผยอีกครั้งกับบริบทเดียวกันสำหรับการเรียกคืนหน่วยความจำระยะไกล จากนั้นจึงเสียสละเพื่อฟอซิมมูโนฮิสโตเคมี
ผลลัพธ์:
TRAPed (tdTomato +), Fos + และกลุ่มเซลล์ประสาทที่เปิดใช้งานใหม่ (มีป้ายกำกับสองครั้ง) มีขนาดใหญ่กว่าด้วยความกลัวมากกว่าหนูที่มีเงื่อนไขตามบริบท โดยมีอนุภูมิภาคกลางและจตุภาคกลาง / หาง dorsomedial กลาง / หางของ aBLA แสดงความหนาแน่นที่ยิ่งใหญ่ที่สุดของทั้งสาม ประชากรทั้งมวล
โดยที่Tomato + ตระการตามีกลูตามาเทอจิคอย่างเด่นชัดในบริบทและกลุ่มกลัว พฤติกรรมการค้างระหว่างการเรียกคืนหน่วยความจำระยะไกลไม่มีความสัมพันธ์กับขนาดของวงดนตรีในทั้งสองกลุ่ม
การอภิปราย:
เราสรุปได้ว่าแม้ว่าโปรแกรมความจำความกลัวที่รวม aBLA จะก่อตัวและยังคงอยู่ในจุดเวลาระยะไกล ความเป็นพลาสติกส่งผลกระทบต่อการตอบสนองทางไฟฟ้าสรีรวิทยาของเซลล์ประสาทเอนแกรม ไม่ใช่ขนาดประชากร เข้ารหัสความทรงจำเกี่ยวกับความกลัว และขับเคลื่อนการแสดงพฤติกรรมของการเรียกคืนความทรงจำที่น่ากลัวในระยะยาว
การแนะนำ
สิ่งเร้าที่ทำให้เกิดความกลัวมักก่อให้เกิดความทรงจำที่เชื่อมโยงที่แข็งแกร่งและยั่งยืน ซึ่งเชื่อมโยงสัญญาณด้านสิ่งแวดล้อมเข้ากับเหตุการณ์ที่คุกคามในชีวิต
การเผชิญหน้ากับภัยคุกคามที่รับรู้ในทำนองเดียวกันครั้งต่อไปจะส่งผลให้เกิดพฤติกรรมการป้องกันที่แข็งแกร่งยิ่งขึ้น ซึ่งสะท้อนถึงความกลัวการเรียกคืนความทรงจำ ข้อผิดพลาดในการประมวลผลที่เกี่ยวข้องกับความกลัวสามารถส่งผลให้เกิดผลลัพธ์ทางจิตเวชเชิงลบ รวมถึงความวิตกกังวลและโรคความเครียดหลังเหตุการณ์สะเทือนใจ (PTSD) (Tovote et al., 2015)
การทำความเข้าใจความซับซ้อนทั้งหมดของกลไกที่อยู่ภายใต้ความทรงจำเกี่ยวกับความกลัวเป็นสิ่งสำคัญในการระบุความผิดปกติของวงจรการทำงานที่ส่งเสริมโรคทางจิตเวชที่เกี่ยวข้องกับความกลัว และแนะนำเป้าหมายการรักษาแบบใหม่เพื่อฟื้นฟูการประมวลผลความกลัวตามปกติ
ในช่วงหลายทศวรรษที่ผ่านมา การวิจัยเกี่ยวกับความทรงจำด้วยความกลัวมุ่งเน้นไปที่การสร้างความจำระยะสั้น การจัดเก็บ และการจดจำเป็นส่วนใหญ่ (Kimand Jung, 2006; Kim and Cho, 2020; Lee et al., 2021)
การศึกษามีส่วนเกี่ยวข้องกับการกระจายอย่างกว้างขวางของเซลล์ประสาทระบบประสาทส่วนกลางที่เชื่อมต่อถึงกันซึ่งรับผิดชอบในการสร้างและจัดเก็บความกลัว - หน่วยความจำ (Ramirez et al., 2013; Liu et al., 2014; Roy et al., 2022) การเปิดใช้งานวงดนตรีเหล่านี้โดยการรับรู้ภัยคุกคามส่งผลให้เกิดการส่งผ่านซินแนปติกที่มีศักยภาพซึ่งเป็นตัวแทนของรอยประทับทางกายภาพถาวรที่รู้จักกันในชื่อ amemory engram (Yuan et al., 2011; Miyawaki และ Mizuseki, 2022)
ความคิดในการเรียกคืนความทรงจำระยะสั้นนั้นสะท้อนถึงการเปิดใช้งานใหม่ของเซลล์ประสาทชุดเดียวกันที่ถูกเปิดใช้งานแต่แรกในระหว่างการก่อตัวของหน่วยความจำ โดยมีหลักฐานที่บ่งชี้ว่าการเปิดใช้งานเพียงบางส่วนของเซลล์ประสาทชุดเดียวก็สามารถทำให้เกิดพฤติกรรมที่เกี่ยวข้องกับความกลัว ซึ่งบ่งชี้ถึงการเรียกคืนความทรงจำ (Roy et al., 2022 ). แม้ว่าวงจรเข้ารหัสที่มีความเสถียรทางอะตอมมิกอลอาจอธิบายความทรงจำเกี่ยวกับความกลัวระยะสั้นได้ แต่ขอบเขตที่พวกมันมีส่วนร่วมในความทรงจำระยะยาวนั้นยังไม่ชัดเจน
แม้ว่าการรวมความทรงจำด้วยความกลัวในระยะยาวนั้นขึ้นอยู่กับการเสริมกำลังความจำระยะสั้นแบบก้าวหน้าหรือประปราย การศึกษาล่าสุดหลายชิ้นชี้ให้เห็นว่าชุดเซลล์ประสาทของความจำระยะสั้นที่มีความกลัวระยะสั้นต้องผ่านการปรับโครงสร้างใหม่โดยขึ้นอยู่กับเวลา ส่งผลให้เกิดการโยกย้ายของหน่วยความจำที่เก็บไว้ไปยังชุดเซลล์ประสาทอื่นภายใน บริเวณสมองเดียวกัน (DeNardo et al., 2019) หรือบริเวณสมองที่แตกต่างกันโดยสิ้นเชิง (Frankland and Bontempi, 2005; Do Monte et al., 2016)
ต่อมทอนซิลด้านข้าง (BLA) เป็นบริเวณสมองส่วนสำคัญของความทรงจำที่น่ากลัว และมีส่วนเกี่ยวข้องในการจำความทรงจำด้วยความกลัวทั้งในระยะหลังและระยะไกล (Maren et al., 1996; Gale et al., 2004; Kitamura et al.,2017; Liu et al. ., 2022)
โดยเฉพาะอย่างยิ่ง รายงานได้อธิบายเอนแกรมหน่วยความจำความกลัวระยะสั้นใน BLA ที่ (1) เปิดใช้งานระหว่างการสร้างความทรงจำ (2) เปิดใช้งานอีกครั้งระหว่างการเรียกคืนความทรงจำ และ (3) สามารถขับเคลื่อนพฤติกรรมที่คล้ายกับความกลัวในบริบทที่ไม่กลัว ( Royet al., 2022; Zaki และคณะ 2022) อย่างไรก็ตาม ขอบเขตที่ชุดเซลล์ประสาท aBLA ที่เปิดใช้งานระหว่างการสร้างหน่วยความจำถูกเปิดใช้งานอีกครั้งในระหว่างการเรียกคืนหน่วยความจำระยะไกลยังคงไม่แน่ชัด
ในการศึกษานี้ เราได้ทดสอบสมมติฐานที่ว่าการเปิดใช้งานชุดหน่วยความจำ BLAFear อีกครั้งนั้นเกิดขึ้นที่จุดเวลาระยะไกล 3 สัปดาห์หลังจากการปรับสภาพความกลัว ที่มีความสำคัญเป็นพิเศษ วงจรในบ้านของ BLA มีส่วนทำให้เกิดพฤติกรรมที่เกลียดชังและการแสวงหารางวัล (Hu, 2016) โดยมีเซลล์ประสาทความจุเชิงลบที่ตอบสนองต่อความกลัวที่แปลเป็นภาษาท้องถิ่นโดยเฉพาะกับ BLA ส่วนหน้า (aBLA) (Goosensand Maren, 2001; Kim et al., 2016, 2017; จาง และคณะ 2020)
โดยมุ่งเน้นไปที่ aBLA เราใช้ TargetedRecombination รุ่นที่สองในหนูดัดแปลงพันธุกรรม (TRAP2) (DeNardo et al., 2019) ซึ่งกิจกรรม Cre-recombinase เชื่อมโยงกับ c-fos องค์ประกอบเพิ่มประสิทธิภาพของโปรโมเตอร์ยีนในระยะเริ่มแรกโดยวิธี Cre ที่ได้รับการปรับปรุง - เอสโตรเจนรีเซพเตอร์ (ER) คอมเพล็กซ์ เซลล์ประสาทที่แสดงออกถึงความซับซ้อนนี้สามารถเกิดการรวมตัวกันของ Cre ซ้ำได้อย่างต่อเนื่อง กล่าวคือ สามารถ "ถูกดักจับ" ได้ โดยการบริหารงานของ ER agonisttamoxifen หรือ 4-hydroxytamoxifen (OHT) แบบอะนาล็อกที่ออกฤทธิ์สั้นกว่า ทำให้สามารถแสดงออกอย่างต่อเนื่องของ Cre - โมเลกุลนักข่าวเอฟเฟกต์ขึ้นอยู่กับ
ที่นี่เราข้ามหนู TRAP2 และสายนักข่าว tdTomato ที่ขึ้นอยู่กับ Cre Ai14 (Madisen et al., 2010) และหาปริมาณขอบเขตที่เซลล์ประสาท aBLA TRAPed (tdTomatopositive) ในระหว่างการปรับสภาพความกลัวตามบริบทถูกเปิดใช้งานอีกครั้ง (แสดงโปรตีน Fos immunoreactive โปรตีน) ในระหว่างเรียกคืนหน่วยความจำระยะไกล 3 สัปดาห์ต่อมา
เช่นเดียวกับความทรงจำเกี่ยวกับความกลัวระยะสั้น การค้นพบของเราสนับสนุนการมีอยู่ของความทรงจำเกี่ยวกับความกลัวกลูตามาเทอจิคในระยะยาว กลุ่มเซลล์ประสาทใน aBLA
อย่างไรก็ตาม ขนาดของเซลล์ประสาท BLA ทั้งมวล ไม่ว่าจะเปิดใช้งานระหว่างการปรับสภาพหรือการเรียกคืนหน่วยความจำระยะไกล หรือทั้งสองอย่าง ไม่มีความสัมพันธ์กับพฤติกรรมความกลัว ซึ่งบ่งชี้ว่าธรรมชาติของการเรียนรู้ด้วยความกลัวมีความเป็นพลาสติกและผลกระทบในที่สุดต่อความทรงจำจากความกลัวระยะไกล การเรียกคืนการตอบสนองทางไฟฟ้าสรีรวิทยาของเซลล์ประสาททั้งมวล ไม่ใช่ขนาดของประชากรทั้งมวล โดยหลักแล้วจะขับเคลื่อนพฤติกรรมความกลัวจากระยะไกล

วัสดุและวิธีการ
การอนุมัติทางจริยธรรม
ขั้นตอนการทดลองได้รับการอนุมัติโดยคณะกรรมการการดูแลและการใช้สัตว์ประจำสถาบันของมหาวิทยาลัยเท็กซัส เฮลธ์ ซานอันโตนิโอ และสอดคล้องกับแนวทางสภาวิจัยแห่งชาติสำหรับการดูแลและการใช้สัตว์ทดลอง
สัตว์
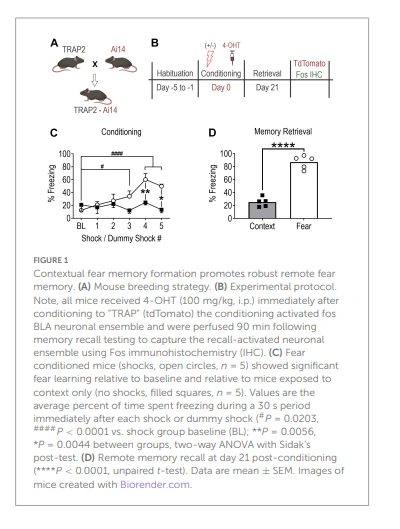
คู่การผสมพันธุ์ของหนู Homozygous Fos2A−iCreER/2A−iCreER knockin (TRAP2, #030323) และ R26Ai14/+ (Ai14, #007914) หนู (Jackson Laboratories) ถูกผสมข้ามเพื่อผลิตลูกหลาน TRAP2 ที่เป็น hemizygousTRAP2:Ai14 ตัวผู้ (รูปที่ 1A) หลังหย่านม หนูจะถูกจัดกลุ่มและเก็บไว้ในกรงพลาสติก (29 × 18 × 13 ซม.) ที่มีผ้าปูที่นอนสำหรับสัตว์ฟันแทะ (Sani-chips; Harlan Teklad, Madison, WI, USA) ห้องทดลองควบคุมอุณหภูมิ (24°C) ด้วยอุณหภูมิ 14°C :10 รอบสว่าง-มืด (เปิดเวลา 06.00 น.) มีอาหารและน้ำให้อย่างไม่จำกัด การทดลองเริ่มขึ้นเมื่อหนูอายุครบ 3 เดือน
ความเคยชินทางพฤติกรรม
เช่นเดียวกับในการศึกษาที่เผยแพร่ก่อนหน้านี้ (DeNardo et al., 2019) หนูได้รับการฝึกนิสัยให้คุ้นเคยเป็นเวลาห้าวันติดต่อกันทันทีก่อนที่จะปรับสภาพความกลัวตามบริบทเพื่อลดการชักนำ cfos ให้เหลือน้อยที่สุดเพื่อตอบสนองต่อเงื่อนไขการทดลองที่ไม่ได้รับการตรวจสอบต่ำเกินไป (เช่น การจัดการ การสำรวจบริบทใหม่ ฯลฯ ) รูปที่ 1B)
แต่ละเซสชั่นการทำให้คุ้นเคยในแต่ละวันใช้เวลา 3 นาที และประกอบด้วยการสัมผัสกับห้องปรับสภาพ (HabitestModular System, Coulbourn Instruments) สัญญาณประสาทสัมผัสห้องประกอบด้วย (1) เอทานอล 70% (สัญญาณดมกลิ่น), (2) พื้นตารางโลหะ (คิวสัมผัส), (3) พื้นหลังที่มีลวดลาย (สัญญาณภาพ) และ (4) แสงที่มองเห็นได้ (สัญญาณภาพ)
นอกจากนี้ หนูทุกตัวจะถูกจับด้วยมือเป็นเวลาหนึ่งนาทีก่อนที่จะถูกนำไปวางในห้องปรับอากาศ และถูก "ข่วน" อย่างอ่อนโยนเป็นเวลา 10 วินาทีเมื่อออกจากห้อง เซสชันความคุ้นเคยได้รับการออกแบบเพื่อเลียนแบบการจัดการที่หนูจะได้รับในวันที่ทำการปรับสภาพ ยกเว้นว่าไม่ได้ทำการฉีดเข้าช่องท้อง (IP)
การปรับสภาพความกลัวตามบริบท
ต่อไปหนูจะถูกสุ่มให้อยู่ในกลุ่มที่มีเงื่อนไขด้วยความกลัว (ช็อก) และมีเงื่อนไขตามบริบท (ไม่มีการช็อก/ตามบริบทเท่านั้น) เงื่อนไขเริ่มต้นในวันที่ 0 และประกอบด้วยหนูที่ถูกวางไว้ในห้องปรับอากาศและได้รับอนุญาตให้สำรวจเป็นเวลา 2 นาที ตลอด 4 นาทีต่อมา หนูที่มีเงื่อนไขด้วยความกลัวได้รับการกระแทกสูง 5 ฟุตเป็นระยะเวลา 1 วินาทีและความเข้ม 0.75 mA
แรงกระแทกถูกส่งในช่วงเวลาที่หนูไม่สามารถคาดเดาได้ แต่ก็มีความสม่ำเสมอระหว่างหนูทั้งสอง หนูที่มีเงื่อนไขตามบริบทได้รับโปรโตคอลที่เหมือนกัน ยกเว้นการกระแทกที่เท้า (รูปที่ 1C) เมื่อยุติงาน หนูแต่ละตัวได้รับการฉีด 4-ไฮดรอกซีทามอกซิเฟน (4-OHT, 100 มก./กก., IP) ละลายในอัตราส่วน 4:1 ของดอกทานตะวันและน้ำมันละหุ่งที่เตรียมตามที่อธิบายไว้ก่อนหน้านี้ (DeNardo และคณะ, 2562)
จากนั้นหนูจะถูกส่งไปยังกรงที่บ้าน โดยปล่อยให้พวกมันไม่ถูกรบกวนในห้องที่อยู่ติดกับห้องพฤติกรรมเป็นเวลาอย่างน้อย 72 ชั่วโมงก่อนที่จะกลับมาอยู่อาศัยตามปกติ
สามสัปดาห์หลังจากการปรับสภาพความกลัว (วันที่ 21) หนูเข้ารับการทดสอบการเรียกคืนความจำแบบระยะไกล (รูปที่ 1D) ซึ่งประกอบด้วยการสัมผัสซ้ำไปยังห้องทดสอบพร้อมสัญญาณประสาทสัมผัสที่เหมือนกันกับที่มีอยู่ในระหว่างการปรับสภาพ หนูได้รับอนุญาตให้สำรวจห้องเป็นเวลา 5 นาทีในระหว่างที่มีคะแนนพฤติกรรมความกลัว (การแข็งตัวของท่าทาง) โดยใช้ซอฟต์แวร์ติดตามวิดีโอ FreezeFrame 4 (ActiMetrics, Wilmette IL, USA)
การตรึงสมองและมิญชวิทยา
เก้าสิบนาทีหลังจากการทดสอบการเรียกคืนหน่วยความจำ หนูได้รับการดมยาสลบอย่างล้ำลึกด้วยไอโซฟลูเรน (5% ในออกซิเจน) และจากนั้นได้รับการไหลเวียนทั่วหัวใจด้วยน้ำเกลือไอโซโทนิกเฮพารินไนซ์ (100 ยูนิต/มิลลิลิตร) 30 มิลลิลิตร ตามด้วย 100 มิลลิลิตรของ 4% พาราฟอร์มัลดีไฮด์ (PFA )ในบัฟเฟอร์ฟอสเฟต 0.1 โมลาร์
สมองถูกเอาออก โพสต์ตรึงใน PFA 4% เป็นเวลา 6 ชั่วโมงที่อุณหภูมิห้อง (∼22°C) และไครโอโพรเทคดิน 30% ซูโครส-0.01 M ฟอสเฟตบัฟเฟอร์น้ำเกลือ (PBS) เป็นเวลาอย่างน้อย 2 วัน
จากนั้น สมองจะถูกหั่นเป็นส่วนโคโรนาหนา 30 µm บนไมโครโตมแช่แข็ง (Leica Microsystems, Wetzlar, เยอรมนี) และส่วนที่มี aBLA (Paxinos และ Franklin, 2019) ถูกเก็บไว้ในโพลีไวนิลไพโรลิโดน (PVP) ด้วยความเย็นจัดที่อุณหภูมิ -20°C
อิมมูโนวิทยา
การฉีดวัคซีนดำเนินการตามที่อธิบายไว้ก่อนหน้า (Mitchell et al., 2018; Maruyama et al., 2019)
โดยสรุป ส่วนต่างๆ ถูกล้างใน PBS เพื่อกำจัด PVP ด้วยความเย็นจัดและบ่มเป็นเวลา 30 นาทีใน PBS ที่มีโซเดียม โบโรไฮไดรด์ (0.5%) เพื่อกำจัดอัลดีไฮด์แบบเรืองแสงอัตโนมัติที่สร้างขึ้นระหว่างการตรึง หลังจากการล้าง PBS เพิ่มเติม ส่วนต่าง ๆ จะถูกบ่มในบัฟเฟอร์การปิดกั้น (ซีรั่มแพะ 3%, 0.05% Triton-X-100 ใน PBS) เป็นเวลา 2 ชั่วโมงที่ ∼22°C ตามด้วยการบ่มที่ 4°C ในบัฟเฟอร์การปิดกั้นที่มี apolyclonal rabbit c -Fos แอนติบอดีปฐมภูมิ (Ab) เป็นเวลา 72 ชั่วโมง (1:1,500, ระบบซินแนปติก #226 003) หรือโมโนโคลนอลเมาส์ CaMKII primaryAb เป็นเวลา 24 ชั่วโมง (1:500, เอนโซไลฟ์ไซแอนซ์, #ADI-KAM-CA002)
หลังจากการล้างเพิ่มเติม ส่วน Fos และ CaMKII จะถูกบ่มแยกกันเป็นเวลา 2 ชั่วโมงที่ ∼ 22 ◦ C ใน Ab รองที่ต่อต้านกระต่าย biotinylated แพะ (1:25 0 EMD มิลลิพอร์ # AP132B) ตามด้วยการล้างแบบอนุกรมใน 0 05 M น้ำเกลือทริสบัฟเฟอร์ (TBS) และ 0.1 โซเดียมอะซิเตต จากนั้นสัมผัสกับสเตรปตะวิดิน-อเล็กซา ฟลูออร์ 488(1:250, Invitrogen #S11223) เป็นเวลา 1 ชั่วโมงในสารละลายบล็อกที่ใช้ TBS
สุดท้าย ส่วนต่างๆ ถูกล้างในบัฟเฟอร์ Tris และติดตั้งบนสไลด์ด้วย Fluoromount-G (Invitrogen, #00-4958-02)
การสร้างภาพและการวิเคราะห์
หลอดโฟโตมัลติพลายเออร์ A {{0}} บิตที่เชื่อมต่อกับกล้องจุลทรรศน์คอนโฟคอลสแกนเลเซอร์ Zeiss LSM710 พร้อมด้วยเส้นเลเซอร์ที่เหมาะสม ถูกนำมาใช้เพื่อจับภาพ aBLA โดยใช้วัตถุประสงค์ 20 × (NA 0.8) และขนาดรูเข็มของหัวสแกนที่ 47.5 ไมโครเมตร สำหรับแต่ละภาพ ซอฟต์แวร์ ImageJ (NIH, Bethesda, MD) ถูกใช้เพื่อสร้างแผนที่พิกเซลแยกของ tdTomato (เช่น TRAPed, สีแดง) และ Alexa-488(Fos, สีเขียว) การเรืองแสง
ความเข้มของพิกเซลและการตรวจจับความยาวคลื่นซ้อนทับสำหรับการติดฉลากคู่ถูกกำหนดโดยการเปรียบเทียบส่วนเนื้อเยื่อที่ประมวลผลโดยมีและไม่มี Ab หลักของ Fo ที่อธิบายไว้ก่อนหน้านี้ (Mitchell et al., 2018; Maruyama et al., 2019) ข้อมูลการนับเซลล์และการแปลร่วมได้รับโดยใช้ ปลั๊กอิน ImageJ กึ่งอัตโนมัติเหล่านี้ EzColocalization (Stauffer et al.,2018)
รูปภาพของ aBLA ถูกแบ่งออกเป็นสามภูมิภาคย่อยของ rostro-caudal ที่มีขนาดใกล้เคียงกัน โดยแต่ละภูมิภาคย่อยถูกกำหนดโดยช่วงเฉพาะของพิกัด stereotaxic ของ rostral-caudal ที่สัมพันธ์กับ tobregma: rostral, −0.8 ถึง −1.1 มม.; กลาง, −1.2 ถึง −1.5 มม.; และหาง, −1.6 ถึง −1.9 มม. (Paxinos และ Franklin, 2019) ผู้จัดการภูมิภาคที่น่าสนใจ (ROI) ใน ImageJ ถูกนำมาใช้เพื่อแบ่ง aBLA ไปตามจตุภาคด้านหลัง - หน้าท้องและตรงกลาง - ด้านข้างโดยสัมพันธ์กับปริมณฑล เทมเพลตนี้ถูกนำไปใช้กับรูปภาพทั้งหมดภายในภูมิภาคย่อย rostral-caudal ที่ระบุในภายหลัง
การแบ่งเขต aBLAperimeter ใช้กับปลั๊กอิน ImageJ EzColocalization เพื่อสร้างแผนเชิงพื้นที่ 2- D ของจำนวนเซลล์ประสาททั้งหมดในแต่ละภาพ แปลงเชิงพื้นที่ภายในภูมิภาคย่อย rostral, กลางและหางถูกซ้อนทับแยกจากกัน ซึ่งส่งผลให้เกิดความกลัว 10 แผน และแผนบริบท 10 รายการสำหรับอนุภูมิภาคโรสตรัล ความกลัว 10 รายการ และแผนบริบท 13 รายการสำหรับอนุภูมิภาคตอนกลาง และแผนความกลัว 12 รายการ และแผนบริบท 13 รายการสำหรับอนุภูมิภาคส่วนหาง
หากต้องการแก้ไขพล็อตรูปภาพของภูมิภาคย่อยในกลุ่มบริบทให้มีจำนวนมากขึ้น ปัจจัยการแก้ไขคือ 1.0(10/10), 0.77 (10/13) และ 0.92 (12/13) ถูกนำไปใช้ตามลำดับกับแผนย่อยบริเวณโรสทรัล ตรงกลาง และหางของกลุ่มบริบท เพื่อหลีกเลี่ยงไม่ให้เอนเอียงการกระจายภูมิประเทศของการนับในข้อมูลบริบท จึงใช้ตัวสร้างตัวเลขสุ่มใน MS Excel เพื่อระบุจำนวนเฉพาะที่จะแยกออกจากแต่ละภูมิภาคย่อย aBLA
ต่อไป เราจะแบ่งภูมิภาคย่อยของ aBLA ออกเป็นส่วนๆ ที่กำหนด 1–4 (ดูรูปที่ 2D) ในการทำเช่นนั้น พิกัดจุดตัด (0,0) ถูกกำหนดใน MS-Excel เป็นจุดในระนาบ 2- ซึ่งพื้นที่ของแต่ละควอแดรนท์มีค่าประมาณหนึ่งในสี่โดยประมาณ ของพื้นที่ทั้งหมดของแต่ละอนุภูมิภาค rostral-caudal แกนควอดแดรนท์และพิกัด xy ของทุกการนับถูกกำหนดและหมุน 30° ตามเข็มนาฬิกา ดังนั้นจึงจัดแนวให้ตรงกับแกนทางกายวิภาคของ aBLA
เพื่อพิจารณาความแปรผันเล็กน้อยในขนาดของภูมิภาคย่อยและควอแดรนท์ ข้อมูลการนับจะถูกทำให้เป็นมาตรฐานในพื้นที่ผิว (จำนวน/มม.2) เพื่อให้ค่าที่รายงานแสดงถึงความหนาแน่นของการนับต่อภูมิภาคย่อยหรือควอแดรนท์
เพื่อประเมินฟีโนไทป์ที่ถูกกระตุ้นของเซลล์ประสาทที่จับโดยระบบ TRAP2 ของเรา การแปลร่วมของการปรับสภาพ -TRAPed tdTomatoexpression กับโปรตีนไคเนส II ที่ขึ้นกับแคลเซียม - คัลโมดูลิน (CaMKII) ซึ่งเป็นเครื่องหมายที่จัดตั้งขึ้นของเซลล์ประสาทกลูตามาเทอจิค (McDonald et al., 2002) ถูกหาปริมาณจาก รูปภาพอย่างน้อยสามส่วน aBLA ต่อเมาส์โดยใช้ปลั๊กอินตัวนับเซลล์ ImageJ
สถิติ
การทดสอบทางสถิติดำเนินการด้วยซอฟต์แวร์ Prism 9.5.1 (GraphPad, San Diego, CA, USA) และรวมการทดสอบสำหรับการกระจายแบบปกติของชุดข้อมูลทั้งหมดโดยใช้การทดสอบ Shapiro-Wilk การเปรียบเทียบกลุ่มสำหรับข้อมูลที่ต่อเนื่องเกิดขึ้นกับนักเรียนที่ไม่จับคู่แบบสองด้าน การทดสอบทีหรือโดยการวิเคราะห์ความแปรปรวนแบบสองหรือสามทาง ตามด้วยการทดสอบการเปรียบเทียบพหุคูณของ Sidak และ Tukey ตามลำดับ สำหรับการเปรียบเทียบแบบคู่หลังจากการโต้ตอบ ANOVA ที่มีนัยสำคัญ
ทำการวิเคราะห์สหสัมพันธ์ภายในกลุ่มเพื่อกำหนดค่าสัมประสิทธิ์ r ของเพียร์สันและค่า P ที่สอดคล้องกัน เปรียบเทียบความสัมพันธ์ระหว่างกลุ่มโดยใช้การแปลง Fisher'sZ (ตารางเสริม 1) ข้อมูลกลุ่มแสดงเป็นค่าเฉลี่ย ± SEM กำหนดนัยสำคัญทางสถิติที่ P < 0.05
ผลลัพธ์
การปรับสภาพความกลัวจะกระตุ้นให้เกิดการเข้ารหัสหน่วยความจำระยะไกล
เพื่อกำหนดขอบเขตที่เซลล์ประสาท aBLA ที่ถูกกระตุ้นระหว่างการสร้างความทรงจำด้วยความกลัวถูกกระตุ้นอีกครั้งในระหว่างการเรียกคืนความทรงจำระยะไกล หนูจะได้รับความกลัว (n=5) หรือการปรับสภาพบริบท (n=5) ตามด้วยการฉีด 4-OHT (รูปที่ 1A–C)
การตรวจสอบการก่อตัวของความกลัว (เช่น การเรียนรู้ด้วยความกลัว) ปฏิสัมพันธ์ที่มีนัยสำคัญของการรักษา (การช็อกเทียบกับการไม่ช็อก) และถังเวลา (ช่วงเวลา 30 วินาทีหลังจากการช็อกแต่ละครั้ง) บนพฤติกรรมการเยือกแข็งถูกสังเกต [two-wayANOVA, F(5, 40)=6.733, P=0.0001] หนูที่มีอาการกลัวแสดงเวลาเยือกแข็งเพิ่มขึ้นสัมพันธ์กับการตรวจวัดพื้นฐานหลังจากการช็อก 3(275 ± 68% ของ BL, P=0.0203), 4 (486 ± 76% ของ BL, P < 0.0001) และ 5 (402 ± 26 % ของ BL, P < 0.0001) และสัมพันธ์กับหนูที่มีเงื่อนไขตามบริบทหลังจากการช็อก 4 (251 ± 38% ของบริบท, p < 0.0001) และ 5 (375 ± 25% ของบริบท, p < 0.0001)
ตามที่คาดไว้ การสัมผัสห้องปรับสภาพอีกครั้งเพื่อเรียกคืนหน่วยความจำระยะไกลในวันที่ 21 หลังการปรับสภาพพบว่าหนูที่มีภาวะกลัวแสดงเวลาที่ใช้ในการแช่แข็งมากขึ้นอย่างมีนัยสำคัญเมื่อเทียบกับการควบคุมบริบท[346 ± 18%, การทดสอบทีแบบไม่มีคู่, t(8) {{7} }.16, P < 0.0001] (รูปที่ 1D)
โดยรวมแล้ว ข้อมูลในรูปที่ 1 บ่งชี้ว่าโปรโตคอลการปรับสภาพความกลัวของเราทำให้เกิดการสร้างความทรงจำเกี่ยวกับความกลัวที่แข็งแกร่งและการเรียกคืนความทรงจำจากความกลัวระยะไกล
การเรียนรู้ด้วยความกลัวทำให้เกิด aBLA เฉพาะภูมิภาคที่แข็งแกร่งสำหรับวงดนตรี
การวิเคราะห์จำนวน TRAPed (tdTomato +) เผยให้เห็นประชากร aBLA ที่กระตุ้นด้วย fos ที่มีขนาดใหญ่กว่าอย่างมีนัยสำคัญในสภาวะที่มีความกลัว (110 ± 6.2) มากกว่าหนูที่มีเงื่อนไขตามบริบท (77 ± 3.1) [การทดสอบ t-unpaired, t (8)=4 .782, P=0.0014] (ตารางที่ 1) ตามที่คาดไว้ ∼ 70% ของบริบท - และ ∼ 80% ของเซลล์ประสาทที่ติดอยู่กับความกลัว (n=6 aBLAsections / กลุ่ม) คือ CaMKII + (ตัวเลขเสริม 1A, B) ซึ่งบ่งชี้ว่าพวกเขาเป็นเซลล์ประสาทฉายกลูตามาเทอจิคเป็นหลัก
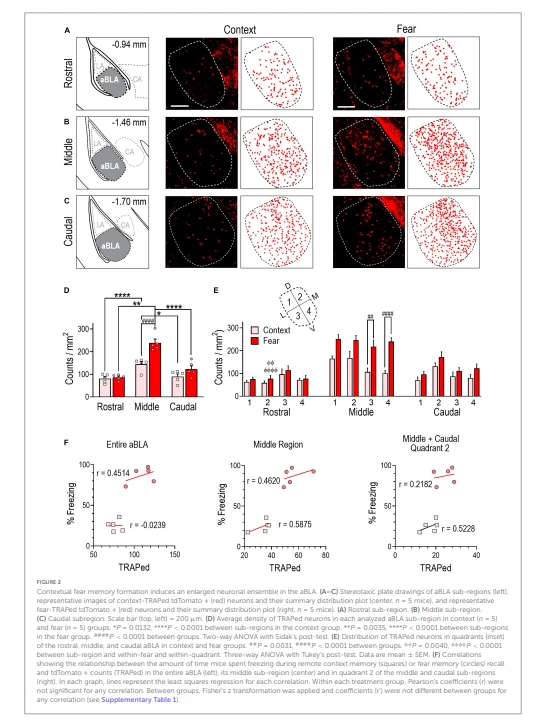
เช่นเดียวกับรายงานก่อนหน้านี้ (Kim et al., 2016) เราแบ่ง aBLA ออกเป็นสามภูมิภาคย่อย rostrocaudal: rostral, กลาง, และหาง (รูปที่ 2A – C) และเปรียบเทียบความหนาแน่นของการนับ TRAPed (จำนวน / mm2) ข้ามภูมิภาคย่อยภายในและ ระหว่างกลุ่มการรักษา (รูปที่ 2D) การวิเคราะห์ความแปรปรวนแบบสองทางเปิดเผยปฏิสัมพันธ์ที่มีนัยสำคัญระหว่างอนุภูมิภาคและการรักษา [F(2,24)=7.7099,P=0.0038]
การวิเคราะห์ภายในกลุ่มเปิดเผยว่าการนับความหนาแน่นของ TRAPed นั้นมากกว่าในกลุ่มย่อย aBLA ระดับกลางด้วยความกลัว (239 ± 9) และกลุ่มบริบท (144 ± 12) ที่สัมพันธ์กับกลุ่ม rostral (ความกลัว: 86 ± 6,P < { {8}}.0001; บริบท: 81 ± 9, P=0.0035) และหาง (ความกลัว:123 ± 15, P < 0.0001; บริบท: 90 ± 12, P {{20 }}.0132) ภูมิภาคย่อย
การวิเคราะห์ระหว่างกลุ่มพบว่าความหนาแน่นของจำนวน TRAPed มีมากกว่าอย่างมีนัยสำคัญในภูมิภาคย่อยตอนกลางของหนูที่มีเงื่อนไขความกลัว (P < 0.0001)
เพื่อวิเคราะห์ตำแหน่งของเซลล์ประสาท TRAPed เพิ่มเติม เราได้แบ่งภูมิภาคย่อย aBLA ของ rostral, กลาง และหางออกเป็นสี่ส่วน (รูปที่ 2E) ในอนุภูมิภาคตอนกลาง พบว่าผลการรักษาหลักต่อความหนาแน่นของจำนวนนับ [การวิเคราะห์ความแปรปรวนสามทาง, F(1,32)=17.44, P=0.0002] ด้วย TRAP ความหนาแน่นของจำนวนนับในความกลัวสูงกว่ากลุ่มบริบทในควอแดรนท์ 3 (218 ± 29 เทียบกับ 107 ± 17, P=0.0031) และ 4 (240 ± 16 เทียบกับ 101 ± 12, P < 0.0001)
เราประเมินเพิ่มเติมภายในกลุ่มและภายในควอแดรนท์ TRAPed นับความหนาแน่นทั่วภูมิภาคย่อย aBLA (รูปที่ 2E และตารางเสริม 2) โดยเฉพาะอย่างยิ่ง เมื่อเปรียบเทียบกับอนุภูมิภาค rostral (59 ± 8) ควอแดรนท์ 2 ของกลุ่มความกลัวมีความหนาแน่น TRAPed สูงกว่าทั้งตรงกลาง (245 ± 21, P < 0.0001) และหาง (172 ± 23, ภูมิภาคย่อย P=0.0040)
ต่อไปเราจะประเมินความสัมพันธ์ระหว่างพฤติกรรมการเยือกแข็ง และขนาดของชุดเซลล์ประสาท TRAPed ใน aBLA ทั้งหมด ในภูมิภาคย่อยระดับกลาง และในจตุภาคของภูมิภาคย่อยระดับกลางและหาง ที่ความหนาแน่นของการนับทั้งมวลแตกต่างกันระหว่างบริบทและกลุ่มที่มีเงื่อนไขด้วยความกลัว ไม่พบความสัมพันธ์ที่มีนัยสำคัญในกลุ่มความกลัวหรือกลุ่มบริบท (รูปที่ 2F) ซึ่งบ่งชี้ว่าพฤติกรรมความกลัวไม่ได้สะท้อนถึงขนาดของกลุ่มต้นกำเนิดการเรียนรู้ด้วยความกลัวในภูมิภาคย่อย aBLA

โดยรวมแล้ว การค้นพบในรูปที่ 2 บ่งชี้ว่าการปรับสภาพความกลัวส่งผลให้เกิดกลุ่ม Fos ที่ใหญ่ขึ้นใน aBLA มากกว่าการปรับสภาพบริบท เซลล์ประสาททั้งมวลได้รับการแปลอย่างหนาแน่นที่สุดไปยังภูมิภาคย่อย ABLA ที่อยู่ตรงกลาง แต่พฤติกรรมความกลัวไม่มีความสัมพันธ์กับขนาดประชากรทั้งมวล
For more information:1950477648nn@gmail.com