การวิจัยเกี่ยวกับสายพันธุ์ Cistanche
Mar 22, 2022
Najibeh Ataeia,b, Gerald M. Schneeweissc, ⁎, Miguel Angel Garcíad,e,1, Michael Kruger, Marcus Lehnerta, Jafar Valizadehf, Dietmar Quandta, ⁎
a Nees Institute for Biodiversity of Plants, Rheinische Friedrich-Wilhelms-Universität Bonn, Meckenheimer Allee 170, 53115 บอนน์ ประเทศเยอรมนี
b ผู้อำนวยการทั่วไปสำหรับสถาบันวิจัยการเกษตรแห่งอัฟกานิสถาน (ARIA), กระทรวงเกษตร, ชลประทานและปศุสัตว์, Badam Bagh, คาบูล, อัฟกานิสถาน
c Department of Botany and Biodiversity Research, University of Vienna, Rennweg 14, A-1030 เวียนนา ประเทศออสเตรีย
d Department of Biology, the University of Toronto at Mississauga, 3359 Mississauga, แคนาดา
e Real Jardín Botánico, CSIC, Plaza de Murillo 2, 28014 Madrid, Spain f Department of Biology, University of Sistan and Baluchistan, Zahedan, Iran
ติดต่อ:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
เชิงนามธรรม
ความสัมพันธ์ทางสายวิวัฒนาการของและภายในสายเลือดกาฝากที่ไม่ใช่การสังเคราะห์แสงนั้นเป็นที่รู้จักกันไม่ดีนัก ซึ่งส่งผลเสียต่อความเข้าใจของเราเกี่ยวกับพืชกาฝาก นี่ก็เป็นกรณีของCistanche(Orobanchaceae) สกุล Old World ที่มีประมาณสองโหลชนิด ซึ่งความสัมพันธ์ยังไม่ได้รับการแก้ไขโดยใช้วิธีการสายวิวัฒนาการระดับโมเลกุล ในที่นี้ เราอนุมานความสัมพันธ์ทางสายวิวัฒนาการภายในสกุล โดยใช้การสุ่มตัวอย่างแบบกว้างๆ ตามอนุกรมวิธานและทางภูมิศาสตร์ ซึ่งครอบคลุมกลุ่ม infrageneric ที่โดดเด่นก่อนหน้านี้ทั้งหมดและสปีชีส์ส่วนใหญ่ที่รู้จักในปัจจุบัน เมทริกซ์รวมของพลาสติดมาร์กเกอร์สามตัว (trnL-trnF รวมถึงอินตรอน trnL และตัวเว้นระยะระหว่างยีน (IGS), trnS-trnfM IGS และ psbA-trnH IGS) และเครื่องหมายนิวเคลียร์หนึ่งตัว (ITS) ถูกวิเคราะห์โดยใช้ parsimony สูงสุด ความเป็นไปได้สูงสุด และการอนุมานแบบเบย์Cistancheแบ่งออกเป็นสี่กลุ่มที่ได้รับการสนับสนุนอย่างดีและมีความแตกต่างทางภูมิศาสตร์: เคลดเอเชียตะวันออก, เคลดแอฟริกาตะวันตกเฉียงเหนือ, เคลดเอเชียตะวันตกเฉียงใต้ และเคลดที่แพร่หลาย ในจำนวนนั้น มีเพียง Clade ในเอเชียตะวันออกเท่านั้นที่สอดคล้องกับส่วนการจัดหมวดหมู่ที่ได้รับการยอมรับก่อนหน้านี้ ในขณะที่ส่วนอื่นๆ ประกอบด้วยสมาชิกของสองหรือสามส่วน (Widespread Clade และ Southwest Asian Clade ตามลำดับ) หรือไม่ได้รับการยอมรับทางอนุกรมวิธานมาก่อน (แอฟริกาตะวันตกเฉียงเหนือ Clade) . ในขณะที่ Clade ทางตะวันตกเฉียงใต้ของเอเชียแสดงโครงสร้างสายวิวัฒนาการที่แข็งแกร่งระหว่างและบางส่วนภายในสายพันธุ์ (Clade ในเอเชียตะวันออกและ Clade ทางตะวันตกเฉียงเหนือของแอฟริกาเป็นแบบจำเพาะเดียว) ความละเอียดสายวิวัฒนาการภายใน Widespread Clade มักจะต่ำและถูกขัดขวางโดยความคลาดเคลื่อนระหว่างเครื่องหมายนิวเคลียร์และพลาสติด ทั้งข้อมูลระดับโมเลกุลและสัณฐานวิทยาบ่งชี้ว่าปัจจุบันมีการประเมินความหลากหลายของสปีชีส์ใน Cistanche
คำสำคัญ:Cistancheเจ้าภาพ, Orobanchaceae, ปรสิต, Phylogeny, Systematics, Taxonomy
ผงสกัดสมุนไพร Cistanche จากเฉิงตู Wecistanche
1. บทนำ
Orobanchaceae เป็นระบบแบบจำลองที่ยอดเยี่ยมสำหรับการศึกษาวิวัฒนาการของปรสิตในพืชและการดัดแปลงฟีโนไทป์และพันธุกรรมพื้นฐาน (Westwood et al., 2010, Wickett et al., 2011) พวกเขายังเป็นตัวอย่างว่าข้อมูลระดับโมเลกุลได้ปรับปรุงความเข้าใจของเราเกี่ยวกับความสัมพันธ์สายวิวัฒนาการได้อย่างไร จากการศึกษาระดับโมเลกุล การวนรอบครอบครัวมีการเปลี่ยนแปลงอย่างมากและมีการปรับเปลี่ยนความสัมพันธ์ระหว่างพันธุกรรม (Wolfe et al., 2005; Bennett and Mathews, 2006; Park et al., 2008; McNeal et al., 2013; Fu et al., 2017; Li et al., 2019). การวิเคราะห์สายวิวัฒนาการที่กว้างที่สุดและครอบคลุมที่สุดของ Orobanchaceae จนถึงปัจจุบันคือโดย McNeal et al (2013) ซึ่งใช้ชุดข้อมูลรวมของเครื่องหมายห้าตัว (นิวเคลียร์: ITS, PHYA, PHYB; plastid: matK และ rps2) ซึ่งประกอบด้วยสกุลมากกว่า 50 สกุล แม้จะมีความก้าวหน้านี้ หลายสกุลยังไม่ถูกรวมไว้ในการศึกษาระดับโมเลกุลและยังคงไม่มีตำแหน่ง (Schneeweiss, 2013). นอกจากนี้ ความสัมพันธ์ทางสายวิวัฒนาการภายในจำพวก โดยเฉพาะอย่างยิ่งในกลุ่มกาฝากที่ไม่สังเคราะห์แสงที่ยากจัดอนุกรมวิธาน ยังคงมีการสำรวจได้ไม่ดี
กลุ่มที่ต้องการการตรวจสอบสายวิวัฒนาการอย่างละเอียดยิ่งขึ้นคือสกุลรากและกาฝากที่ไม่สังเคราะห์แสงCistanche. มันเป็นวัตถุที่คุ้มค่าสำหรับการศึกษาวิวัฒนาการของจีโนมขนาดใหญ่ (โครโมโซมที่ใหญ่กว่ามากและมีขนาดจีโนมที่ใหญ่กว่าตามลำดับมากกว่าในสายเลือดที่เกี่ยวข้องอย่างใกล้ชิด: Schneeweiss et al., 2004b; Weiss-Schneeweiss et al., 2006; Wicke, 2013), วิวัฒนาการที่ลดลงของ plastid genomes (Li et al., 2013; Wicke et al., 2013, 2016; Liu et al., 2020) หรือความหลากหลายของสายพันธุ์และชีวภูมิศาสตร์ในพื้นที่แห้งแล้ง แต่หนทางการวิจัยใด ๆ เหล่านี้ถูกขัดขวางโดยคนยากจนในปัจจุบัน ความเข้าใจเกี่ยวกับความสัมพันธ์ของสายพันธุ์เนื่องจากขาดข้อมูลสายวิวัฒนาการอย่างละเอียด การศึกษาไม่กี่ชิ้นที่รวม Cistanche มุ่งเน้นไปที่วิวัฒนาการของจีโนมพลาสติด (Li et al., 2013; Wicke et al., 2013, 2016) หรือความสัมพันธ์ของสายพันธุ์ที่ใช้ในการแพทย์แผนจีน (Tomari et al., 2002, 2003 ; Han et al., 2010; Sun et al., 2012; Zheng et al., 2014) และถูกจำกัดการจัดหมวดหมู่อย่างมาก ในทำนองเดียวกัน การศึกษาสายวิวัฒนาการที่มุ่งไปที่ระดับครอบครัวหรือมุ่งเน้นไปที่จำพวกที่เกี่ยวข้อง เช่น Orobanche รวมตัวแทนเพียงหนึ่งหรือสองสามคนของCistanche(Young et al., 1999; Schneeweiss et al., 2004a; Wolfe et al., 2005; Park et al., 2008; McNeal et al., 2013; Schneeweiss, 2013; Li et al., 2017, 2019). ผลลัพธ์ของพวกเขาแสดงให้เห็นว่าCistancheมีความเกี่ยวข้องอย่างใกล้ชิดกับสกุลปรสิตที่ไม่สังเคราะห์แสงอื่น ๆ เช่น Orobanche, Phelipanche, Conopholis หรือ Epifagus (clade III of McNeal et al., 2013; Orobanche-Phelipanche clade of Schneeweiss, 2013) แต่ยังไม่มีการจัดวางสายวิวัฒนาการที่แม่นยำ ตัดสินอย่างสมบูรณ์ (Schneeweiss, 2013).
เอกสารล่าสุดของทั้งสกุลคือโดย Beck-Mannagetta (1930) ตามรูปร่างกลีบเลี้ยงและหมายเลข bracteole เขาแยกแยะสี่ส่วน: (i) C. นิกายซิสทานเชลลากับสปีชีส์เดียว ค. ริดจ์วายานา; (ii) ค. นิกาย สารที่มีสายพันธุ์เดียวCistancheซีเนซิส; (iii) ค. นิกาย Heterocalyx มีสามสายพันธุ์ (C. fissa, C. ambigua และ C. rosea); (iv) ค. นิกายCistanche(ศัพท์เรียกไม่ถูกนิกาย Eucistanche โดย เบ็ค มานนาเก็ตตา ค.ศ. 1930) มีเหลืออีก 12 สปีชีส์ ภายหลังการจัดอนุกรมวิธานซึ่งโดยปกติในบริบทของดอกไม้ประจำชาติ เพิ่มสายพันธุ์ใหม่สองสามชนิดและปรับเปลี่ยนการวนรอบบางส่วนที่มักจะแปรผันทางสัณฐานวิทยา และด้วยเหตุนี้สายพันธุ์ที่ซับซ้อนทางอนุกรมวิธานที่ BeckMannagetta (1930) รู้จักแล้วจึงเป็นที่ยอมรับในปัจจุบันประมาณ 26 สปีชีส์ (The Plant List, http://www.theplantlist.org ประเมินเมื่อ 6 ธ.ค. 2560) สกุลมีการกระจายอย่างกว้างขวางในภูมิภาคที่แห้งแล้งของโลกเก่าตั้งแต่หมู่เกาะมาการโรนีเซียนและแอฟริกาตะวันตกไปจนถึงเอเชียกลางและเอเชียตะวันออก โดยเป็นศูนย์กลางของความหลากหลายของชนิดพันธุ์สูงสุดในเอเชียตะวันตกเฉียงใต้และตะวันออกกลาง (Beck-Mannagetta, 1930) เช่นเดียวกับสกุล Orobanchaceae ที่ไม่สังเคราะห์แสงอื่น ๆ Cistanche มีลักษณะการลดลงทางสัณฐานวิทยาโดยเฉพาะอย่างยิ่งของลักษณะพืช (Rodrigues et al., 2011; Schneeweiss, 2013) เพื่อให้ลักษณะการวินิจฉัยส่วนใหญ่มาจากช่อดอกและดอกไม้ (รูปร่างและ indumentum ของดอกไม้ กาบและ bracteoles โครงสร้างและ indumentum ของกลีบเลี้ยง สีของดอกไม้ รูปร่างและ indumentum ของอับละอองเกสร) ซึ่งบางส่วนได้รับการเก็บรักษาไว้ไม่ดีในตัวอย่างสมุนไพร ขาดการจัดการอนุกรมวิธานที่ครอบคลุมซึ่งครอบคลุมสปีชีส์ที่รู้จักทั้งหมดในปัจจุบัน การเป็นตัวแทนที่ไม่ดีในคอลเล็กชันโดยเฉพาะอย่างยิ่งจากพื้นที่ที่สำรวจน้อยกว่า และความขัดสนของลักษณะทางสัณฐานวิทยาที่มีประโยชน์ในการจัดอนุกรมวิธานมีส่วนทำให้อนุกรมวิธานที่ไม่รู้จักและไม่รวมกลุ่มของCistancheสายพันธุ์.
ในการศึกษานี้ เราสร้างความสัมพันธ์สายวิวัฒนาการภายในCistancheเป็นพื้นฐานสำหรับระบบอนุกรมวิธานเชิงทำนายสายวิวัฒนาการ ด้วยเหตุนี้ เรารวบรวมข้อมูลลำดับจากเครื่องหมายพลาสติดที่มีการพัฒนาอย่างรวดเร็วและเป็นที่ยอมรับ ตลอดจนลำดับ ITS นิวเคลียร์จากการสุ่มตัวอย่างที่ครอบคลุมทางอนุกรมวิธานและทางภูมิศาสตร์ และวิเคราะห์สิ่งเหล่านั้นโดยใช้วิธีเปรียบเทียบสูงสุด โอกาสสูงสุด และวิธีการแบบเบเซียน โดยเฉพาะอย่างยิ่ง เราต้องการ (i) ทดสอบสมมติฐานของความสัมพันธ์โดยนัยจากการจำแนกประเภทของ Beck-Mannagetta (1930) เช่น ว่าส่วนต่างๆ ของเขาประกอบด้วยกลุ่ม monophyletic หรือไม่ และ (ii) เพื่อทดสอบว่าสายพันธุ์ที่ซับซ้อนทางสัณฐานวิทยาและอนุกรมวิธาน เช่น C. phelypaea และ C หรือไม่ . tubulosa รูปแบบกลุ่มธรรมชาติ.
2. วัสดุและวิธีการ
2.1. วัสดุปลูก
รวมตัวอย่างหนึ่งร้อยแปดสิบเก้า (รวบรวมใหม่ วัสดุสมุนไพรหรือลำดับจาก GenBank) ซึ่งสอดคล้องกับ 17 ที่ระบุก่อนหน้านี้Cistancheสปีชีส์บวกแท็กซ่านอกกลุ่มเจ็ดตัว (หนึ่งภาคยานุวัติของ Conopholis Americana, Phelipanche cf. Iberica, ภาคยานุวัติของ Orobanche cernua สองครั้ง, O. anatolica อย่างละตัว, O. densiflora และ O. Transcaucasia) ตัวอย่างของCistancheมุ่งเป้าไปที่การครอบคลุมทางภูมิศาสตร์ในวงกว้างสำหรับแต่ละสปีชีส์ในสกุล การระบุชนิดพันธุ์ขึ้นอยู่กับอนุกรมวิธานที่ใช้ในการบำบัดแบบ monographic และในพืช (Beck Mannagetta, 1930; Zhang และ Tzvelev, 1998) การกำหนดประเภทที่เบี่ยงเบนทางสัณฐานวิทยาเป็นสปีชีส์ affinis ("aff. species name") หรือที่คำอธิบายของใหม่ คาดว่าสปีชีส์ย่อย (กำลังเตรียมการจัดอนุกรมวิธานของทั้งสกุล) เป็น "subsp. nov."; สำหรับตัวอย่างจาก GenBank ซึ่งเราไม่สามารถตรวจสอบบัตรกำนัลสมุนไพรได้ การกำหนดอนุกรมวิธานที่ใช้โดยผู้เขียนดั้งเดิมนั้นยังคงอยู่ กลุ่มที่อยู่นอกกลุ่มได้รับการคัดเลือกตามความรู้ปัจจุบันของเราเกี่ยวกับความสัมพันธ์ภายใน Orobanchaceae (Schneeweiss et al., 2004a; McNeal et al., 2013; Schneeweiss, 2013) ข้อมูลสถานที่และบัตรกำนัลรวมถึงหมายเลขภาคยานุวัติ GenBank ระบุไว้ในตารางเสริม S1
2.2. การแยกและการจัดลำดับดีเอ็นเอ
การสกัดจีโนม DNA จากเนื้อเยื่อกลีบดอกแห้งของซิลิกาเจลที่เพิ่งรวบรวมใหม่ตามโปรโตคอล CTAB (Doyle and Doyle, 1987) วัสดุสมุนไพรส่วนใหญ่แยกได้โดยใช้ DNeasy Plant Mini Kit (Qiagen, Hilden, Germany) หรือ NucleoSpin Plant II (Macherey-Nagel, Düren, Germany) วัสดุแห้งประมาณ 50 มก. ถูกทำให้เป็นเนื้อเดียวกันโดยใช้เครื่องผสม (Retsch MM200, Haan, Germany) ที่ 30 Hz เป็นเวลา 3 นาทีตามด้วยการบ่มในบัฟเฟอร์การสกัด 700 ul เป็นเวลาอย่างน้อยหนึ่งชั่วโมงที่ 65 องศา หลังจากนั้น CTABprotocol หรือโปรโตคอลที่จัดทำโดยผู้ผลิตชุดอุปกรณ์ถูกนำมาใช้
จีโนมดีเอ็นเอถูกเก็บไว้ที่ −80 องศาและเจือจางถูกใช้สำหรับการขยายในภายหลัง พลาสติดมาร์กเกอร์สามตัว (trnL-F รวมถึง trnL intron และ intergenic spacer (IGS), trnS-FM IGS และ psbA-trnH IGS) ซึ่งอยู่ในขอบเขตสำเนาเดียวขนาดใหญ่ (LSC) ของพลาสติดจีโนม และนิวเคลียส ตัวแบ่งการถอดรหัสภายใน (ITS1 และ ITS2 บวกกับยีน 5.8S rDNA ที่แทรกแซง) ถูกเลือกสำหรับการอนุมานสายวิวัฒนาการ เครื่องหมายพลาสติดแสดงให้เห็นซ้ำแล้วซ้ำอีกว่าเหมาะสมอย่างยิ่งสำหรับการศึกษาสายวิวัฒนาการในระดับสปีชีส์ (Borsch and Quandt, 2009) นอกจากนี้ psbA-trnH ยังถูกใช้สำหรับ DNA barcoding ของ Chinese . แล้วCistancheแท็กซ่า (Han et al., 2010; Sun et al., 2012; Zheng et al., 2014) ภูมิภาค ITS ของนิวเคลียร์ได้รับเลือกให้เป็นเครื่องหมายนิวเคลียร์ที่แก้ไขได้ง่ายในทางเทคนิค ซึ่งแม้จะมีปัญหาที่อาจเกิดขึ้นหลายประการ (Álvarez และ Wendel, 2003) ก็ได้ถูกนำมาใช้อย่างประสบความสำเร็จในการศึกษาสายวิวัฒนาการจำนวนมากโดยเน้นที่ความสัมพันธ์ของสปีชีส์ (Baldwin et al., 1995; Álvarez และ Wendel , 2003; Bailey et al., 2003) รวมถึง Orobanche และจำพวกที่เกี่ยวข้อง (เช่น Schneeweiss et al., 2004a; McNeal et al., 2013) นอกจากนี้ ITS2 ยังถูกใช้สำหรับบาร์โค้ด DNA ในCistanche(Han et al., 2010; Sun et al., 2012; Zheng et al., 2014; Wang และคณะ, 2561) บริเวณ trnL-F ถูกขยายโดยใช้ไพรเมอร์ C และ F (Taberlet et al. 1991) ในบางกรณี เช่น สำหรับวัสดุที่เก่าและคาดว่าจะเสื่อมโทรม พื้นที่ถูกขยายออกเป็นสองส่วนแยกกัน กล่าวคือ ใช้ไพรเมอร์คู่ C และ D (Taberlet et al., 1991) และไพรเมอร์คู่ trnL460F (Worberg et al., 2007) และ F (Taberlet et al., 1991) ตามลำดับ trnS-trnfM IGS ถูกขยายโดยใช้ trnS(UAG)-pF1 (5′- ACTAACCGGTTTTCAAGGCCG-3′) และ trnfM(CAU)-pR1 (5′-TAG AGC AGTTTGGTAGCTCGCA-3′; S. Wicke , Münster, pers. comm.), psbAtrnH IGS โดยใช้ไพรเมอร์ของ Kress et al. (2005). โพรไฟล์ PCR สำหรับมาร์กเกอร์พลาสติดประกอบด้วยขั้นตอนการทำให้เสียสภาพเริ่มต้น 5 นาทีที่ 94 องศา ตามด้วย 30 รอบแต่ละรอบด้วย 1 นาทีที่ 94 องศา 1 นาทีที่ 55 องศา 90 วินาทีที่ 72 องศา และการยืดตัวขั้นสุดท้ายที่ 7 นาทีที่ 72 องศา ภูมิภาค ITS ได้รับการขยายโดยใช้ไพรเมอร์ ITS4 และ ITS5 (White et al., 1990) โดยมีรายละเอียดการขยายเสียง 5 นาทีที่ 94 องศา ตามด้วย 40 รอบแต่ละรอบด้วย 1 นาทีที่ 94 องศา 1 นาทีที่ 48 องศาด้วยเวลา- เพิ่มขึ้น 4 วินาทีต่อรอบ 45 วินาที ที่ 68 องศา และขยายขั้นสุดท้าย 7 นาทีที่ 68 องศา PCR ที่ไม่สำเร็จถูกทำซ้ำโดยใช้ไพรเมอร์ภายใน 5.8S106-R (5′- AGGCGCA ACTTGCGTTCAAA -3′) และ 5.8S32-F (5′-GCATCGATGAAGAACGT AGC-3′; D. l. Nickrent, Southern Illinois University, USA, pers. comm.) ร่วมกับไพรเมอร์ภายนอกที่เกี่ยวข้อง ITS5 และ ITS4 ปฏิกิริยา PCR ถูกดำเนินการในปริมาตร 25 ul และรวม 1.5 UGoTaq Flexi DNA polymerase (Promega, Madison, USA), 0–0.2 M เบทาอีนโมโนไฮเดรต, 0.4 µM ของไพรเมอร์ไปข้างหน้าและย้อนกลับแต่ละตัว,0.15 mM dNTPs (Carl Roth, Karlsruhe, เยอรมนี), 1 mM MgCl2 ในบัฟเฟอร์ 1xGoTaq Flexi, 1 ul genomic DNA ของความเข้มข้นที่ไม่ทราบสาเหตุ และน้ำ สำหรับวัสดุสมุนไพรที่ย่อยสลายได้สูงบางชนิด Ready-To-Go PCRBeads (Amersham-Pharmacia Biotech, Amersham, UK) ถูกนำมาใช้ตามคำแนะนำของผู้ผลิต ตามความจำเป็นทั่วไปสำหรับการแยกดีเอ็นเอของวัสดุสมุนไพร สารเติมแต่ง PCR เช่น 1 ul PVP-40(10–40 เปอร์เซ็นต์) และ/หรือ 5 ul เอนแฮนเซอร์ สารละลาย P (5×; PeqLab, Erlangen, Germany) ถูกเติมลงใน ปฏิกิริยาที่เสียน้ำ ผลิตภัณฑ์แอมพลิฟายเออร์ถูกทำให้บริสุทธิ์ด้วยเจลบนเจลอากาโรส 1 เปอร์เซ็นต์โดยใช้ชุดอุปกรณ์ทำให้บริสุทธิ์ PeqLab PCR (Peqlab) หรือชุดอุปกรณ์ทำ PCR ให้บริสุทธิ์อย่างรวดเร็ว (Qiagen) สำหรับผลิตภัณฑ์ ITS-PCR ที่ซ้อนกัน < 300="" bp="" (การขยายจากวัสดุสมุนไพรซึ่งมักปนเปื้อนเชื้อรา)="" ให้เลือกความเข้มข้นของเจลที่สูงขึ้น="" (1.4="" เปอร์เซ็นต์="" )="" และเวลาการทำงานที่นานขึ้น="" ผลิตภัณฑ์="" pcr="" ที่ทำความสะอาดได้รับการจัดลำดับโดย="" macrogen="" (โซล="" ประเทศเกาหลี)="" ด้วยไพรเมอร์ขยายเสียงและไพรเมอร์ภายในเพิ่มเติมที่กล่าวถึงข้างต้น="">

cistanche wikung
2.3. การจัดตำแหน่งลำดับ การเข้ารหัสอินเดล และการวิเคราะห์สายวิวัฒนาการ
ลำดับดีเอ็นเอถูกประกอบและจัดแนวโดยใช้ PhyDE 0.97 (Müller et al., 2006) ติดตาม Olsson และคณะ (2009) ขอบเขตของความคล้ายคลึงที่ไม่แน่นอน (ฮอตสปอตการกลายพันธุ์) ถูกใส่คำอธิบายประกอบไว้ใน PhyDE และนำออกจากการวิเคราะห์ การผกผันถูกแยกตามตำแหน่งในการจัดตำแหน่งและรวมเป็นการเสริมแบบย้อนกลับตามที่แนะนำก่อนหน้านี้ (Quandt et al., 2003; Borsch และ Quandt; 2009) อินเดลถูกเข้ารหัสโดยใช้การเข้ารหัสอินเดลอย่างง่าย (SIC; Simmons และ Ochoterena, 2000) ตามที่ดำเนินการใน SeqState 1.25 (Müller, 2005) และเพิ่มเป็นพาร์ติชั่นข้อมูลเพิ่มเติม ในเมทริกซ์ข้อมูลทั้งหมด ช่องว่างของลำดับถือเป็นข้อมูลที่ขาดหายไป และตำแหน่งที่จัดแนวจะถือว่ามีน้ำหนักเท่ากัน
การวิเคราะห์ดำเนินการบนชุดข้อมูลสามชุดตามลำดับซึ่งสอดคล้องกับเครื่องหมายพลาสติดที่ต่อกัน, ITS และข้อมูลที่รวมกัน (มาร์กเกอร์พลาสติดและนิวเคลียสรวมกัน) แต่ละชุดมีหรือไม่มีอินเดล ส่งผลให้มีการวิเคราะห์ชุดข้อมูลทั้งหมดหกชุด ก่อนการวิเคราะห์แบบรวม ชุดข้อมูลตัวทำเครื่องหมายเดี่ยวจะถูกคัดกรองหาความไม่ลงรอยกันระหว่างตัวทำเครื่องหมายผ่านการวิเคราะห์แยกกันของทุกตำแหน่งเดียวใน MrBayes โดยใช้การตั้งค่าเริ่มต้น (ไม่แสดงข้อมูล) การวิเคราะห์พาร์ซิโมนีสูงสุด (MP) ของเมทริกซ์นิวคลีโอไทด์ที่ต่อกันที่มีและไม่มีอินเดลเมทริกซ์ต่อท้ายถูกดำเนินการใน PAUP* 40b10 (Swofford, 1999) โดยใช้วงล้อพาร์ซิโมนี (Nixon, 1999) ผ่านไฟล์คำสั่งที่สร้างขึ้น โดย PRAP2 (Müller, 2004). ใช้การตั้งค่าวงล้อต่อไปนี้: การวนซ้ำ 200 ครั้งโดย 25 เปอร์เซ็นต์ของตำแหน่งสุ่มเพิ่มน้ำหนัก (น้ำหนัก=2) ในแต่ละการจำลองและ 10 รอบการเพิ่มแบบสุ่ม การวิเคราะห์ความเป็นไปได้สูงสุด (ML) ของเมทริกซ์นิวคลีโอไทด์ที่ต่อกัน
โดยมีและไม่มีเมทริกซ์อินเดลต่อท้าย ดำเนินการโดยใช้ RAxML 8 (Stamatakis, 2014) โดยใช้แบบจำลอง GTRCAT สำหรับทั้ง MP และ ML การสนับสนุนนั้นประเมินผ่าน bootstrapping (Felsenstein, 1985) โดยใช้การจำลอง 10000 การอนุมานแบบเบย์ (BI) ดำเนินการในชุดข้อมูลทั้งหกชุด (เครื่องหมายเดี่ยวและแบบแบ่งส่วน โดยมีและไม่มีรหัสอินเดล) ดำเนินการด้วย MrBayes 3.2.2 (Huelsenbeck และ Ronquist, 2001; Ronquist และ Huelsenbeck, 2003) โดยใช้ GTR plus Γ plus ฉันสร้างแบบจำลองสำหรับพาร์ติชันนิวคลีโอไทด์ (แบบจำลองที่ไม่ได้เชื่อมโยงสองแบบในกรณีของชุดข้อมูลที่รวมกัน) และแบบจำลองไซต์ข้อจำกัด (F81-like; Felsenstein, 1981) สำหรับพาร์ติชัน indel ที่มีระดับความสำคัญเริ่มต้น วิ่งหกรอบโดยแต่ละสายมี 10 ล้านรุ่น และแต่ละสายโซ่สี่เส้น (โซ่แบบเย็นหนึ่งเส้นและแบบอุ่นสามเส้นโดยใช้การทำความร้อนเริ่มต้น) แบบขนานกัน โดยสุ่มตัวอย่างทุก ๆ รุ่นที่ 1,000 25 เปอร์เซ็นต์แรกถูกละทิ้งเมื่อเกิดการเบิร์นอิน ซึ่งดีหลังจากโซ่หยุดนิ่งดังที่ระบุใน Tracer v.1.7.1 (Rambaut et al., 2018) ต้นไม้ได้รับการแก้ไขโดยใช้ TreeGraph2 (Stöver and Müller, 2010)
3. ผลลัพธ์
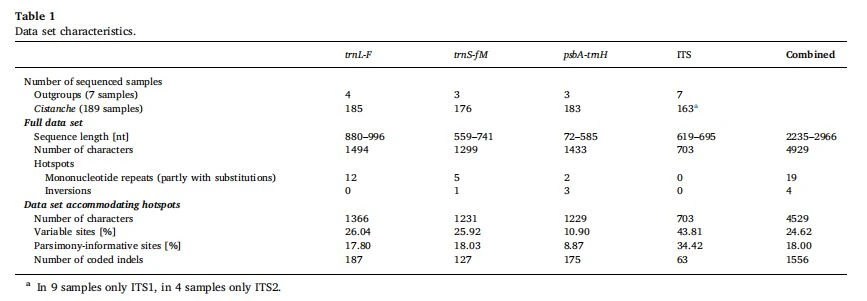
ลักษณะของชุดข้อมูลแบบเต็ม ที่ไม่มีตำแหน่งใดถูกลบออก และของชุดข้อมูล โดยที่ฮอตสปอต (สำหรับรายละเอียดเพิ่มเติม โปรดดูตารางเสริม S2) ถูกลบออก (โมโนนิวคลีโอไทด์ซ้ำ) หรือเปลี่ยนกลับ (การผกผันที่เกี่ยวข้องกับกิ๊บ) แสดงไว้ในตาราง 1. อินเดลส่วนใหญ่ในชุดข้อมูลมีการทำซ้ำของชิ้นส่วนที่อยู่ติดกัน (เช่น การทำซ้ำลำดับอย่างง่าย [SSR]) ซึ่งมีความยาวตั้งแต่ 2 ถึง 20 นิวคลีโอไทด์ (ไม่แสดงข้อมูล) นอกจากนี้ ในตัวเว้นระยะ psbA-trnH การลบ 1148 bp ในเมทริกซ์ที่จัดแนวถูกสังเกตพบใน C. aff fissa 2 ซึ่งสอดคล้องกับการลดความยาวของลำดับเป็น 20 เปอร์เซ็นต์ของความยาวเฉลี่ย
เราสังเกตว่าไม่มีความสอดคล้องกันอย่างมีนัยสำคัญระหว่างความสัมพันธ์สายวิวัฒนาการที่อนุมานจากเครื่องหมายพลาสติดเดี่ยว (ไม่แสดงข้อมูล) แต่ระหว่างเครื่องหมายพลาสติดที่ต่อกันกับเครื่องหมายนิวเคลียร์ (รูปที่ S1–S2) เสริม สิ่งเหล่านี้ส่วนใหญ่พบใน clade รวมถึง C. phelypaea และCistanchetubulosa (กล่าวคือ Widespread Clade: ดูย่อหน้าถัดไป) ซึ่งโดดเด่นด้วยระดับความแตกต่างโดยรวมที่ตื้น (ดู phylogram ในรูปที่ 1) ไม่มีความคลาดเคลื่อนที่มีนัยสำคัญระหว่างต้นไม้ที่อนุมานจากชุดข้อมูลที่มีหรือไม่มีอินเดลที่เข้ารหัส อย่างไรก็ตาม การใช้ข้อมูลอินเดลเพิ่มความละเอียดของโทโพโลยีโดยรวม ในขณะที่ผลกระทบต่อค่าการสนับสนุนนั้นไม่ชัดเจน (รูปที่ 1 รูปที่เสริม S1–S3)

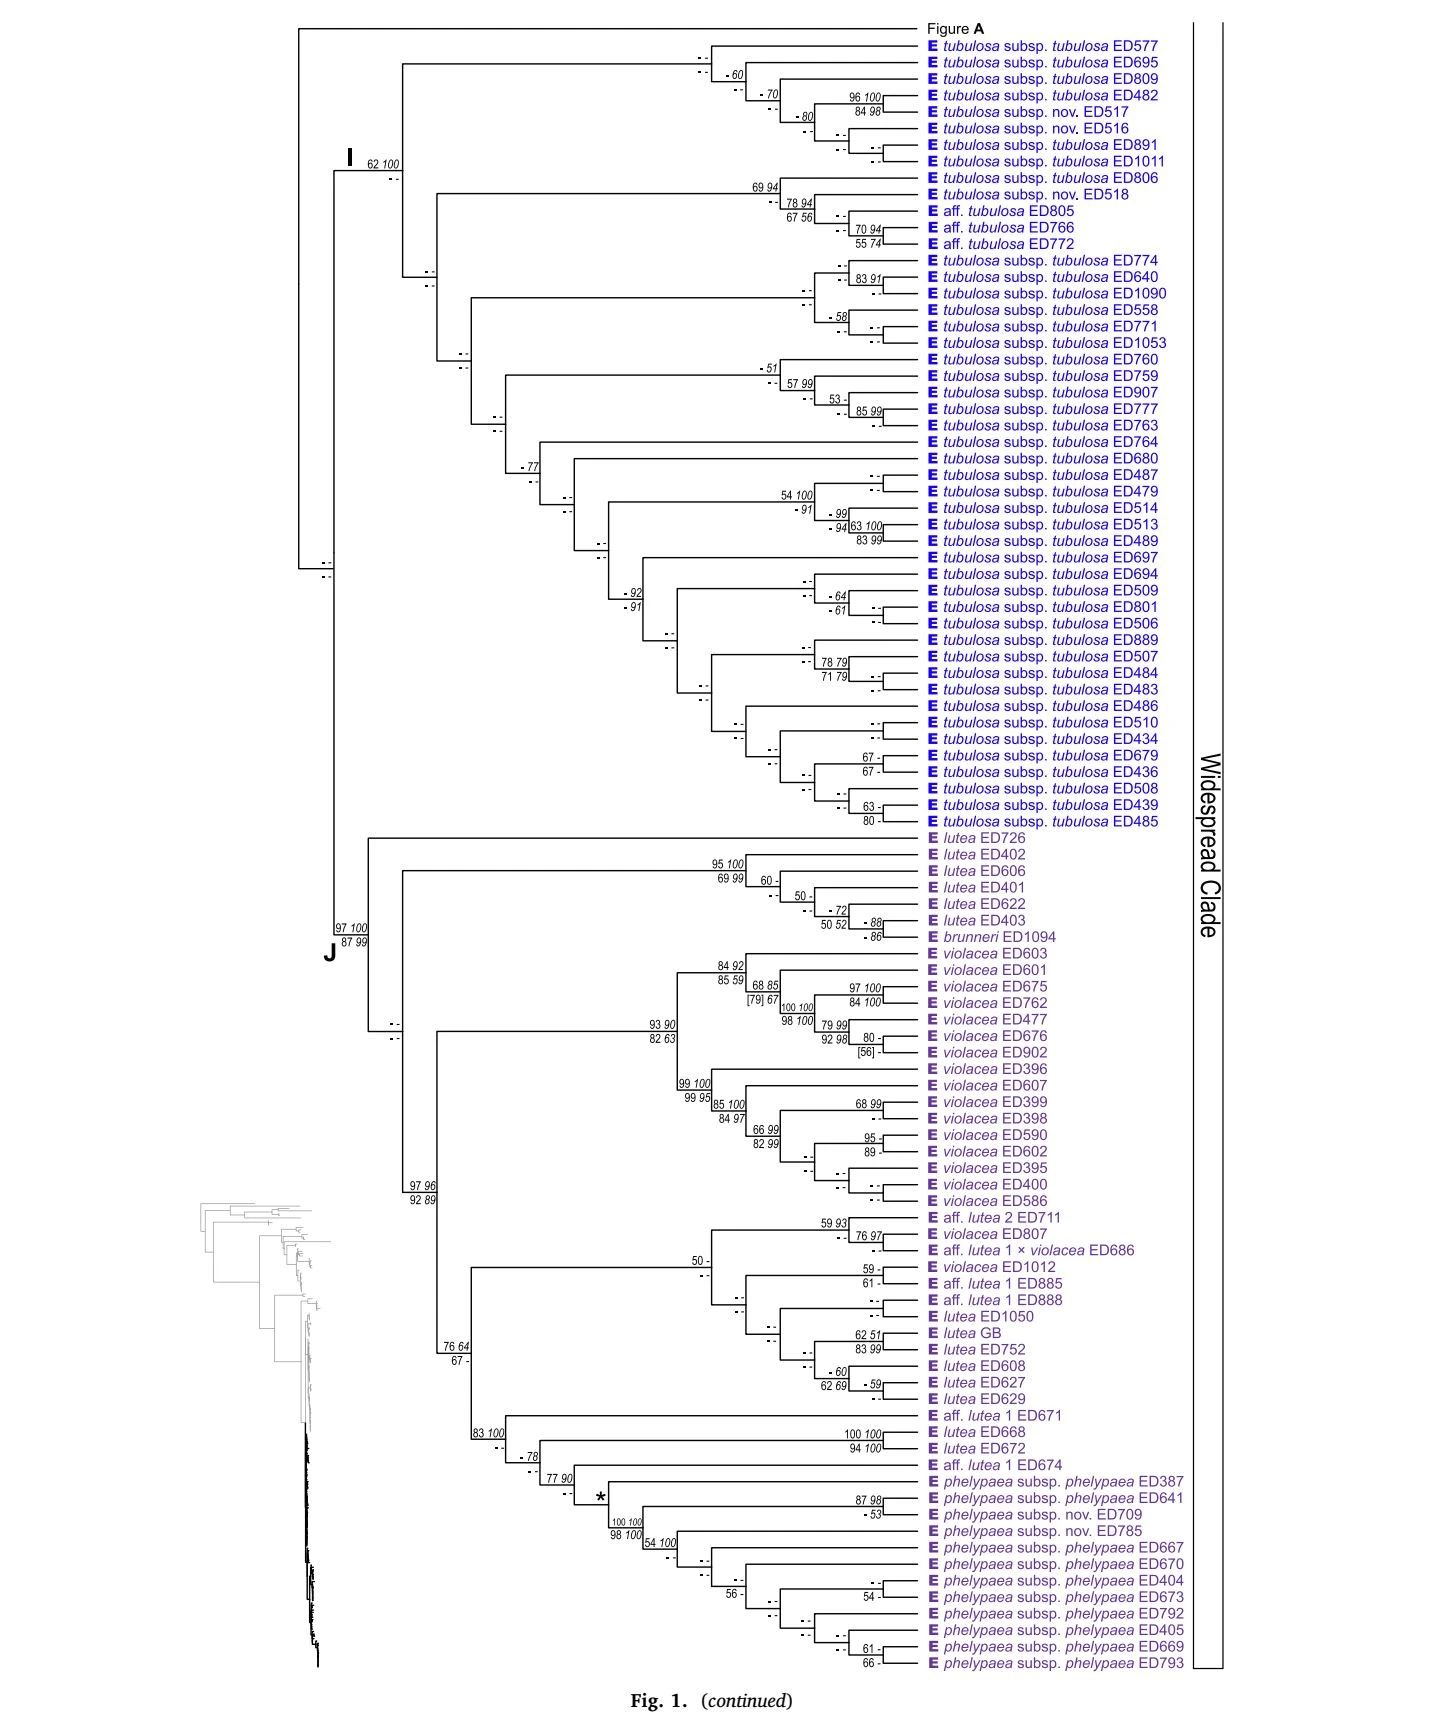
ต้นไม้สายวิวัฒนาการที่ได้รับจาก ML และ BI โดยอิงจากพลาสติดและเครื่องหมายนิวเคลียร์รวมกัน ทั้งคู่มีอินเดล (คะแนนความน่าจะเป็นบันทึกของ ML ที่ −21272.719 ค่าเฉลี่ยฮาร์มอนิกของคะแนนความน่าจะเป็นบันทึกจาก BI ที่ -21432.751) และไม่มีอินเดล (ML log-likelihood คะแนน -17135.239 ค่าเฉลี่ยฮาร์มอนิกของคะแนนความน่าจะเป็นบันทึกจาก BI ที่ −17654.075) มีความสอดคล้องกันอย่างยิ่งและให้ผลต้นไม้ที่มีการแก้ไขอย่างดี (รูปที่ 1) ต่อไปนี้ เราจะเน้นที่ผลลัพธ์จากการวิเคราะห์แบบรวม โดยอ้างอิงถึงการวิเคราะห์แบบ single-marker (แบบแบ่งส่วน plastid กับนิวเคลียร์) เฉพาะในกรณีที่มีความคลาดเคลื่อนอย่างมีนัยสำคัญ การวิเคราะห์แบบรวมที่ระบุCistancheเป็นกลุ่ม monophyletic แม้ว่าจะได้รับการสนับสนุนเพียงเล็กน้อย (ML 61/ < 50;="" bi="" 0.77/0.91;="" สนับสนุนค่าจากการวิเคราะห์ด้วยอินเดลที่มีโค้ด/ไม่มีอินเดลที่มีโค้ด)="" ในการวิเคราะห์="" mp="" ตำแหน่งของ="" c.="" sinensis="">Cistancheสปีชีส์และแท็กซ่านอกกลุ่มไม่ได้รับการแก้ไข (รูปที่ S3) เพิ่มเติมCistancheแบ่งออกเป็นสี่กลุ่มหลักที่ได้รับการสนับสนุนอย่างดี (รูปที่ 1, รูปที่ S3) เพิ่มเติม, ต่อจากนี้ไปจะเรียกว่า Clade ในเอเชียตะวันออก, Clade ในเอเชียตะวันตกเฉียงใต้, Clade แอฟริกาตะวันตกเฉียงเหนือและ Clade แพร่หลายตามลำดับ Clade ในเอเชียตะวันออกที่มีเพียง C. Sinensis (MP 100/100; ML 100/100; BI1.00/1.00) จากประเทศจีนและมองโกเลีย ถูกอนุมานว่าเป็นน้องสาวของส่วนที่เหลือ ของCistanche(MP 100/100; ML 100/100; BI 1.00/1.00) TheSouthwest Asian Clade (MP 100/100; ML 100/100; BI 1.00/1.00) ซึ่งประกอบด้วยหลายชนิดตั้งแต่ตะวันตกเฉียงใต้ไปจนถึงเอเชียกลาง ได้แก่ sister to the clade (MP 100/100; ML 100/100; BI 1.00/1.00) รวมทั้ง Clade แอฟริกาตะวันตกเฉียงเหนือและ Widespread Clade ในขณะที่ Clade ทางตะวันตกเฉียงเหนือของแอฟริกา (MP 100/100; ML 100/100; BI 1.00/1.00) มีเพียงสายพันธุ์เดียวเท่านั้นที่ถูกจำกัดอยู่ในแอฟริกาตะวันตกเฉียงเหนือ แต่ Clade ที่แพร่หลาย (MP 100/100; ML 100/100; BI 1.00/1.00) รวมอยู่ด้วย ประมาณสิบชนิดร่วมกันมีการกระจายอย่างกว้างขวางจากชายฝั่งมหาสมุทรแอตแลนติกของยุโรปและแอฟริกาไปยังเอเชียกลาง
ในเอเชียตะวันตกเฉียงใต้ Clade โครงสร้างสายวิวัฒนาการนั้นเด่นชัด (รูปที่ 1, รูปที่ S3) เพิ่มเติม Clade A (MP 98/100; ML 100/ 100; BI 1.00/1.00) รวมเฉพาะ C. ambigua ซึ่งแบ่งออกเป็นสองกลุ่มย่อยที่แยกจากกันทางภูมิศาสตร์ หนึ่ง (MP 79/1{{30}}; ML 75/ < 50;="" bi="" 1.00="">< 50)="" ที่มีภาคยานุวัติจากตะวันออกเฉียงเหนือของอิหร่านโดยเฉพาะ="" ครั้งที่สอง="" (mp="" 75/51;="" ml="" 82/="">< 50;="" bi="" 1.00/0="" 51)="" โดยมีภาคยานุวัติบางส่วนจากภาคเหนือของอิหร่าน="" เช่นเดียวกับสองภาคยานุวัติจากทางตะวันตกเฉียงใต้ของอัฟกานิสถาน="" clade="" a="" เป็นพี่น้องกัน="" (mp="" 70/52;="" ml="" 69/="">< 50;="" bi="" 1.00/0.93)="" ถึง="" c.="" ridgewayana="" จากอัฟกานิสถาน="" กลุ่มพี่น้องที่ตามมา="" (mp="" 98/="" 99;="" ml="" 100/100;="" bi="" 1.00/1.00)="" คือ="" clade="" b="" (mp="" 62/68="" ;="" ml="" 75/79;="" bi="" 0.97/1.00)="" ที่ประกอบรวมด้วยภาคยานุวัติของ="" c.="" aff="" ริดจ์วายานา="" ภายในโครงสร้างสายวิวัฒนาการของ="" clade="" b="" สอดคล้องกับภูมิศาสตร์="" เนื่องจากภาคยานุวัติจากทางตะวันตกเฉียงเหนือและตอนกลางของอิหร่าน="" (aff.="" ridgewayana="" 2)="" ก่อตัวเป็น="" subclade="" ที่ซ้อนกันภายในระดับของการภาคยานุวัติจากภาคกลางและตอนใต้ของอิหร่านเป็นหลัก="" (aff.="" ridgewayana="" 1)="" อย่างไรก็ตาม="" ความสัมพันธ์ระหว่างภาคยานุวัติของ="" c.="" ridgewayana="" sl="" (c.="" ridgewayana="" และ="" c.="" aff.="" ridgewayana)="" แตกต่างกันระหว่างเครื่องหมาย:="" ในขณะที่="" c.="" ridgewayana="" sl="" ถูกอนุมานว่าเป็น="" monophyletic="" โดยไม่มีโครงสร้างภายในที่สนับสนุนโดยข้อมูล="" its="" (รูปที่="" s2)="" เพิ่มเติม="" มันถูกอนุมานว่าเป็น="" paraphyletic="" โดยข้อมูล="" plastid="" โดยเปรียบเทียบกับการวิเคราะห์แบบรวม="" ได้เปลี่ยนตำแหน่งของ="" c.="" aff="" ridgewayana="" 1="" และ="" c.="" aff.="" ridgewayana="" 2="" กลุ่มน้องสาวที่ตามมาของ="" clade="" รวมถึง="" c.="" ambigua="" และ="" c.="" ridgewayana="" sl="" (mp="" 74/60;="" ml="" 96/93;="" bi="" 1.00/1.00)="" คือ="" clade="" c="" (mp="" 100/100;="" ml="" 100/100;="" bi="" 1.00/1.00)="" ที่มี="" c.="" aff.="" fissa="" 1="" จากอัฟกานิสถาน="" กลุ่มพี่น้องสตรีที่ตามมาคือ="" (i)="" ภาคยานุวัติเดียวของ="" c.="" aff="" fissa="" 2="" จากอาเซอร์ไบจาน="" (mp="" 57/100;="" ml="" 84/85;="" bi="" 0.88/0.57),="" (ii)="" clade="" d="" (mp="" 100/100;="" ml="" 100/100;="" bi="" 1.00/1.00)="" ประกอบด้วย="" c.="" salsa="" จากเอเชียตะวันตกเฉียงใต้และ="" จากประเทศจีน="" (mp="" 100/100;="" ml="" 80/90;="" bi="" 0.99/0.99)="" และ="" (iii)="" clade="" e="" (mp="" 100/100;="" ml="" 100/100;="" bi="" 1.00/="" 1.00)="">CistancheDeserticola จากจีนและมองโกเลีย (MP 100/100; ML 100/100; BI 1.00/1.00)

มะเดื่อ 2. ลักษณะดอกและรูปร่างกลีบเลี้ยงสำหรับสมาชิกที่เลือกของเคล็ดเอเชียตะวันออก (J), เคลดเอเชียตะวันตกเฉียงใต้ (F–I), เคลดแอฟริกาตะวันตกเฉียงเหนือ (K) และเคลดแพร่หลาย (A–E, L– M) ของ Cistanche (A) C. senegalensis, (B) C. flava, (C) C. tubulosa subsp. tubulosa, (D) C. violacea, (E) C. phelypaea subsp. พ.ย., (F) C. fissa,(G) C. ซัลซ่า, (H) C. ridgewayana, (I) C. ambigua, (J) C. Sinensis, (K) C. spec. พ.ย., (L) C. rosea, (M) C. laxiflora.
ในความสัมพันธ์แบบแพร่หลายของ Clade มีความคลุมเครือในบางครั้งเนื่องจากความละเอียดของข้อมูลนิวเคลียร์ในระดับต่ำ ตลอดจนความคลาดเคลื่อนระหว่างเครื่องหมายพลาสติดและเครื่องหมายนิวเคลียร์ (มะเดื่อเสริม S1–S2) สิ่งเหล่านี้ไม่เพียงเกี่ยวข้องกับตำแหน่งของภาคยานุวัติเดียว (เช่น C. Senegalese ED1096,Cistancheอนุพันธุ์ทูบูโลซา tubulosa ED891) แต่ยังมีการล้อมรอบ subclades ที่ใหญ่กว่าด้วย ตัวอย่างเช่น ในขณะที่ข้อมูลพลาสติดอนุมานว่า C. Rosea เป็นพี่น้องกันที่ได้รับการสนับสนุนอย่างดีสำหรับสปีชีส์ที่เหลือ (BI 1.00; รูปที่ S1) เพิ่มเติม ข้อมูลนิวเคลียร์ระบุว่าเป็นสมาชิกของคลด (BI 1) 00) รวมถึงทุกสายพันธุ์ ยกเว้น C. phelypaea, C. violacea และภาคยานุวัติส่วนใหญ่ของ C. lutea (รูปที่ S2) เสริม ดังนั้น ความสัมพันธ์ระหว่างกลุ่มหลัก (clades F–J) อนุมานจากการวิเคราะห์แบบรวมมักจะได้รับการแก้ไขไม่ดีและได้รับการสนับสนุนไม่ดี (รูปที่ 1) ข้อยกเว้นเพียงอย่างเดียวคือ clade F (MP 100/100; ML 100/100; BI 1.00/1.00) ที่มี C. rosea จาก คาบสมุทรอาหรับ (ในการวิเคราะห์ของ ITS คลดที่เกี่ยวข้องและสนับสนุนเพียงเล็กน้อยเท่านั้นที่รวมการภาคยานุวัติ ED1096 ของ C. senegalensis: รูปที่ S2) เพิ่มเติม ซึ่งมีความสัมพันธ์ระหว่างพี่น้องกับคลด (MP 99/94; ML 98/99; PP 1.00/ 0.99) ที่ประกอบด้วยสปีชีส์ที่เหลือ (clades G–J; รูปที่ 1) ได้รับการสนับสนุนอย่างดี

herba cistanches
Clade G (MP 63/99; ML 84/54; BI 1.00/ < 50)="" มี="" c.="" laxifloraจากอิหร่านและอัฟกานิสถาน="" พร้อมด้วย="" c.="" tubules="" จากประเทศจีนสองรายการ="" (gb1="" และ="" จีบี2).="" ภายใน="" clade="" g,="" c.="" laxiflora="" เป็น="" paraphyletic="" เนื่องจาก="" subclade="" ของ="" c.="" tubulosa="" accessions="" สองตัว="" (mp="" 98/65;="" ml="" 99/73;="" bi="" 1.00/0.77)="" จัดกลุ่มเป็น="" a="" clade="" (mp="" 54/="">< 50;="" ml="" 60/91;="" bi="" 1.00/1.00)="" โดยมี="" c.="" laxiflora="" ภาคยานุวัติจากภาคเหนือและภาคใต้ของอิหร่าน="" รวมทั้ง="" อัฟกานิสถาน="" (mp="" 85/="">< 50;="" ml="">< 50/50;="" bi="">< 0.50/0.74)="" ในการยกเว้นการภาคยานุวัติของ="" c.="" laxiflora="" จากภาคกลางของอิหร่านในรูปแบบ="" clade="" ที่แยกจากกัน="" (mp="" 99/95;="" ml="" 99/95;="" bi="" 1="">
Clade H (MP unsupported; ML 97/50; PP 1.00/ < 50)="" มี="" c.="" senegalensis="" (แอฟริกาตะวันออก)="" และที่ซ้อนอยู่ในนั้น="" เป็น="" monophyletic="" ยัง="" ไม่สนับสนุน="" c.="" flava="" (เอเชียตะวันตกเฉียงใต้)="" และกลุ่มย่อย="" (mp="" 90/73;="" ml="" 86/69;="" bi="" 0.79/0.86)="" ที่ประกอบด้วยภาคยานุวัติของ="" c.="" aff="" tubulosa="" จากคาบสมุทรอาหรับตอนใต้="" (โอมาน,="" เยเมน)="" หลักฐานของ="" clade="" h="" มาจากข้อมูล="" plastid="" เพียงอย่างเดียว="" เพราะใน="" its="" c.="" flava="" ถูกอนุมานว่ามีความเกี่ยวข้องอย่างใกล้ชิดกับ="" c.="" laxiflora="" และความสัมพันธ์ระหว่าง="" c.="" senegalensis="" และ="" c.="" tubulosa="" ยังไม่ได้รับการแก้ไข="" (รูปที่="" s2)="" เพิ่มเติม="" ใน="" clade="" h="" ไม่เพียงแต่ความสัมพันธ์ของ="" c.="" tubulosa="" และ="" c.="" flava="" กับ="" c.="" senegalensis="" ได้รับการแก้ไขไม่ดีและได้รับการสนับสนุนที่ไม่ดี="" แต่ยังรวมถึงความสัมพันธ์ในสายเลือดภายใน="" c.="" senegalensis="" และภายใน="" c.="" flava="" ข้อยกเว้นเพียงอย่างเดียวคือกลุ่มย่อยที่มี="" c.="" สี่="" .="" flava="" accessions="" (flava="" subsp.="" nov.)="" จากภาคเหนือของอิหร่าน="" (mp="" 100/97;="" ml="" 100/99;="" bi="">
Clade I (MP unsupported; ML 62/54; PP 1.00/ < 0.50)="" มีเฉพาะภาคยานุวัติของ="" c.="" tubulosa="" ครอบคลุมพื้นที่กว้างใหญ่ตั้งแต่="" cape="" verde="" islands="" และ="" mali="" ผ่านทาง="" คาบสมุทรอาหรับและอิหร่าน="" ไปจนถึงปากีสถานและอินเดีย="" หลักฐานของ="" clade="" h="" ก็มาจากข้อมูล="" plastid="" เพียงอย่างเดียว="" เพราะใน="" its="" กลุ่มนี้ถูกอนุมานว่าเป็น="" paraphyletic="" และมักไม่ได้รับการแก้ไขเกี่ยวกับ="" c.="" rosea="" (clade="" f),="" c.laxiflora="" (clade="" g)="" เช่นเดียวกับ="" c.="" senegalensis="" และ="" c="" .="" ฟลาวา="" (clad="" h).="" โครงสร้างสายวิวัฒนาการใน="" clade="" i="">
Clade J (MP 92/53; ML 97/87; PP 1.00/0.99) มี C. lutea sl (เช่น C. lutea, C. aff. lutea 1 และ C. aff. lutea 2; Macaronesian Islands and the Mediterranean) และที่ซ้อนกันอยู่ในนั้น C. Brunner (แอฟริกาตะวันตก), C. phelypaea (หมู่เกาะ Macaronesian, บริเวณชายฝั่งทะเลแอตแลนติกและเมดิเตอร์เรเนียนของแอฟริกาและยุโรปตะวันตกเฉียงใต้) และ C. violacea ( แอฟริกาเหนือ)Cistancheฟีลีเพีย (MP 100/98; ML 100/ 100; BI 1.00/1.{{ 31}}0) เกิดขึ้นพร้อมกับเกรดของ C. lutea sl (ภาคยานุวัติจากทุกช่วงการกระจายของสายพันธุ์นี้) บวกกับสองภาคยานุวัติของ C. violaceus (ED807 และ ED1{{ 41}}12 จากซาอุดีอาระเบียและจอร์แดน ตามลำดับ) และลูกผสมของ C. aff. lutea 1 และ C. violacea, clade ที่ได้รับการสนับสนุนอย่างอ่อนแอ (MP 55/-; ML 76/67; BI 0.64/ < 0.50)="" ที่เป็นพี่น้องกัน="" (mp="" 90/53;="" ml="" 97/92;="" bi="" 0.96/0.89)="" เป็น="" clade="" (mp="" 68/58;="" ml="" 93/82;="" bi="" 0.90/0.63)="" รวมถึงภาคยานุวัติ="" c.="" violacea="" ที่กล่าวถึงก่อนหน้านี้ทั้งหมดสองรายการ="" ตรงกันข้ามกับ="" c.="" violacea="" ที่ซึ่งการแยกทางภูมิศาสตร์ออกเป็น="" clade="" ที่มีการกระจายอย่างกว้างขวาง="" (mp="" 53/70;="" ml="" 84/85;="" bi="" 0.92/="" 0.59)="" และ="" moroccon="" clade="" โดยเฉพาะ="" (mp="" 92/93;="" ml="" 99/99;="" bi="" 1="" พบ="" 00/0.95)="" โครงสร้างสายวิวัฒนาการและภูมิศาสตร์ใน="" c.="" lutea="" sl="" และ="" c.="" phelypaea="" มีจำกัด="" ภาคยานุวัติที่เหลือของ="" c.="" lutea="" (ทั้งหมดมาจากแอฟริกาตะวันตก)="" บวกกับ="" c.="" brunneri="" (รวมการภาคยานุวัติเพียงครั้งเดียว)="" ประกอบเป็นเกรดที่ฐานของ="" clade="" j="" เนื่องจากตำแหน่งของ="" c.="" lutea="" ภาคยานุวัติจากไนเจอร์="" (ed726)="" นอก="" clade="" (mp="" 94/60,="" ml="" 95/69;="" bi="" 1.00/0.99)="" เกิดขึ้นจากภาคยานุวัติอื่นๆ="" การอนุมานของเกรด="" c.="" lutea="" นี้น่าจะเกิดจากความคลาดเคลื่อนระหว่างข้อมูล="" plastid="" กับ="" its="" โดยเฉพาะอย่างยิ่ง="" จากข้อมูลพลาสมิด="" ภาคยานุวัติ="" c.="" lutea="" เหล่านี้บวกกับ="" c.="" brunneri="" ถูกอนุมานว่าสัมพันธ์อย่างใกล้ชิดกับ="" c.="" violacea="" และภาคยานุวัติ="" c.="" lutea="" อื่นๆ="" (รูปที่="" s1)="" เสริม="" เช่น="" ในข้อมูลที่รวมกัน="" ในขณะที่ข้อมูล="" its="" วางไว้="" ในตำแหน่งที่ไม่ได้รับการแก้ไข="" ในคลดที่มี="" c.="" senegalensis="" และ="" c.="" tubulosa="" จนถึงการแยกสมาชิกอื่นของ="" clade="" j="" (รูปที่="" s2)="">
4. การอภิปราย
ในเอกสารล่าสุดของสกุลCistancheเบ็ค-มานนาเก็ตตา (1930) จำแนกสี่กลุ่ม (เป็นส่วนอนุกรมวิธาน) ที่แตกต่างกันในลักษณะกลีบเลี้ยงและจำนวนหนาม ยกเว้นนิกายค. สาร (East Asian Clade) ไม่มีส่วนใดของ Beck Mannagetta ที่ได้รับการสนับสนุนเป็น monophyletic แทนชนิดของนิกายค.Cistancheและค.นิกาย Heterocalyx ผสมผสานกัน (ใน Clade ทางตะวันตกเฉียงใต้ของเอเชียและ Clade ที่แพร่หลาย) และสายพันธุ์เดียวของ C. sect ซิสทานเชลลาเป็นอัมพาตและซ้อนอยู่ในเคลดเอเชียตะวันตกเฉียงใต้ เชื้อสายสายหลักที่สี่ (คลดในแอฟริกาตะวันตกเฉียงเหนือ) เป็นตัวแทนของสปีชีส์ที่ยังคงอธิบายได้ซึ่งใกล้เคียงกับลักษณะทางสัณฐานวิทยาของซี.Cistancheไม่ได้ระบุไว้ในการจำแนกประเภทใด ๆ ก่อนหน้านี้
สี่สายเลือดหลักที่ระบุในที่นี้ยังสามารถกำหนดลักษณะทางสัณฐานวิทยาได้ โดยเฉพาะอย่างยิ่ง C. Sinensis สายพันธุ์เดียวของเอเชียตะวันออกคือ C. Sinensis เท่านั้นCistancheสปีชีส์ที่มีกลีบเลี้ยงสี่ส่วนมีรอยบากลึก ในขณะที่ชนิดอื่นๆ ทั้งหมดมี (อย่างน้อย) ห้ากลีบซึ่งส่วนใหญ่เป็นกลีบเลี้ยงที่เชื่อมต่อกัน (รูปที่ 2) สปีชีส์ของ Clade แพร่ระบาดมีลำต้นที่เกลี้ยงเกลา ใบประดับ และกลีบเลี้ยง ในขณะที่ Clade ในเอเชียตะวันตกเฉียงใต้และแอฟริกาตะวันตกเฉียงเหนือมีขนบางส่วนเป็นอย่างน้อย ในที่สุด สมาชิกของ Clade แอฟริกาตะวันตกเฉียงเหนือมี indumentum อะแรคนอยด์ - ลานูจิโนสอย่างหนาแน่นและกาบรูปสี่เหลี่ยมขนมเปียกปูนในวงกว้างที่ไม่พบใน Clade ของเอเชียตะวันตกเฉียงใต้ (รูปที่ 2) อักขระที่เน้นก่อนหน้านี้ กล่าวคือ จำนวน bracteoles (หนึ่งหรือไม่มีในนิกาย C.ซิสทานเชลลาเทียบกับสองในส่วนอื่น ๆ ทั้งหมด) และรูปร่างของกลีบเลี้ยง (แยกออกลึกมากและไม่เท่ากันในนิกาย C. Heterocalyx กับแยกตื้นและเท่ากันใน C. sectCistanche) อย่าสะท้อนรอยแยกที่ลึกกว่า และอย่างน้อยก็ในกรณีที่รูปร่างของกลีบเลี้ยงกลีบเลี้ยง ดูเหมือนจะมีวิวัฒนาการอย่างน้อยสองครั้งอย่างอิสระ
สปีชีส์ที่รู้จักในปัจจุบันหลายชนิดไม่ได้รับการสนับสนุนเป็น monophyletic (รูปที่ 1) ซึ่งไม่ได้จำกัดเฉพาะอนุกรมวิธานที่ทราบกันว่ายากต่อการจัดอนุกรมวิธาน เช่น C. lutea หรือ C. tubulosa แต่ยังจัดประเภทอนุกรมวิธานที่ถือว่าไม่มีปัญหาทางอนุกรมวิธาน เช่น C . ridgewayana sl หรือCistanchefissa sl (แสดงโดย C. aff. fissa 1 และ 2) ความคลาดเคลื่อนระหว่างหน่วยอนุกรมวิธานและสายวิวัฒนาการอาจเนื่องมาจากปัจจัยหลายอย่างที่ไม่ใช่การแยกจากกัน ซึ่งรวมถึงการระบุสปีชีส์ที่ผิด การขาดการจำแนกอนุกรมวิธานของเอนทิตีที่แตกต่างทางสัณฐานวิทยาและ/หรือทางภูมิศาสตร์ การผสมพันธุ์ และความแตกต่างแบบตื้น (การแผ่รังสีอย่างรวดเร็ว) การระบุชนิดที่ผิดพลาดน่าจะเป็นสาเหตุของตำแหน่งของการภาคยานุวัติของ C. tubulosa (GB1 และ GB2) สองครั้งที่ซ้อนกันใน C. laxiflora (รูปที่ 1) บัตรกำนัลของภาคยานุวัติเหล่านี้ไม่มีให้เราแก้ไข แต่ตามที่ตัดสินจากภาพบนเว็บ พืชจากพื้นที่ใกล้เคียงในทะเลทรายตอนกลางของจีนเห็นด้วยกับ C. laxiflora subsp laxiflora (หลอดกลีบดอกสีขาวที่มีกลีบสีม่วงอ่อนแทนที่จะเป็นสีเหลืองซีดถึงเหลืองเข้มใน C. tubulosa) สายพันธุ์นี้ไม่ได้รับการรายงานจากประเทศจีน ซึ่งพืชที่เกี่ยวข้องกับอนุกรมวิธานนี้อยู่ภายใต้ C. tubulosa (Zhang, 1990) หรือล่าสุดคือ C. mongolica (Zhang and Tzvelev, 1998) การขาดการรับรู้อนุกรมวิธานของเชื้อสายที่แตกต่างกันทางสัณฐานวิทยาและ/หรือทางภูมิศาสตร์ดูเหมือนจะใช้ทั้งกับสปีชีส์ paraphyletic เช่น C. ridgewayana sl และ C. aff fissa เช่นเดียวกับสายพันธุ์ monophyletic ที่มีโครงสร้างสายวิวัฒนาการที่แข็งแรงเช่น C. Flava ในแต่ละกรณีเหล่านี้ กลุ่มที่ถูกล้อมรอบโดยสายวิวัฒนาการจะแตกต่างกันไปตามลักษณะทางสัณฐานวิทยาและภูมิศาสตร์ ดังนั้น จึงสมควรได้รับการยอมรับในการจัดอนุกรมวิธาน ทั้งการระบุสปีชีส์ผิดและความละเอียดอนุกรมวิธานไม่เพียงพอเป็นปัญหาทั่วไปใน holoparasitic Orobanchaceae โดยเฉพาะอย่างยิ่งใน Orobanche และจำพวกที่เกี่ยวข้อง (Manen et al., 2004; Schneeweiss et al., 2004a; Schneeweiss et al., 2009; Schneeweiss, 2013)
การผสมพันธุ์เป็นปรากฏการณ์ทั่วไปในไม้ดอก (Rieseberg and Carney, 1998; Payseur and Rieseberg, 2016) และยังมีรายงานสำหรับCistanche. โดยเฉพาะ Beck-Mannagetta (1930) ได้บรรยายถึงลูกผสมระหว่าง C. lutea (ในชื่อ C. tinctoria f. lutea) และ C. violacea ว่าไม่มีสปีชีส์ C. hybrid ลูกผสมเหล่านี้อาจเป็นตัวกลางทางสัณฐานวิทยา เช่นเดียวกับกรณีของภาคยานุวัติ ED686 หรืออาจคล้ายกับพ่อแม่คนใดคนหนึ่ง เช่นเดียวกับกรณีของภาคยานุวัติ ED1012; ภาคยานุวัตินี้เดิมถูกกำหนดเป็น C. violacea แต่เมื่อตรวจสอบใหม่ กระตุ้นโดยตำแหน่งสายวิวัฒนาการภายใน C. lutea sl กลายเป็นลูกผสมเช่นกัน สมมติว่ามารดามีพันธุกรรมของ plastid genome (ดังที่แสดงสำหรับ Orobanchaceae Rhinanthus angustifolius: Vranken and Wesselingh, 2010) ในCistancheการมีอยู่ของไรโบไทป์ ITS ของมารดาใน ED686 ภาคยานุวัติไฮบริด (ไม่พร้อมใช้งานสำหรับภาคยานุวัติ ED1012) จะสอดคล้องกับการก่อตัวของลูกผสมและ/หรือแบ็คครอสรุ่นหลัง ซึ่งส่งผลให้เกิดการจับพลาสติก การดักจับด้วยพลาสติดยังสามารถอธิบายความคลาดเคลื่อนระหว่างเครื่องหมายนิวเคลียร์และพลาสติด ตัวอย่างเช่น C. aff. ทูบูโลซาจากคาบสมุทรอาหรับ มีลักษณะทางสัณฐานแตกต่างกันหลายประการจากการแพร่กระจายของเชื้อ C. tubulosa ก่อตัวเป็นก้อนใกล้กับ C. senegalensis ในชุดข้อมูล ITS แต่ถูกแยกออกเป็นสองกลุ่มที่แตกต่างกันในพลาสติด และการรวมกลุ่มชุดข้อมูลด้วย C. senegalensis (clade H) หรือภาคยานุวัติของ C. tubulosa subsp. tubulosa (clade I; ทั้ง C. senegalensis และ C. tubulosa subsp. tubulosa ก็เกิดขึ้นบนคาบสมุทรอาหรับด้วย)
อีกทางเลือกหนึ่งในการอธิบายความคลาดเคลื่อนระหว่างตำแหน่งสายวิวัฒนาการที่อนุมานจากข้อมูลนิวเคลียร์กับข้อมูลพลาสติดคือการคัดแยกสายเลือดที่ไม่สมบูรณ์ ซึ่งจะส่งผลต่อจีโนมนิวเคลียร์และพลาสติดต่างกันเนื่องจากความแตกต่างในขนาดประชากรที่มีประสิทธิภาพ (ในจีโนมพลาสติดเพียงครึ่งเดียวที่มีขนาดใหญ่เท่ากับในจีโนมนิวเคลียร์ใน กลุ่มเดียวเช่นCistanche). การคัดแยกสายเลือดที่ไม่สมบูรณ์นั้นคาดว่าจะมีความเกี่ยวข้องโดยเฉพาะในกรณีของความแตกต่างแบบตื้นและการแผ่รังสีอย่างรวดเร็ว (Maddison and Knowles, 2006) ซึ่งเห็นได้ชัดว่าเป็นกรณีใน Widespread Clade โดยที่ clade ที่ประกอบด้วย Clades G ถึง J มีลักษณะเป็นกิ่งสั้น (รูปที่ 1). การคัดแยกสายเลือดที่ไม่สมบูรณ์อาจเป็นสาเหตุของการขาดความแตกต่างของโมเลกุลและ/หรือการเชื่อมโยงกันของเชื้อสายที่มีความแตกต่างทางสัณฐานวิทยาภายใน C. lutea sl (เช่น C. aff. lutea 1 และ C. aff. lutea 2) การแยกการแยกประเภทการเรียงลำดับเชื้อสายที่ไม่สมบูรณ์ออกจากการแนะนำจะต้องใช้วิธีการแบบผสมผสาน (Blanco-Pastor et al., 2012) ซึ่งเกี่ยวข้องกับข้อมูลวิวัฒนาการทางวิวัฒนาการของนิวเคลียร์ในอุดมคติ (Bravo et al., 2019) ซึ่งหากไม่มีกรอบการจัดอนุกรมวิธานที่มั่นคงและข้อมูลกว้างขวางเพียงพอจะไม่ เป็นไปได้ยัง
ความเชี่ยวชาญเฉพาะด้านของโฮสต์เป็นพลังวิวัฒนาการที่สำคัญในพืชสกุลโฮโลพาราสิต Orobanchaceae (Schneider et al., 2016)Cistancheอย่างไรก็ตาม ดูเหมือนจะเป็นข้อยกเว้น เนื่องจากมีการค้นพบสปีชีส์หลายชนิดในสมาชิกของตระกูลพืชหลายชนิด ส่วนใหญ่มักเป็นดอกบานไม่รู้โรย (รวม. Chenopodiaceae) และ Polygonaceae แต่ยังรวมถึง Fabaceae, Zygophyllaceae, Tamaricaceae, Rosaceae, Nitrariaceae และ Salvadoraceae เช่นเดียวกับใน Orobanche (Manen et al., 2004) โฮสต์เดียวกันอาจถูกแชร์โดยผู้ไม่เกี่ยวข้องหลายคนCistancheสายพันธุ์ (เช่น Haloxylon ammodendron เป็นเจ้าภาพของ C. deserticola จาก Clade ทางตะวันตกเฉียงใต้ของเอเชียและสำหรับ C. phelypaea จาก Widespread Clade) กรณีของความเชี่ยวชาญเฉพาะด้านของโฮสต์สมมุติ (เช่น C. senegalensis ส่วนใหญ่ใน Acacia/Fabaceae; ส่วนใหญ่เป็น Fabaceae ในฐานะโฮสต์สำหรับ C. Flava subsp. nov. เทียบกับ Calligonum bungei/Polygonaceae สำหรับ C. Flava subsp. Flava) อาจสะท้อนถึงความอุดมสมบูรณ์ของโฮสต์ที่เหมาะสม สายพันธุ์มากกว่าความเชี่ยวชาญเฉพาะด้านโฮสต์ของแท้ การทดสอบบทบาทของความเชี่ยวชาญพิเศษด้านโฮสต์สำหรับความหลากหลายของ Cistanche จะต้องมีลำดับวงศ์ตระกูลของสปีชีส์ที่ได้รับการแก้ไขอย่างดีและข้อมูลโฮสต์ที่มีรายละเอียดเพียงพอ5 บทสรุป
นี่เป็นการวิเคราะห์สายวิวัฒนาการระดับโมเลกุลที่ครอบคลุมครั้งแรกของสกุลพืชชนิดโฮโลปาราซิติกCistancheกระจายอยู่ทั่วไปในพื้นที่แห้งแล้งของโลกเก่า แคลดหลักสี่ภายในCistancheมีการระบุว่าเฉพาะบางส่วนเท่านั้นที่สอดคล้องกับส่วนที่เป็นที่ยอมรับตามประเพณี (Beck Mannagetta, 1930) และโดยทั่วไปแสดงองค์ประกอบทางภูมิศาสตร์ที่แข็งแกร่ง ในขณะที่ Clade ในเอเชียตะวันตกเฉียงใต้แสดงโครงสร้างสายวิวัฒนาการที่แข็งแกร่งระหว่างและบางส่วนภายในสายพันธุ์ (เอเชียตะวันออกและแอฟริกาตะวันตกเฉียงเหนือ Clade เป็นแบบจำเพาะเดียว) ความละเอียดสายวิวัฒนาการใน Widespread Clade มักจะต่ำและขัดขวางโดยความคลาดเคลื่อนระหว่างเครื่องหมายนิวเคลียร์และพลาสติด ซึ่งอย่างน้อยก็บางส่วน เกิดจากการผสมพันธุ์/การแนะนำตัวและ/หรือการคัดแยกสายเลือดที่ไม่สมบูรณ์ หลักฐานสายวิวัฒนาการระดับโมเลกุลและผลการประเมินซ้ำทางสัณฐานวิทยาของCistancheสปีชีส์บ่งชี้ว่าความหลากหลายของสปีชีส์ในCistancheถูกประเมินต่ำไปในขณะนี้ (ดูแท็กซ่าที่ระบุเป็น sp. พ.ย. หรือ subsp. พ.ย. ในข้อความ) แม้ว่าบางสปีชีส์ยังคงต้องถูกรวมไว้ในการศึกษาสายวิวัฒนาการระดับโมเลกุลใดๆ (เช่น C. mauritanica) และจำเป็นต้องมีเครื่องหมายเพิ่มเติมเพื่อแก้ไขความสัมพันธ์ของสปีชีส์ทั้งหมด สมมติฐานทางสายวิวัฒนาการเสียงที่นำเสนอในที่นี้เป็นพื้นฐานที่มีคุณค่าสำหรับการสร้างเซลล์ อนุกรมวิธาน และชีวภูมิศาสตร์อย่างต่อเนื่อง การวิจัยในสกุลนี้

cistanche bienfaits
เงินทุน
งานนี้ได้รับการสนับสนุนบางส่วนโดย SYNTHESYS ซึ่งได้รับทุนสนับสนุนจาก European Community Research Infrastructure Action ภายใต้โครงการ FP7 "Capacities" ที่ Real Jardín Botánico (ES-TAF-1663) เราขอขอบคุณมหาวิทยาลัยบอนน์, OeAD (Österreichische Austauschdienst) และ DAAD (Deutscher Akademischer Austauschdienst) สำหรับการสนับสนุนทางการเงิน
คำแถลงผลงานการประพันธ์ CRediT
Najibeh Ataei: แนวความคิด, การจัดการข้อมูล, การวิเคราะห์อย่างเป็นทางการ, การจัดหาเงินทุน, การสืบสวน, การบริหารโครงการ, การสร้างภาพ, การเขียน - ร่างต้นฉบับ, การเขียน - ทบทวนและแก้ไข Gerald M. Schneeweiss: Conceptualization, Supervision, Writing -review & edit มิเกล แองเจิล การ์เซีย: แหล่งข้อมูล Michael Krug: การวิเคราะห์อย่างเป็นทางการ Marcus Lehnert: การเขียน - ร่างต้นฉบับ JafarValizadeh: แหล่งข้อมูล Dietmar Quandt: Conceptualization, การวิเคราะห์อย่างเป็นทางการ, การบริหารโครงการ, ทรัพยากร, การกำกับดูแล, การเขียน - ทบทวน & แก้ไข
รับทราบ
ขอขอบคุณ Edit Korpinos ผู้ให้ความช่วยเหลือที่ห้องปฏิบัติการ Jodrell ใน Kew และภัณฑารักษ์สมุนไพร (TARI, BM, IRAN, BONN, USB, P, TUH, E, W, KAS, MSB, K, B, G, PEY , M, UG, BR, GUH, MA, WU) สำหรับส่งเงินกู้และรูปถ่าย ขอขอบคุณ Susann Wicke สำหรับการออกแบบไพรเมอร์และการสนับสนุนห้องปฏิบัติการ เราขอขอบคุณ Dr. Hossein Akhani จากมหาวิทยาลัย Tehran และ Mrs. Robabeh Shahi Shavvon จาก Gilan University ที่จัดหาวัสดุ DNA จากอิหร่าน เรารู้สึกขอบคุณ Dr. FedericoLuebert และ Juliana Chacon ที่ Nees Institute สำหรับความคิดเห็นที่เป็นประโยชน์
อ้างอิง:
Álvarez, I. , Wendel, JF, 2003. ลำดับ ITS ของ Ribosomal และการอนุมานสายวิวัฒนาการของพืช มล. ไฟโลเจเน็ต วิวัฒนาการ 29, 417–434. https://doi.org/10.1016/S1055-7903(03)00208-2.
Bailey, CD, Carr, TG, Harris, SA, Hughes, CE, 2003. การแสดงลักษณะเฉพาะของความหลากหลายทางพันธุกรรม nrDNA ของ angiosperm, paralogy และ pseudogenes มล. ไฟโลเจเน็ต วิวัฒนาการ 29, 435–455.
Baldwin, BG, Sanderson, MJ, Porter, JM, Wojciechowski, MF, Campbell, CS, Donoghue, MJ, 1995 ภูมิภาค ITS ของ DNA ไรโบโซมนิวเคลียร์: แหล่งหลักฐานอันมีค่าเกี่ยวกับสายวิวัฒนาการของพืชชั้นสูง แอน. มิสซูรีบอท การ์ด. 82, 247–277.
Beck-Mannagetta, G. , 1930. Orobanchaceae, ใน: Engler, A. (Ed.), Das Pflanzenreich IV. 261. Wilhelm Engelmann, Leipzig, pp. 1–348.
Bennett, JR, Mathews, S., 2006. Phylogeny of the parasitic plant family Orobanchaceae inferred from phytochrome A. Am. เจ บอท. 93, 1039–1051.
Blanco-Pastor, JL, Vargas, P., Pfeil, BE, 2012 การจำลองแบบ Coalescent เผยให้เห็นการผสมข้ามพันธุ์และการเรียงลำดับเชื้อสายที่ไม่สมบูรณ์ในเมดิเตอร์เรเนียน Linaria PLOS ONE 7 (6), e39089.
Borsch, T. , Quandt, D. , 2009. พลวัตของการกลายพันธุ์และอรรถประโยชน์ของสายวิวัฒนาการของ DNA คลอโรพลาสต์ที่ไม่ได้เข้ารหัส ระบบโรงงาน วิวัฒนาการ 282, 169–199.
Bravo, GA, Antonelli, A., Bacon, CD, Bartoszek, K., Blom, MPK, Huynh, S., Jones, G., Knowles, LL, Lamichhaney, S., Marcussen, T., Morlon, H. , นัคเลห์, แอลเค, อ็อกเซลแมน,
B. , Pfeil, B. , Schliep, A. , Wahlberg, N. , Werneck, FP, Wiedenhoeft, J. , WillowsMunro, S. , Edwards, SV, 2019. โอบกอดความแตกต่าง: รวมต้นไม้แห่งชีวิตและอนาคตของ สายวิวัฒนาการ PeerJ 7, e6399.
Doyle, JJ, Doyle, J., 1987. ขั้นตอนการแยก DNA อย่างรวดเร็วสำหรับเนื้อเยื่อใบสดปริมาณเล็กน้อย ไฟโตเคม วัว. 19, 11–15.
N. Ataei และคณะ สายวิวัฒนาการระดับโมเลกุลและวิวัฒนาการ 151 (2020) 106898 8
Felsenstein, J. , 1981. ต้นไม้วิวัฒนาการจากลำดับดีเอ็นเอ: แนวทางความน่าจะเป็นสูงสุด เจ โมล. วิวัฒนาการ 17, 368–376.
Felsenstein, J. , 1985. ความเชื่อมั่นจำกัดในสายวิวัฒนาการ: แนวทางโดยใช้บูตสแตรป วิวัฒนาการ 39, 783–791
Fu, W. , Liu, X. , Zhang, N. , Song, Z. , Zhang, W. , Yang, J. , Wang, Y. , 2017. การทดสอบสมมติฐานของต้นกำเนิดหลายตัวของ holoparasitic ใน Orobanchaceae: หลักฐานสายวิวัฒนาการ จากสกุลโฮโลปาราซิติกสองสกุลสุดท้าย กลีโดเวียและ
ฟาเซลแลนทัส ด้านหน้า. พืชวิทย์. 8, 1380.
Han, J.-P. , Song, J.-Y. , Liu, C. , Chen, J. , Qian, J. , Zhu, Y.-J. , Shi, L.-C. , Yao, H ., Chen, S.-L., 2010. บัตรประจำตัวของCistancheสายพันธุ์ (Orobanchaceae) ขึ้นอยู่กับลำดับของบริเวณ intergenic plastid psbA-trnH แอคตา ฟาร์มาซูต. บาป. 45, 126–130.
Huelsenbeck, JP, Ronquist, F. , 2001. MRBAYES: การอนุมานแบบเบย์ของต้นไม้สายวิวัฒนาการ ชีวสารสนเทศศาสตร์ 17, 754–755
Kress, WJ, Wurdack, KJ, Zimmer, EA, Weigt, LA, Janzen, DH, 2005 การใช้บาร์โค้ด DNA เพื่อระบุพืชดอก Proc. นัท อคาเด วิทย์. สหรัฐอเมริกา 102, 8369–8374
Li, X. , Feng, T. , Randle, C. , Schneeweiss, GM, 2019 ความสัมพันธ์สายวิวัฒนาการใน Orobanchaceae อนุมานจากยีนนิวเคลียร์สำเนาต่ำ: การรวมกลุ่มของ clades ที่สำคัญและการระบุตำแหน่งใหม่ของ Orobanche clade ที่ไม่สังเคราะห์แสง น้องสาวของ Orobanchaceae ปรสิตอื่น ๆ ทั้งหมด ด้านหน้า. พืชวิทย์. 10, 902.
Li, X. , Jang, T.-S. , Temsch, EM, Kato, H. , Takayama, K. , Schneeweiss, GM, 2017. ข้อมูลระดับโมเลกุลและ karyological ยืนยันว่าสกุล Platypholis ลึกลับจากเกาะ Bonin (SE Japan ) ถูกซ้อนกันในสายวิวัฒนาการภายใน Orobanche
(Orobanchaceae). เจ. แพลนท์. ความละเอียด 130, 273–280.
Li, X., Zhang, T.-C., Qiao, Q., Ren, Z., Zhao, J., Yonezawa, T., Hasegawa, M., Crabbe, MJC, Li, J., Zhong, Y ., 2013. ลำดับจีโนมของคลอโรพลาสต์ที่สมบูรณ์ของ holoparasiteCistancheDeserticola (Orobanchaceae) เผยให้เห็นการสูญเสียยีนและยีนแนวนอน
ย้ายจากเจ้าบ้าน Haloxylon ammodendron (Chenopodiaceae) กรุณาหนึ่ง 8, e58747.
Liu, X. , Fu, W. , Tang, Y. , Zhang, W. , Song, Z. , Li, L. , Yang, J. , Ma, H. , Yang, J. , Zhou, C.,
Davis, CC, Wang, Y., 2020. วิถีการย่อยสลายพลาสโตมที่หลากหลายในโฮโลปาราซิติกCistancheและตำแหน่งจีโนมของยีนพลาสติดที่หายไป เจ. เอ็กซ์พี. บอท. 71, 877–892.
Maddison, W. , Knowles, LL, 2006. อนุมานสายวิวัฒนาการแม้จะเรียงลำดับเชื้อสายไม่สมบูรณ์ ระบบ ไบโอล. 55, 21–30.
Manen, J.-F. , Habashi, C. , Jeanmonod, D. , Park, J.-M. , Schneeweiss, GM, 2004. Phylogeny และ intraspecific variability ของ holoparasitic Orobanche (Orobanchaceae) อนุมานจากลำดับ plastid rbcL มล. ไฟโลเจเน็ต วิวัฒนาการ 33, 482–500.
McNeal, JR, Bennett, JR, Wolfe, AD, Mathews, S. , 2013. Phylogeny และต้นกำเนิดของ holoparasitic ใน Orobanchaceae เป็น. เจ บอท. 100, 971–983.
Müller, J. , Müller, KF, Neinhuis, C. , Quandt, D. , 2006. PhyDE - ตัวแก้ไขข้อมูลสายวิวัฒนาการ http://www.phyde.de (เข้าถึง 2 เมษายน 2019)
Müller, K., 2004. การคำนวณ PRAP ของ Bremer รองรับชุดข้อมูลขนาดใหญ่ มล. ไฟโลเจเน็ต วิวัฒนาการ 31, 780–782.
Müller, K., 2005. SeqState: การออกแบบไพรเมอร์และสถิติลำดับสำหรับชุดข้อมูล DNA สายวิวัฒนาการ แอปพลิเค ไบโออินฟอร์ม 4, 65–69.
Nixon, KC, 1999. Parsimony ratchet เป็นวิธีการใหม่สำหรับการวิเคราะห์ parsimony อย่างรวดเร็ว คลาดิสติกส์ 15, 407–414.
Olsson, S. , Buchbender, V. , Enroth, J. , Hedenäs, L. , Huttunen, S. , Quandt, D. , 2009 การวิเคราะห์สายวิวัฒนาการเผยให้เห็นระดับสูงของ polyphyly ในกลุ่ม pleurocarpous lineages เช่นเดียวกับ clades ใหม่ ไบรโอโลจิสต์ 112, 447–466
Park, J.-M. , Manen, J.-F. , Colwell, AE, Schneeweiss, GM, 2008. กลุ่มยีน plastid ของ Orobanche ปรสิตที่ไม่สังเคราะห์แสง (Orobanchaceae) และสกุลที่เกี่ยวข้อง เจ Plant Res. 121, 365–376.
Payseur, BA, Rieseberg, LH, 2016 มุมมองจีโนมเกี่ยวกับการผสมพันธุ์และการเก็งกำไร มล. อีโคล. 25, 2337–2360.
Quandt, D. , Müller, K. , Huttunen, S. , 2003. การกำหนดลักษณะของภูมิภาคคลอโรพลาสต์ DNA psbTH และอิทธิพลขององค์ประกอบสมมาตรของ dyad ต่อการสร้างสายวิวัฒนาการใหม่ พืชไบโอล. 5, 400–410. https://doi.org/10.1055/s-2003-42715.
Rambaut, A., Drummond, AJ, Xie, D., Baele, G., Suchard, MA, 2018 การสรุปส่วนหลังในสายวิวัฒนาการ Bayesian โดยใช้ Tracer 1.7 ระบบ ไบโอล. 67, 901–904.
Rieseberg, LH, Carney, SE, 1998. การผสมพันธุ์พืช นิวไฟทอล 140, 599–624.
Rodrigues, AG, Colwell, AEL, Stefanovic, S. , 2011. ระบบโมเลกุลของสกุลกาฝาก Conopholis (Orobanchaceae) อนุมานจากลำดับพลาสติดและนิวเคลียร์ เป็น. เจ บอท. 98, 896–908.
Ronquist, F. , Huelsenbeck, JP, 2003. MrBayes 3: การอนุมานสายวิวัฒนาการแบบเบย์ภายใต้แบบจำลองผสม ชีวสารสนเทศศาสตร์ 19, 1572–1574.
Schneeweiss, GM, 2013. ความสัมพันธ์ทางสายวิวัฒนาการและแนวโน้มวิวัฒนาการใน Orobanchaceae ใน Joel, DM, Gressel, J. , Musselman, LJ (บรรณาธิการ), Parasitic Orobanchaceae สปริงเกอร์, เบอร์ลิน ไฮเดลเบิร์ก, หน้า 243–265.
Schneeweiss, GM, Colwell, A., Park, J.-M., Jang, C.-G., Stuessy, TF, 2004a. สายวิวัฒนาการของ holoparasitic Orobanche (Orobanchaceae) อนุมานจากลำดับ ITS นิวเคลียร์ มล. ไฟโลเจเน็ต วิวัฒนาการ 30, 465–478.
Schneeweiss, GM, Frajman, B. , Dakskobler, I. , 2009. Orobanche lycoctoni Rhiner (Orobanchaceae) ซึ่งเป็นพันธุ์ไม้ที่ไม่ค่อยรู้จักของยุโรปกลาง แคนดอเลีย 64, 91–99.
Schneeweiss, GM, Palomeque, T., Colwell, AE, Weiss-Schneeweiss, H., 2004b. จำนวนโครโมโซมและวิวัฒนาการของคาริโอไทป์ในโฮโลพาราซิติก Orobanche (Orobanchaceae) และสกุลที่เกี่ยวข้อง เป็น. เจ บอท. 91, 439–448.
Schneider, AC, Colwell, AEL, Schneeweiss, GM, Baldwin, BG, 2016. ความหลากหลายเฉพาะโฮสต์ที่ลึกลับในหมู่ไม้กวาดในซีกโลกตะวันตก (Orobanche sl, Orobanchaceae) แอน. บอท. 118, 1101–1111.
Simmons, MP, Ochoterena, H. , 2000. ช่องว่างเป็นอักขระในการวิเคราะห์สายวิวัฒนาการตามลำดับ ระบบ ไบโอล. 49, 369–381.
Stamatakis, A., 2014. RAxML เวอร์ชัน 8: เครื่องมือสำหรับการวิเคราะห์สายวิวัฒนาการและการวิเคราะห์หลังการวิเคราะห์สายวิวัฒนาการขนาดใหญ่ ชีวสารสนเทศศาสตร์ 30, 1312–1313.
Stöver, BC, Müller, KF, 2010. TreeGraph 2: การรวมและการแสดงภาพหลักฐานจากการวิเคราะห์สายวิวัฒนาการต่างๆ บีเอ็มซี ไบโออินฟ์ 11, 7
Sun, ZY, Song, JY, Yao, H., Han, JP, 2012. การระบุโมเลกุลของCistanchesHerba และสารเจือปนตามลำดับ nrITS2 เจ เมด ความละเอียดของพืช 6, 1041–1045.
Swofford, DL, 1999. PAUP*4.0 เบต้าสำหรับ Macintosh: การวิเคราะห์สายวิวัฒนาการโดยใช้ Parsimony Sinauer Associates, ซันเดอร์แลนด์, แมสซาชูเซตส์
Taberlet, P. , Gielly, L. , Pautou, G. , Bouvet, J. , 1991. ไพรเมอร์สากลสำหรับการขยายดีเอ็นเอของคลอโรพลาสต์ที่ไม่มีการเข้ารหัสสามส่วน พืชโมล ไบโอล. 17, 1105–1109.Tomari, N. , Ishizuka, Y. , Moriya, A. , Kojima, S. , Deyama, T. , Coskun, M. , Tu, P.,
Mizukami, H. , 2003. การศึกษาทางเภสัชวิทยาของความสัมพันธ์สายวิวัฒนาการของ Cistanchis Herba (IV) ของCistancheพืชที่อยู่บนพื้นฐานของยีน plastid rps2 และ rpl16-rpl14 ลำดับของบริเวณตัวเว้นระยะระหว่างยีน ธรรมชาติ. เมดิ. 57, 233–237.
Tomari, N. , Ishizuka, Y. , Moriya, A. , Kojima, S. , Deyama, T. , Mizukami, H. , Tu, P. , 2002. การศึกษาทางเภสัชวิทยาของ Cistanchis Herba (III) ความสัมพันธ์สายวิวัฒนาการของCistancheพืชที่อยู่บนพื้นฐานของยีน plastid rps2 และ rpl16-rpl14 ลำดับตัวเว้นระยะระหว่างยีน ไบโอล. เภสัช. วัว. 25, 218–222.
Vranken, J. , Wesselingh, RA, 2010. การสืบทอดจีโนมคลอโรพลาสต์ใน Rhinanthus angustifolius (Orobanchaceae) พืชอีโคล. วิวัฒนาการ 143, 239–242.
Wang, X.-Y. , Xu, R. , Chen, J. , Song, J.-Y. , Newmaster, SG, Han, J.-P. , Zhang, Z. , Chen, S.-L. , 2018. การตรวจหาCistanchesHerba (Rou Cong Rong) ผลิตภัณฑ์ยาที่ใช้ลายเซ็นของนิวคลีโอไทด์เฉพาะสายพันธุ์ ด้านหน้า. พืชวิทย์. 9, 1643.
Weiss-Schneeweiss, H. , Greilhuber, J. , Schneeweiss, GM, 2006. วิวัฒนาการขนาดจีโนมใน holoparasitic Orobanche (Orobanchaceae) และจำพวกที่เกี่ยวข้อง เป็น. เจ บอท. 93, 148–156.
Westwood, JH, Yoder, JI, Timko, MP, dePamphilis, CW, 2010. วิวัฒนาการของปรสิตในพืช เทรนด์พืชวิทย์. 15, 227–235.
White, T. , Bruns, T. , Lee, S. , Taylor, J. , 1990. การขยายและการจัดลำดับโดยตรงของยีน RNA ไรโบโซมของเชื้อราสำหรับสายวิวัฒนาการ ใน: Innis, M. , Gelfand, D. , Shinsky, J. , White, T. (Eds.), PCR Protocols: A Guide to Methods and Applications. เชิงวิชาการ
Press, London, หน้า 315–322.
Wicke, S. , 2013. วิวัฒนาการของจีโนมใน Orobanchaceae. ใน: Joel, DM, Gressel, J. , Musselman, LJ (Eds.), Parasitic Orobanchaceae. สปริงเกอร์, เบอร์ลิน ไฮเดลเบิร์ก, pp. 267–286.
Wicke, S., Müller, KF, dePamphilis, CW, Quandt, D., Wickett, NJ, Zhang, Y., Renner,
SS, Schneeweiss, GM, 2013. กลไกของการลดจีโนมเชิงหน้าที่และทางกายภาพในพืชกาฝากที่สังเคราะห์ด้วยแสงและไม่สังเคราะห์แสงของตระกูลบรูมเรป เซลล์พืช 25, 3711–3725.
Wicke, S., Müller, KF, dePamphilis, CW, Quandt, D., Bellot, S., Schneeweiss, GM, 2016 แบบจำลองกลไกของการแปรผันของอัตราการวิวัฒนาการระหว่างเส้นทางสู่วิถีชีวิตที่ไม่สังเคราะห์แสงในพืช Proc. นัท อคาเด วิทย์. สหรัฐอเมริกา 113, 9045–9050
Wickett, NJ, Honaas, LA, Wafula, EK, Das, M., Huang, K., Wu, B., Landherr, L., Timko, MP, Yoder, J., Westwood, JH, dePamphilis, CW, 2011 . Transcriptomes ของตระกูลพืชกาฝาก Orobanchaceae เผยให้เห็นการอนุรักษ์คลอโรฟิลล์อย่างน่าประหลาดใจ
สังเคราะห์. สกุลเงิน ไบโอล. 21, 2098–2104.
Wolfe, AD, Randle, CP, Liu, L., Steiner, KE, 2005. Phylogeny and biogeography of Orobanchaceae. โฟเลีย จีโอบอท 40, 115–134.
Worberg, A. , Quandt, D. , Barniske, A.-M. , Löhne, C. , Hilu, KW, Borsch, T. , 2007. Phylogeny of eudicots พื้นฐาน: ข้อมูลเชิงลึกจาก DNA ที่ไม่เข้ารหัสและวิวัฒนาการอย่างรวดเร็ว อวัยวะ. นักประดาน้ำ วิวัฒนาการ 7, 55–77.
Young, ND, Steiner, KE, dePamphilis, CW, 1999. วิวัฒนาการของปรสิตใน Scrophulariaceae/Orobanchaceae: ลำดับยีน plastid หักล้างชุดการเปลี่ยนแปลงเชิงวิวัฒนาการ แอน. มิสซูรีบอท การ์ด. 86, 876–893.
Zhang, ZY, 1990. Orobanchaceae ใน: Wang, W. (ed.), Flora Reipublicae Popularis Sinica, vol. 69. Bejing, Science Press, pp. 69–124.
Zhang, ZY, Tzvelev, NN, 1998. Orobanchaceae, ใน: Wu, ZY, Raven, PH (Eds.), Flora of China, vol. 18 (Scrophulariaceae ถึง Gesneriaceae). Science Press, Beijing และ Missouri Botanical Garden Press, St. Louis, MI, pp. 229–243
Zheng, S. , Jiang, X. , Wu, L. , Wang, Z. , Huang, L. , 2014. การเลือกปฏิบัติทางเคมีและทางพันธุกรรมของCistanchesHerba อิงตาม UPLC-QTOF/MS และบาร์โค้ด DNA PLOS ONE 9 (5), e98061.