กลไกระดับโมเลกุลที่เป็นไปได้ของอาการเหนื่อยล้าเรื้อรังในโรคไวรัสระยะไกลและโรคไวรัสอื่นๆ ตอนที่ 2
Oct 12, 2023
โควิดระยะไกลและความเหนื่อยล้าเรื้อรัง
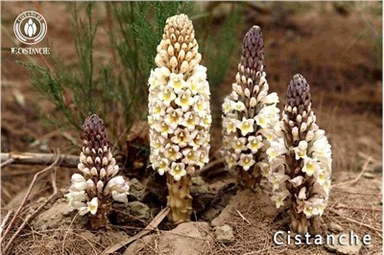
Cistanche สามารถทำหน้าที่เป็นสารต่อต้านความเหนื่อยล้าและเสริมความแข็งแกร่ง และการศึกษาเชิงทดลองแสดงให้เห็นว่ายาต้มของ Cistanche tubulosa สามารถปกป้องเซลล์ตับในตับและเซลล์บุผนังหลอดเลือดที่เสียหายในหนูว่ายน้ำที่มีน้ำหนักมากได้อย่างมีประสิทธิภาพ ควบคุมการแสดงออกของ NOS3 และส่งเสริมไกลโคเจนในตับ การสังเคราะห์จึงออกฤทธิ์ต้านความเมื่อยล้า สารสกัด Cistanche tubulosa ที่อุดมไปด้วยฟีนิลทานอยด์ไกลโคไซด์สามารถลดระดับครีเอทีนไคเนสในซีรั่ม, แลคเตตดีไฮโดรจีเนส และระดับแลคเตตได้อย่างมีนัยสำคัญ และเพิ่มระดับฮีโมโกลบิน (HB) และระดับกลูโคสในหนู ICR และอาจมีบทบาทในการต่อต้านความเหนื่อยล้าโดยการลดความเสียหายของกล้ามเนื้อ และชะลอการเสริมกรดแลคติคเพื่อกักเก็บพลังงานในหนู เม็ด Cistanche Tubulosa แบบผสมช่วยยืดเวลาการว่ายน้ำแบบรับน้ำหนักได้อย่างมีนัยสำคัญ เพิ่มการสำรองไกลโคเจนในตับ และลดระดับยูเรียในซีรั่มหลังการออกกำลังกายในหนู ซึ่งแสดงฤทธิ์ต้านความเมื่อยล้า ยาต้มของ Cistanchis สามารถปรับปรุงความอดทนและเร่งการกำจัดความเหนื่อยล้าในหนูที่ออกกำลังกายและยังสามารถลดระดับความสูงของครีเอทีนไคเนสในซีรั่มหลังการออกกำลังกายอย่างหนักและรักษาโครงสร้างพื้นฐานของกล้ามเนื้อโครงร่างของหนูให้เป็นปกติหลังการออกกำลังกายซึ่งบ่งชี้ว่ามีผลกระทบ เสริมสร้างความแข็งแรงทางร่างกายและต้านความเมื่อยล้า นอกจากนี้ Cistanchis ยังช่วยยืดอายุการรอดชีวิตของหนูที่ได้รับพิษไนไตรท์ได้อย่างมาก และเพิ่มความทนทานต่อภาวะขาดออกซิเจนและความเหนื่อยล้า
คลิกที่ความเหนื่อยล้า
เราจะเหนื่อยไปทำไม? เราจะแก้ไขปัญหาความเหนื่อยล้าได้อย่างไร?
【ติดต่อ】อีเมล: george.deng@wecistanche.com / WhatsApp:008613632399501/Wechat:13632399501
จากประสบการณ์การวิจัยในปัจจุบันของเรา [126] การจัดการกับไวรัส SARS-CoV-2 ในห้องปฏิบัติการถือเป็นประสบการณ์ที่ท้าทายและไม่เหมือนใครเมื่อเปรียบเทียบกับไวรัส RNA อื่นๆ ที่คล้ายคลึงกัน กลไกที่เป็นไปได้ เช่น ความสามารถในการแพร่เชื้อที่เพิ่มขึ้น [127] การหลบหนีของภูมิคุ้มกัน [128] ความล้มเหลวในการวินิจฉัย [129] และประสิทธิภาพของวัคซีนที่ลดลง ส่งผลให้เกิดการพัฒนาสายพันธุ์ใหม่ [130] ซึ่งมีการกลายพันธุ์ที่ค่อนข้างมีนัยสำคัญในโดเมนโปรตีนทั้งสี่ของมัน สไปค์ (S), ซองจดหมาย (E), เมมเบรน (M) และนิวคลีโอแคปซิด (N) การกลายพันธุ์ในโดเมนโปรตีนเหล่านี้แสดงให้เห็นว่าสามารถเปลี่ยนแปลงการติดเชื้อและการแพร่กระจายของเชื้อแต่ละสายพันธุ์ในชุมชนได้ บางทีที่น่ากังวลมากที่สุดคือตัวแปรที่มีการกลายพันธุ์ในโปรตีน S และความสามารถต่อมาของตัวแปรในการหลีกเลี่ยงวัคซีนที่ได้รับการอนุมัติและวิธีการรักษาอื่น ๆ [131] SARS-CoV2 ใช้กลไกหลายชั้นเพื่อทำให้เซลล์โฮสต์เสียหาย (รูปที่ 5) กลไกที่เป็นไปได้เหล่านี้รวมถึงแต่ไม่จำกัดเพียงการจับกับตัวรับ ACE-2 ตามด้วยการทำให้เป็นภายในในเยื่อบุผิวถุงลม [132–134]; การติดเชื้อหลังการมีส่วนร่วมกับโปรตีเอสเมมเบรนโปรตีเอส TMPRSS2 [135, 136]; การอักเสบใน glycocalyx บุผนังหลอดเลือด ตามด้วยการหยุดชะงักของกรดไฮยาลูโรนิก [137]; "การหลุดออก" ของโปรตีนขัดขวาง [138] ตามด้วยการแทรกเข้าไปในเยื่อหุ้มเซลล์โฮสต์ผ่านทางถุงนอก (exosomal vesicles) แพร่กระจายการติดเชื้อผ่านสไปค์ (S), ซองจดหมาย (E) และเยื่อหุ้มเซลล์ (M) โปรตีนที่ปิดล้อม pseudovirions [139]; การถอดรหัสโปรตีนของไวรัสโดยตรงและรวดเร็วจาก RNA สายบวก การบูรณาการของวัสดุยีนกับจีโนมของโฮสต์ [140, 141] เมื่อเข้าสู่เซลล์ตามด้วยการใช้ประโยชน์จากกลไกการสังเคราะห์ยีนของโฮสต์ [142]; เข้าควบคุมกระบวนการเมแทบอลิซึมของเซลล์ในการแปลโปรตีน [143] และการขนส่ง และเพิ่ม "พายุไซโตไคน์" ด้านข้าง [144] ผ่านการสังเคราะห์ไซโตไคน์และคีโมไคน์ที่ทำให้เกิดการอักเสบ (รูปที่ 5) โควิด-19 แสดงผลทางพยาธิวิทยาที่ซับซ้อนและหลากหลาย ซึ่งทำลายอวัยวะเกือบทุกส่วนของร่างกายมนุษย์ ผลที่ตามมาคือ โควิด-19 ไม่เพียงแต่เป็นโรคไวรัสเท่านั้น แต่ความสำคัญทางพยาธิวิทยาของมันอาจขยายไปถึงอาการอักเสบเรื้อรัง [145–148] ภูมิต้านทานตนเอง [149, 150] มะเร็ง [151] และการเสื่อมของระบบประสาท [152–154 ]
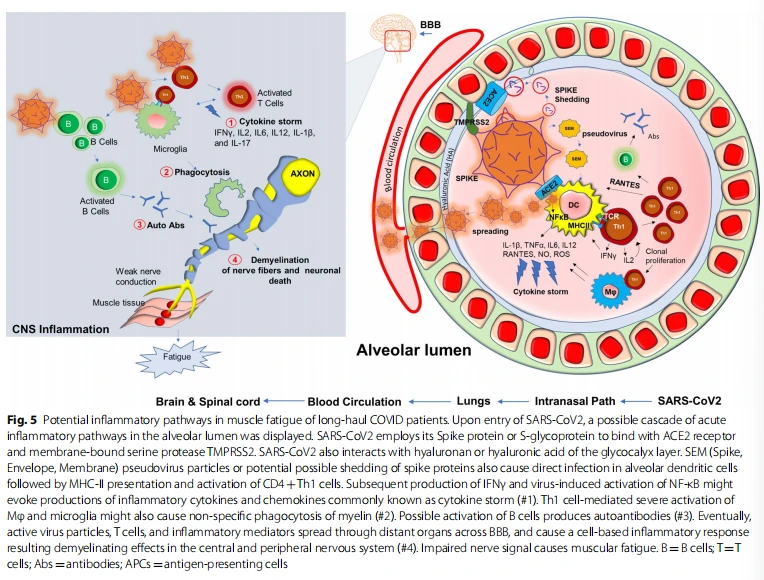
แม้ว่าโควิด-19 มีความเกี่ยวข้องอย่างมากกับการเสียชีวิต แต่ 10% ของผู้รอดชีวิตทั้งหมดแสดงอาการทางพยาธิวิทยาเรื้อรังซึ่งรวมถึงไข้ อ่อนแรง และเหนื่อยล้าของกล้ามเนื้อ อาการเหล่านี้เรียกรวมกันว่าเป็นผลสืบเนื่องหลังเฉียบพลันของโควิด-19 (PASC) ที่มักเรียกกันในวรรณคดี และในที่นี้ว่า ผู้ป่วยโรคโควิดระยะไกล (Long haulers) "รถลากระยะไกล" [155] ส่วนใหญ่มีผล PCR เชิงลบสำหรับโรคโควิด-19 [156] แม้ว่าอาการจะยังคงอยู่ก็ตาม แม้ว่ากลไกเบื้องหลังยังไม่ทราบแน่ชัด โดยอิงตามประวัติของโรคที่เกิดจากการอักเสบของไวรัส คาดว่าการควบคุมการตอบสนองของระบบภูมิคุ้มกันแบบปรับตัวที่ผิดปกติ [157, 158] อาจเป็นองค์ประกอบสำคัญอย่างหนึ่งของการลุกลามของโรค การเปิดใช้งานเซลล์ CD4+ T1 เมื่อติดเชื้อ SARS-CoV2 และการผลิตไซโตไคน์ต้านไวรัส IFN- ในเวลาต่อมาอาจเป็นประโยชน์ (25) สำหรับการฆ่าไวรัสในช่วงแรก อย่างไรก็ตามการกระตุ้นทีเซลล์เหล่านี้เป็นเวลานานอาจส่งผลให้เกิดการพัฒนาของการตอบสนองต่อการอักเสบทางพยาธิวิทยา (รูปที่ 5) รวมถึงการผลิตเคมีบำบัดและไซโตไคน์ที่เพิ่มขึ้นจะปล่อยแมคโครฟาจและไมโครเกลียที่ถูกกระตุ้น ปัจจัยที่ละลายได้เหล่านี้รับสมัครและมีส่วนร่วมกับเซลล์ T1 บน microglia ตามด้วยการกระตุ้นของ microglial ซึ่งทำให้เกิดการทำลายเส้นใยประสาท ประสาทสัมผัสอ่อนแอ และอาจเกิดความเมื่อยล้าของกล้ามเนื้อ เพื่อสนับสนุนความเป็นไปได้นั้น ผู้ป่วย SARS-CoV2 อาจประสบกับ "พายุไซโตไคน์" โดยมีลักษณะพิเศษคือการผลิตไซโตไคน์ที่มีการอักเสบเพิ่มขึ้น [159] เช่น IL2, IL12, IFN-, IL6 และ TNF รายงานผู้ป่วยหลายรายยังเน้นย้ำถึงการตอบสนองแบบทำลายล้างที่อาจเกิดขึ้น [160–163] ในผู้ป่วยที่ติดเชื้อ SARS-CoV2- กรณีศึกษา [160] เปิดเผยว่าผู้หญิงที่ติดเชื้อ SARS-CoV วัย 54-ปี2- เข้ารับการรักษาในโรงพยาบาลหลังมีอาการชัก การสแกนด้วย MRI เผยให้เห็นรอยโรคที่ทำลายเอนไซม์ในสมองหลายจุด โดยมีความผิดปกติของสารสีขาวในช่องท้องจำนวนมาก นอกจากนี้ยังพบความผิดปกติของสารสีขาวที่มีความเข้มข้นสูงในไขสันหลังส่วนบน ในอีกกรณีหนึ่ง [162] ผู้ป่วย 21-ปีหลังโควิด-19 ซึ่งมีคุณสมบัติตรงตามเกณฑ์ทางคลินิกสำหรับ PASC และโรคโควิดระยะไกล-19 เข้ารับการรักษาเนื่องจากการอาเจียนเป็นระยะๆ และ ไม่สบายตัวมา 4 วัน ภาพ MRI ของสมองในเวลาต่อมาเผยให้เห็นว่ามีรอยโรคแคปซูลภายในด้านหลังทวิภาคีและไขสันหลังอักเสบตามขวางยาวตามยาว (LETM) ในไขสันหลังส่วนบน การรวมหลักฐานที่แสดงให้เห็นถึงการผลิตไซโตไคน์อักเสบที่เกินจริง การตอบสนองแบบทำลายล้างในระบบประสาทส่วนกลาง และบทบาทของการตอบสนองภูมิคุ้มกันแบบปรับตัวที่บกพร่อง (รูปที่ 5) อาจอธิบายอาการที่สังเกตได้ของกล้ามเนื้ออ่อนแรงเรื้อรัง ความผิดปกติทางประสาทสัมผัส ความผิดปกติของการรับรู้และระบบประสาทอัตโนมัติที่ สังเกตได้ในรถลากยาว
แม้ว่าหลักฐานจนถึงปัจจุบันชี้ให้เห็นว่า SARS-CoV2 ส่วนใหญ่สามารถส่งผลกระทบต่อเซลล์หลอดเลือดและภูมิคุ้มกัน [164] แต่การศึกษาการเพาะเลี้ยงเซลล์ในหลอดทดลองเพียงไม่กี่การศึกษายังรายงานคุณสมบัติการรุกล้ำทางระบบประสาทโดยตรงของ SARS-CoV2 ในเซลล์ประสาทที่ได้มาจาก iPSC [165] และเซลล์ต้นกำเนิดของระบบประสาท [166 ] ซึ่งได้รับการพิสูจน์เพิ่มเติมด้วยรายงานที่เสนอแนะการติดเชื้อ SARS-CoV-2 โดยตรงในเซลล์ประสาทในเยื่อหุ้มสมอง [167]
สมมติฐานอีกประการหนึ่งที่เป็นรากฐานของการเกิดโรคของ COVID ในระยะไกลคือการเปลี่ยนแปลงทางชีวเคมีของวิถีเมแทบอลิซึมของไมโตคอนเดรียที่สำคัญ (รูปที่ 6) เช่นเดียวกับเอชไอวี พบการถอดเสียง RNA ของไวรัส SARS-CoV2 [168] ในไมโตคอนเดรียที่เป็นโฮสต์ ดังนั้นจึงแนะนำบทบาทโดยตรงของ SARS-CoV2 ในการปรับการทำงานของไมโตคอนเดรีย ในระหว่างระยะเฉียบพลันของการติดเชื้อไวรัส ดูเหมือนว่า SARS-CoV2 จะแย่งชิงกลไกไมโตคอนเดรียของโฮสต์ เพื่อสนับสนุนการสังเคราะห์ ATP ของไมโตคอนเดรียและการเปลี่ยนแปลงของไมโตคอนเดรียเพื่อความอยู่รอด อย่างไรก็ตาม เป็นที่ทราบกันว่าการติดเชื้อไวรัสเรื้อรังหรือระยะยาวจะทำให้การเผาผลาญพลังงานของไมโตคอนเดรียของการสังเคราะห์ ATP ลดลง ควบคุมการสังเคราะห์และการปลดปล่อยโมเลกุลโปรพอพโทติคเช่น Bax, Bad และ cytochrome C; และเพิ่มการผลิต ROS ในทำนองเดียวกัน การติดเชื้อไวรัสตับอักเสบซีเรื้อรังจะบั่นทอนการเผาผลาญพลังงานของไมโตคอนเดรียผ่านการยับยั้งกิจกรรม Complex I และ V [175] และลดการเกิดออกซิเดชันของกรดไขมัน [176] การติดเชื้อเอชไอวีเป็นเวลานานยังทำให้เกิดการสลับขั้วของไมโตคอนเดรีย การผลิต ROS และการกระตุ้นแคสเพส 3 ซึ่งส่งเสริมการตายของไมโตคอนเดรียแบบเร่ง [177] การติดเชื้อ SARS-CoV2 แบบเรื้อรังยังดูเหมือนจะกระตุ้นให้เกิดวิถีการผลิตพลังงานทดแทนของไกลโคไลซิสแบบไม่ใช้ออกซิเจนและการผลิตแลคเตต [178] ดังนั้นจึงทำให้กล้ามเนื้ออ่อนแรงได้ (รูปที่ 6)


การอักเสบของระบบประสาทใน ME/CFS
แม้ว่าเชื่อกันว่าการอักเสบของระบบประสาทมีบทบาทสำคัญในการเกิดโรคของ ME / CFS แต่กลไกระดับโมเลกุลยังคงเข้าใจยาก การศึกษาในมนุษย์ที่มีวัตถุประสงค์เพื่อประเมินการมีส่วนร่วมของสายพันธุ์การอักเสบใน ME/ CFS มีจำกัด ส่วนใหญ่เนื่องมาจากความยากลำบากในการได้รับตัวอย่างน้ำไขสันหลัง และการขาดการศึกษาเกี่ยวกับการถ่ายภาพแบบไม่รุกรานที่ได้รับการสนับสนุนอย่างเหมาะสมในกลุ่มที่ได้รับการตรวจสอบความถูกต้อง [179] การศึกษาเฉพาะกรณีและควบคุมที่ประเมินน้ำไขสันหลังที่เก็บจากผู้ป่วย ME/CFS เมื่อเปรียบเทียบกับตัวอย่างเครื่องเปรียบเทียบ MS บ่งชี้ว่ารูปแบบการกระตุ้นภูมิคุ้มกันของระบบประสาทส่วนกลางถูกรบกวนอย่างเห็นได้ชัดในผู้ป่วย ME/CFS โดยมีระดับความสูงของ CCL1 (อีโอแทกซิน) ที่ระบุไว้ และความสัมพันธ์แบบผกผันระหว่างคู่อริของตัวรับ interleukin 1 และปัจจัยกระตุ้นโคโลนี 1, ปัจจัยกระตุ้นโคโลนี 2 และอินเตอร์ลิวคิน 17F โดยไม่มีผลกระทบต่ออินเตอร์ลิวคิน 1 หรืออินเตอร์ลิวคิน 1 นอกจากนี้ การศึกษา [180] ประเมิน CSF ของผู้ป่วย ME/CFS ซึ่งชี้ให้เห็นว่าการควบคุมระบบภูมิคุ้มกันที่ผิดปกติของระบบประสาทส่วนกลางในผู้ป่วย ME/CFS สามารถมีส่วนทำให้เกิดโรคได้โดยตรง สิ่งนี้บ่งบอกถึงการรบกวนในการส่งสัญญาณ interleukin 1 [181–183] สิ่งที่น่าสนใจคือการศึกษาหลายชิ้นที่ประเมินรูปแบบการแสดงออกของไซโตไคน์ในเลือดรอบนอกของผู้ป่วย ME/CFS บ่งชี้ถึงลายเซ็นที่ค่อนข้างสม่ำเสมอของการกระตุ้นการทำงานของไซโตไคน์ในการอักเสบและรูปแบบเซลล์ T helper โดยรวมประเภท 1 ที่เกี่ยวข้องกับการกระตุ้นภูมิคุ้มกัน [184–189]
จากวรรณกรรมที่ตีพิมพ์ของเรา [190] เซรั่ม ME/CFS ทำให้เกิดการผลิต ROS และไนไตรต์ในเซลล์ microglial ที่เพาะเลี้ยง การวิเคราะห์ระดับโมเลกุลเพิ่มเติมเผยให้เห็นว่าการผลิต ROS ที่เกิดจากซีรั่ม ME/CFS อาจเนื่องมาจากการมีส่วนร่วมของตัวรับสำหรับผลิตภัณฑ์ขั้นสุดท้ายของไกลเคชั่นขั้นสูงหรือ RAGE การศึกษาของเรายังเน้นย้ำว่าผู้ป่วย ME/CFS อาจแสดงให้เห็นถึงความบกพร่องของการกินอัตโนมัติซึ่งทำให้เกิดการควบคุมซีรัมของเครื่องหมายการกินอัตโนมัติที่แตกต่างกัน รวมถึง ATG13 และ alpha-synuclein เป็นที่รู้กันว่า Alpha-synuclein กระตุ้นการทำงานของจุลินทรีย์ [191–193] ทั้ง oligomeric [194] และ S129P [195] alpha-synucleins ทำให้เกิดการอักเสบของระบบประสาท การด้อยค่าของการกินอัตโนมัติทำให้เกิดการเผาผลาญของไมโตคอนเดรียและการผลิตพลังงานโดยตรง การศึกษาล่าสุดยังเน้นย้ำถึงบทบาทของ CD4+ve และ CD8+การกระตุ้นทีเซลล์ในการเกิดโรคของ ME/CFS [187] มันดาราโน และคณะ ได้แสดงให้เห็นว่าในผู้ป่วย ME/CFS ทั้ง CD4 และ CD8+ ทีเซลล์ลดไกลโคไลซิสและการเผาผลาญพลังงานในไมโตคอนเดรียที่มีข้อบกพร่อง
บทสรุป
โดยสรุป การติดเชื้อไวรัสมักเกี่ยวข้องกับกล้ามเนื้ออ่อนแรง ความเหนื่อยล้า และความเสื่อม เนื่องจากกลไกระดับโมเลกุล การเปลี่ยนแปลงภูมิคุ้มกันแบบปรับตัวจึงเป็นที่ยอมรับกันอย่างกว้างขวาง ไวรัส เช่น EBV [196], HHV6 [197] และ HIV [198] แพร่เชื้อ CD4+T เซลล์ได้โดยตรง ทีเซลล์ที่ติดเชื้อเหล่านี้เพิ่มจำนวนและมีส่วนร่วมในการพูดคุยข้ามกับเซลล์ที่สร้างแอนติเจน (APC) เช่น เซลล์เดนไดรต์, มาโครฟาจ, เซลล์ NK และไมโครเกลีย (ตารางที่ 1) POWV ติดเชื้อแมคโครฟาจโดยตรง Tat crosstalk ช่วยกระตุ้นการผลิตไซโตไคน์ที่อักเสบ, การสรรหาทีเซลล์อักเสบที่ขับเคลื่อนด้วยเคมีบำบัดในระบบประสาทส่วนกลาง, การตายของเซลล์ต้นกำเนิด oligodendroglial, การทำลายล้างของ oligodendroglial, ความผิดปกติของเส้นประสาทในสมองน้อยและไขสันหลังส่งผลให้การส่งผ่าน synaptic ลดลงที่จุดเชื่อมต่อประสาทและกล้ามเนื้อ เช่นเดียวกับระบบประสาทส่วนกลาง การทำลายเส้นประสาทส่วนปลายที่ถูกทำลายนั้นมักพบในโรคไวรัสทุกชนิด ซีดี4+ทีเซลล์ที่ติดเชื้อแสดงกลไกการอักเสบที่คล้ายกันของการแสดงออกของไซโตไคน์ที่ได้รับการควบคุม การกระตุ้นมาโครฟาจ การตายของเซลล์ชวานน์ [199] การทำลายเส้นประสาทส่วนปลาย และความเมื่อยล้าของกล้ามเนื้อ
ในอีกสมมติฐานหนึ่ง ทีเซลล์ที่เป็นพิษต่อเซลล์ CD8+ ที่ติดเชื้อไวรัสจะแทรกซึมเข้าไปในเนื้อเยื่อของกล้ามเนื้อโดยตรง ทำให้เกิดความเสื่อมของกล้ามเนื้อ ซึ่งมักพบในการติดเชื้อ EBV และ POWV อย่างไรก็ตาม ยังไม่ทราบว่า SARS-CoV2 ติดเชื้อโดยตรงที่เซลล์ CD4+ หรือ CD8+ ทีเซลล์หรือไม่ อย่างไรก็ตาม SARS-CoV2 แพร่เชื้อโดยตรงไปยัง APC เช่น มาโครฟาจ เซลล์เดนไดรต์ และไมโครเกลีย ทำให้เกิดการกระตุ้นทีเซลล์ CD4+ และ Cd{10}} ทีเซลล์ เมื่อเปิดใช้งาน ทีเซลล์ที่มีการอักเสบเหล่านี้อาจแทรกซึมเข้าไปในระบบประสาทส่วนกลางและเพิ่มการตอบสนองแบบทำลายล้าง รวมถึงการกระตุ้นด้วยไมโครเกลีย การตายของ OPCs การทำลายเยื่อแบบโอลิโกเดนโดรเกลเลีย การเปลี่ยนแปลงการส่งผ่านไซแนปติกซึ่งนำไปสู่กล้ามเนื้ออ่อนแรง และเหนื่อยล้าในที่สุด นอกจากนั้น เรายังพูดคุยถึงกลไกทางชีวเคมีของการด้อยค่าของไมโตคอนเดรียและการขาดดุลเรื้อรังของการเผาผลาญพลังงานในการเกิดโรคของผลที่ตามมาหลังเฉียบพลันของโควิด-19 เมื่อนำมารวมกัน บทความทบทวนของเราตั้งสมมติฐานความเข้าใจเชิงกลไกเกี่ยวกับความเหนื่อยล้าของกล้ามเนื้อเรื้อรังอันเนื่องมาจากการติดเชื้อไวรัสในระยะยาว

คำย่อ
ME/CFS โรคไขสันหลังอักเสบจากกล้ามเนื้อ/กลุ่มอาการเหนื่อยล้าเรื้อรัง
PASC ผลสืบเนื่องหลังเฉียบพลันของโควิด-19
ไวรัสอีบีวี เอพสเตน-บาร์
HHV6 ไวรัสเริมของมนุษย์ 6
เอชไอวีไวรัสภูมิคุ้มกันบกพร่องของมนุษย์
Mφ Macrophage โควิด-19 โรคติดเชื้อไวรัสโคโรนา 2019
ไม่มีไนตริกออกไซด์
ROS ออกซิเจนชนิดปฏิกิริยา
รับทราบ
งานนี้ได้รับการสนับสนุนจาก Simmaron Research Inc. ซึ่งเป็นองค์กรวิจัย 501C ที่ไม่แสวงหากำไร Incline Village, NV 89451 โดยได้รับทุนจาก Fondation Hesse Sibylla, Quebec, CA
ผลงานของผู้เขียน
AR คิดแนวคิดและออกแบบการทบทวน GG และ AR เขียนบทความบทวิจารณ์ KK, DP และ GA ให้ข้อมูลอินพุตและตรวจทาน ผู้เขียนทั้งหมดอ่านและได้รับการอนุมัติขั้นสุดท้ายที่เขียนด้วยลายมือ.
ความพร้อมใช้งานของข้อมูลและวัสดุ
ไม่มีเอกสารข้อมูลอิเล็กทรอนิกส์ที่เกี่ยวข้องกับบทความนี้ ไม่มีข้อมูลในที่เก็บข้อมูลอิเล็กทรอนิกส์
คำประกาศ
การอนุมัติและยินยอมตามหลักจริยธรรมในการเข้าร่วม
ไม่มีส่วนใดของบทความวิจารณ์นี้ รวมถึงรูปภาพและข้อความที่ได้รับการตีพิมพ์หรือทำซ้ำมาก่อนในหนังสือ บทความ หรือวรรณกรรมที่ได้รับการตีพิมพ์อื่นๆ รูปภาพเป็นต้นฉบับและไม่ได้คัดลอกมาจากแหล่งอื่น
การยินยอมให้ตีพิมพ์
ผู้เขียนทุกคนให้ความยินยอมในการเผยแพร่บทความทบทวนนี้
การแข่งขันความสนใจ
AR, GG, JA และ DP เป็นพนักงานของ Simmaron Research INC ซึ่งเป็นองค์กรวิจัยที่ไม่แสวงหากำไรตาม 501C ผู้เขียนทุกคนประกาศว่าไม่มีผลประโยชน์ในการแข่งขัน
อ้างอิง
1. Rasa S, Nora-Krukle Z, Henning N, Eliassen E, Shikova E, Harrer T, Scheibenbogen C, Murovska M, พรัสตี้ บีเค เครือข่ายยุโรปเกี่ยวกับ MC: การติดเชื้อไวรัสเรื้อรังในโรคไข้สมองอักเสบจากไขสันหลังอักเสบ/กลุ่มอาการเหนื่อยล้าเรื้อรัง (ME/CFS) เจ แปล เมด. 2018;16(1):268.
2. เบทแมน แอล, เอซีเบสต์, โบนิลลา HF, Chheda BV, ชู แอล, เคอร์ติน เจเอ็ม, เดมป์ซีย์ ทีที, ดิมม็อค เม, โดเวลล์ ทีจี, เฟลเซนสไตน์ ดี และอื่นๆ โรคไข้สมองอักเสบจากอาการปวดกล้ามเนื้อ/กลุ่มอาการเหนื่อยล้าเรื้อรัง: สิ่งจำเป็นในการวินิจฉัยและการรักษา มาโย คลินิก พรอค. 2021;96(11):2861–78.
3. แวนเนส เจเอ็ม, สตีเวนส์ เอสอาร์, เบทแมน แอล, สไตลส์ TL, สเนลล์ ซีอาร์ อาการไม่สบายหลังออกกำลังกายในสตรีที่มีอาการเหนื่อยล้าเรื้อรัง สุขภาพสตรี J (Larchmt) 2010;19(2):239–44.
4. เมย์ เอ็ม, มิลราด เอสเอฟ, เปอร์โดโม ดีเอ็ม, ซาจา เอสเจ, เฟลตเชอร์ เอ็มเอ, จูตากีร์ DR, ฮอลล์ ดีแอล, คลีมาส เอ็น, อันโตนี เอ็มเอช อาการป่วยไข้หลังออกแรงมีความสัมพันธ์กับภาระอาการที่มากขึ้นและความทุกข์ทรมานทางจิตในผู้ป่วยที่ได้รับการวินิจฉัยว่าเป็นกลุ่มอาการเหนื่อยล้าเรื้อรัง เจ ไซโคสม รีส. 2020;129: 109893.
5. Acharyya S, Villalta SA, Bakkar N, Bupha-Intr T, Janssen PM, Carathers M, Li ZW, Beg AA, Ghosh S, Sahenk Z. การทำงานร่วมกันของการส่งสัญญาณ IKK/NF-κBในแมคโครฟาจและไมโอไฟเบอร์ส่งเสริมการเสื่อมของกล้ามเนื้อใน Duchenne กล้ามเนื้อเสื่อม เจ คลินิก สืบสวน 2007;117(4):889–901.
6. Maes M, Twisk F. เหตุใดอาการไขสันหลังอักเสบ/อาการอ่อนเพลียเรื้อรัง (ME/CFS) อาจคร่าชีวิตคุณได้: ความผิดปกติในวิถีทางการอักเสบและออกซิเดชันและความเครียดไนโตรเซชัน (IO&NS) อาจอธิบายความผิดปกติของระบบหัวใจและหลอดเลือดใน ME/CFS Neuroendocrinol Lett. 2009;30(6):677–93.
7. ราซา เอส, นอร่า-ครูเคิล ซี, เฮนนิ่ง เอ็น, เอเลียสเซ่น อี, ชิโควา อี, แฮร์เรอร์ ที, ไชเบนโบเกน ซี, มูรอฟสก้า เอ็ม, พรัสตี้ บีเค การติดเชื้อไวรัสเรื้อรังในโรคไข้สมองอักเสบจากอาการปวดกล้ามเนื้อ/อาการอ่อนเพลียเรื้อรัง (ME/CFS) เจ แปล เมด. 2018;16(1):1–25.
8. โคมารอฟ อัล, กุปตา เอส, สลิท ไออี อาการเหนื่อยล้าเรื้อรังหลังไวรัส: มุมมองทางไวรัสวิทยาทางการแพทย์ เอลส์เวียร์; 1992. หน้า 235–253.
9. Lopez-Leon S, Wegman-Ostrosky T, Perelman C, Sepulveda R, Rebolledo PA, Cuapio A, Villapol S. ผลกระทบระยะยาวมากกว่า 50 รายการของโควิด-19: การทบทวนอย่างเป็นระบบและการวิเคราะห์เมตา ตัวแทนวิทยาศาสตร์ 2021;11(1):16144.
10. Buchwald D, Cheney PR, Peterson DL, Henry B, Wormsley SB, Geiger A, Ablashi DV, Salahuddin SZ, Saxinger C, Biddle R, และคณะ การเจ็บป่วยเรื้อรังที่มีลักษณะเหนื่อยล้า ความผิดปกติทางระบบประสาทและภูมิคุ้มกัน และการติดเชื้อไวรัสเริมชนิด 6 ในมนุษย์ แอน แพทย์ฝึกหัด. 1992;116(2):103–13.
11. Reeves WC, Pellett PE, Gary H Jr. การโต้เถียงเรื่องอาการเหนื่อยล้าเรื้อรัง แอน แพทย์ฝึกหัด. 1992;117(4):343–4.
12. Kato Y, Kamijima S, Kashiwagi A, Oguri T. กลุ่มอาการอ่อนเพลียเรื้อรัง กรณีของ anti-HHV{2}} antibody titer สูง และอีกกลุ่มหนึ่งเกี่ยวข้องกับ primary hyperaldosteronism นิฮอน รินโช. 1992;50(11):2673–8.
13. Yalcin S, Kuratsune H, Yamaguchi K, Kitani T, Yamanishi K. ความชุกของไวรัสเริมในมนุษย์ 6 สายพันธุ์ A และ B ในผู้ป่วยที่มีอาการเหนื่อยล้าเรื้อรัง ไมโครไบโอล อิมมูนอล 1994;38(7):587–90.
14. Obel N, Høier-Madsen M, Kangro H. การค้นพบทางซีรัมวิทยาและทางคลินิกในผู้ป่วยที่มีหลักฐานทางซีรัมวิทยาของการติดเชื้อไวรัส Epstein – Barr ที่เปิดใช้งานอีกครั้ง APMIS: acta pathologica, microbiologica และ immunologica Scandinavica 1996;104(6):424–8.
15. ปัทไนค์ เอ็ม, โคมารอฟ อัล, คอนลีย์ อี, โอโจ-อาไมซ อีเอ, ปีเตอร์ เจบี ความชุกของแอนติบอดี IgM ต่อแอนติเจนระยะเริ่มแรกของไวรัส Herpesvirus 6 ของมนุษย์ (p41/38) ในผู้ป่วยที่มีอาการเหนื่อยล้าเรื้อรัง เจ โรคติดเชื้อ 1995;172(5):1364–7.
16. Lusso P. HHV-6 และระบบภูมิคุ้มกัน: กลไกของการปรับภูมิคุ้มกันและการหลบหนีของไวรัส เจ คลิน วิโรล. 2006;37(เอกสารเพิ่มเติม 1):S4-10.
17. Iampietro M, Morissette G, Gravel A, Flamand L. การยับยั้งการแสดงออกของยีน interleukin-2 โดยโปรตีน tegument 6B U54 ของไวรัสเริมของมนุษย์ เจ วิโรล. 2014;88(21):12452–63.
18. Li L, Gu B, Zhou F, Chi J, Wang F, Peng G, Xie F, Qing J, Feng D, Lu S, และคณะ ไวรัสเริมของมนุษย์ 6 ยับยั้งการแพร่กระจายของทีเซลล์ผ่านการเหนี่ยวนำการจับกุมวัฏจักรของเซลล์ในเซลล์ที่ติดเชื้อในระยะ G2/M เจ วิโรล. 2011;85(13):6774–83.
19 Wu H, Fu S, Zhao M, Lu L, Lu Q. การควบคุมการตายของเซลล์และกลไก epigenetic ในระบบ lupus erythematosus โมเลกุล 2559;22(1):30.
20. Murray PD, McGavern DB, Pease LR, Rodriguez M. แหล่งที่มาของเซลลูล่าร์และเป้าหมายของการป้องกันที่ใช้สื่อกลาง IFN-แกมมาต่อการทำลายไวรัสและการขาดดุลทางระบบประสาท เอียร์ เจ อิมมูนอล. 2002;32(3):606–15.
21. TD ตัวหนา เอิร์นส์ เจดี การผลิต IFN ที่ขึ้นกับเซลล์ CD4+ โดยทีเซลล์เอฟเฟคเตอร์ CD8+ ในการติดเชื้อมัยโคแบคทีเรียมวัณโรค เจ อิมมูนอล. 2012;189(5):2530–6.
22. อิวาชคิฟ แอล. IFN : การส่งสัญญาณ อีพีเจเนติกส์ และบทบาทต่อภูมิคุ้มกัน เมแทบอลิซึม โรค และการบำบัดด้วยภูมิคุ้มกันโรคมะเร็ง แนท เรอ อิมมูนอล. 2018;18(9):545–58.
23. คูเปอร์ เคเอ็น, บลานท์ ดีจี, ไรลีย์ อีเอ็ม IL-10: ตัวควบคุมหลักของภูมิคุ้มกันต่อการติดเชื้อ เจ อิมมูนอล. 2008;180(9):5771–7.
24. Bortolotti D, Gentili V, Rotola A, Caselli E, Rizzo R. HHV-6การติดเชื้อทำให้เกิดการแสดงออกของอะไมลอยด์-เบต้าและกระตุ้นการทำงานของเซลล์ไมโครเกลีย อัลไซเมอร์เรสเธอ 2019;11(1):104.
25. Jain N, Smirnovs M, Strojeva S, Murovska M, Skuja S. โรคพิษสุราเรื้อรังเรื้อรังและการติดเชื้อ HHV-6 ร่วมกันส่งเสริมฟีโนไทป์ของจุลินทรีย์ที่ทำให้เกิดการอักเสบของระบบประสาทใน substantia nigra ของสมองมนุษย์ที่เป็นผู้ใหญ่ ชีวเวชศาสตร์ 2021;9(9):1216.
26. น็อกซ์ KK, คาร์ริแกน ดร. การติดเชื้อเริมของมนุษย์ที่ทำงานอยู่ (HHV-6) ของระบบประสาทส่วนกลางในผู้ป่วยโรคเอดส์ J ได้รับภูมิคุ้มกัน Defc Syndr Hum Retrovirol 1995;9(1):69–73.
27. Pietilainen-Nicklen J, Virtanen JO, Uotila L, Salonen O, Farkkila M, Koskiniemi M. HHV-6-ผลบวกในโรคที่มีการทำลายเยื่อ เจ คลิน วิโรล. 2014;61(2):216–9.
28 Tanuma N, Miyata R, Nakajima K, Okumura A, Kubota M, Hamano SI, Hayashi M. การเปลี่ยนแปลงของตัวบ่งชี้ทางชีวภาพของน้ำไขสันหลังในไวรัสเริมของมนุษย์-6-ที่เกี่ยวข้องกับโรคไข้สมองอักเสบเฉียบพลัน/อาการชักจากไข้ สื่อลามกอนาจาร 2014;2014:1.
29. แบร์เซโร่ จี, คัมปานินี่ จี, เวเกซซี่ เอ, เปาเล็ตติ เอ็ม, ปิคิเอคคิโอ อา, ซิมอนเชลลี เอเอ็ม, โคลัมโบ เอเอ, แบร์นาสโคนี่ พี, บอร์ซานี่ โอ, ดิ มัตเตโอ อา และอีกมากมาย โรคไข้สมองอักเสบจากเชื้อ Herpesvirus 6 ในมนุษย์ในโฮสต์ที่มีภาวะภูมิคุ้มกันบกพร่องและภูมิคุ้มกันบกพร่อง นิวรอล นิวโรอิมมูนอล นิวโรอินแฟมม์ 2021;8(2):e942.
30. เซิร์ DM. โรคเริมไวรัสของมนุษย์ 6 (HHV-6) ในการปลูกถ่าย Curr Opin โรคติดเชื้อ 2012;25(4):438–44.
31. Pietiläinen-Nicklén J, Virtanen JO, Uotila L, Salonen O, Färkkilä M, Koskiniemi M. HHV-6-ผลเชิงบวกในโรคที่มีการสลายไมอีลิน เจ คลิน วิโรล. 2014;61(2):216–9.
32 Prusty BK, Böhme L, Bergmann B, Siegl C, Krause E, Mehlitz A, Rudel T. ความเครียดออกซิเดชันที่ไม่สมดุลทำให้เกิดการคงอยู่ของหนองในเทียมในระหว่างการติดเชื้อไวรัสเริมของมนุษย์ที่ไม่มีประสิทธิผล กรุณาหนึ่ง 2012;7(10):e47427.
33. Reynaud JM, Horvat B. ไวรัสเริมของมนุษย์ 6 และการอักเสบของระบบประสาท ISRN วิโรล 2013;2013: 834890.
34. พรัสตี้ บีเค, กัลฟ์ เอ็น, โกวินด์ เอส, ครูเกอร์ GRF, ไฟชทิงเงอร์ เจ, ลาร์คอมบ์ แอล, แอสพินอล อาร์, อับลาชิ ดีวี, โทโร ซีที การติดเชื้อ HHV{1}} แบบแอคทีฟของเซลล์ Purkinje ในสมองน้อยในความผิดปกติทางอารมณ์ ไมโครไบโอลด้านหน้า 1955;2018:9.
35. Murakami Y, Tanimoto K, Fujiwara H, An J, Suemori K, Ochi T, Hasegawa H, Yasukawa M. การติดเชื้อเริมของมนุษย์ 6 บั่นทอนการส่งสัญญาณเหมือนตัวรับ วิโรล เจ. 2010;7(1):1–5.

36. Reynaud JM, Jégou JF, Welsch JC, Horvat B. การติดเชื้อ herpesvirus 6A ของมนุษย์ในหนูพันธุ์ CD46: การคงอยู่ของไวรัสในสมองและเพิ่มการผลิต chemokines proflammation ผ่าน Toll-like receptor 9. J Virol 2014;88(10):5421–36.
37. Horvat RT, Wood C, Josephs SF, Balachandran N. การทรานแอกติเวตของโปรโมเตอร์ไวรัสภูมิคุ้มกันบกพร่องของมนุษย์โดยไวรัสเริม 6 (HHV{2}}) ของมนุษย์ทำให้สายพันธุ์ GS และ Z-29 ใน T lymphocytes หลักของมนุษย์และการจำแนก การทำธุรกรรมชิ้นส่วนของยีน HHV-6(GS) เจ วิโรล. 1991;65(6):2895–902.
38. Mock DJ, Chugh P, Kim B, Pröschel C, Dietrich J, Strathmann F, Blumberg BM, Mayer-Pröschel M. การแสดงลักษณะของ HHV-6 และยีนวัฏจักรของเซลล์ที่เกี่ยวข้องในเซลล์ G1/S ที่เป็นสื่อกลางของไวรัส - การจับกุมวงจรของสารตั้งต้นของ glial วิทยาไวรัสวิทยา 2006;3(1):S65.
39 Campbell A, Hogestyn JM, Folts CJ, Lopez B, Pröschel C, Mock D, MayerPröschel M. การแสดงออกของไวรัสเริมของมนุษย์ 6A การถอดเสียงที่เกี่ยวข้องกับเวลาแฝง U94A ขัดขวางการอพยพของต้นกำเนิด oligodendrocyte ของมนุษย์ ตัวแทนวิทยาศาสตร์ 2017;7(1):3978.
40. Steiner I. การติดเชื้อไวรัสเริมของระบบประสาทส่วนปลาย แฮนด์บ์ คลินิก นิวรอล 2013;115:543–58.
41 Hüfner K, Arbusow V, Himmelein S, Derfuss T, Sinicina I, Strupp M, Brandt T, Theil D. ความชุกของไวรัสเริมของมนุษย์ 6 ในปมประสาทสัมผัสของมนุษย์และการเกิดขึ้นร่วมกับอัลฟาเริมไวรัส เจ นิวโรไวรอล. 2007;13(5):462–7.
42. McLean DM, McQueen EJ, Petite HE, MacPherson LW, Scholten TH, Ronald K. Powassan virus: การสืบสวนภาคสนามทางตอนเหนือของออนตาริโอ 1959 ถึง 1961 Can Med Assoc J. 1962;86(21):971 .
43. Piantadosi A, Rubin DB, McQuillen DP, Hsu L, Lederer PA, Ashbaugh CD, Dufalo C, Duncan R, Thon J, Bhattacharyya S, และคณะ กรณีอุบัติใหม่ของโรคไข้สมองอักเสบจากไวรัสพาวซันในนิวอิงแลนด์: การนำเสนอทางคลินิก การสร้างภาพ และการทบทวนวรรณกรรม คลินิกโรคติดเชื้อ 2016;62(6):707–13.
44. ฟรอสต์ HM, ชอตโฮเฟอร์ AM, Thomm AM, Dupuis AP 2nd, Kehl SC, เครเมอร์ LD, Fritsche TR, Harrington YA, Knox KK หลักฐานทางซีรัมของการติดเชื้อไวรัส Powassan ในผู้ป่วยที่สงสัยว่าเป็นโรค Lyme (1) โรคติดเชื้ออุบัติใหม่ 2017;23(8):1384–8.
45. โคสเตอร์ TM, ทิโมธี พี, มีซ เจเค, ออสบอร์น RA, ฟรอสต์ HM สงสัยว่าติดเชื้อไวรัส Powassan ที่รุกรานระบบประสาทในผู้ป่วยเด็ก คลินิกเมดเรส 2020;18(2–3):95–8.
46. กรีกอร์ชุก เอส, โอซาดา เจ, โทซิลอฟสกี้ เค, ซูลิค เอ, ซูพรีน่า พี, โมเนียสโกมาลินอฟสกา เอ, คอนดรูซิค เอ็ม, สไวเออร์ซบินสกา อาร์, ดูนาจ เจ, แพนเซวิซ เอส, และคณะ ประชากรเม็ดเลือดขาวและการอพยพเข้าสู่ระบบประสาทส่วนกลางในโรคไข้สมองอักเสบจากเห็บ เห็บ เห็บ บอร์นดิส 2020;11(5): 101467.
47. ยู คิว, มัตโควิช เอ, เรแกน-สไตเนอร์ เอส, เดนิสัน เอเอ็ม, ออสบอร์น ร., ซาลามัต เอสเอ็ม กรณีร้ายแรงของโรคไข้สมองอักเสบจากไวรัสพาวซัน เจ Neuropathol Exp Neurol 2020;79(11):1239–43.
48. Fatmi SS, Zehra R, ช่างไม้ DO. ไวรัสพาวซัน โรคที่เกิดจากเห็บกลับมาเกิดใหม่ สาธารณสุขแนวหน้า. 2017;5:342.
49. โฮลบรุค เอ็มอาร์, อารอนสัน เจเอฟ, แคมป์เบลล์ จอร์เจีย, โจนส์ เอส, เฟลด์มันน์ เอช, บาร์เร็ตต์ เอดี. แบบจำลองสัตว์สำหรับไวรัสไข้เลือดออกจากเห็บ-ฟลาวีไวรัสออมสค์ เจ โรคติดเชื้อ 2005;191(1):100–8.
50. คัตชาร์ เค, ดรูอิน EE, สเตียร์ เอซี เซลล์นักฆ่าตามธรรมชาติและทีเซลล์นักฆ่าตามธรรมชาติในโรคข้ออักเสบ Lyme โรคข้ออักเสบ Res Ther. 2013;15(6):R183.
51 สตริกเกอร์ RB, ปีก EE. เซลล์นักฆ่าตามธรรมชาติในโรค Lyme เรื้อรัง คลินิกวัคซีนอิมมูนอล 2009;16(11):1704.
52. Ye J, Zhu B, Fu ZF, Chen H, Cao S. กลยุทธ์การหลีกเลี่ยงภูมิคุ้มกันของ flaviviruses วัคซีน. 2013;31(3):461–71.
53 Hermance ME, Santos RI, Kelly BC, Valbuena G, Thangamani S. เป้าหมายเซลล์ภูมิคุ้มกันของการติดเชื้อที่ส่วนต่อประสานของเห็บระหว่างการแพร่เชื้อไวรัส Powassan กรุณาหนึ่ง 2016;11(5): e0155889.
54. Ahantarig A, Růzek D, Vancová M, Janowitz A, St'astná H, Tesarová M, Grubhofer L. การติดเชื้อไวรัสไข้สมองอักเสบที่เกิดจากเห็บของหนูแมคโครฟาจที่เพาะเลี้ยง อินเตอร์ไวรัสวิทยา 2009;52(5):283–90.
55. ดง ซี, เอเดลสไตน์ นพ., กลิคสไตน์ แอลเจ. ทีเซลล์ CD8+ ถูกกระตุ้นในระหว่างการตอบสนองทางภูมิคุ้มกันของ Th1 และ Th2 ในระยะต้นในแบบจำลองโรค Lyme ของหนู ติดเชื้อภูมิคุ้มกัน 1997;65(12):5334–7.
56. วอร์มเซอร์ จีพี, แม็คเคนน่า ดี, สกาวาร์ดา ซี, คูเปอร์ ดี, เอล คูรี มาย, โนวาคอฟสกี้ เจ, สุดฮินดรา พี, ลาเดนไฮม์ เอ, วัง จี, คาร์เมน ซีแอล การติดเชื้อร่วมในผู้ที่เป็นโรค Lyme ในระยะเริ่มแรก รัฐนิวยอร์ก ประเทศสหรัฐอเมริกา โรคติดเชื้ออุบัติใหม่ 2019;25(4):748.
57 Kluczewska E, Pietruszewski J, Marszal E. Neuroimaging ในกระบวนการทำลายล้างเรื้อรังหลังจากโรคไข้สมองอักเสบจากเห็บ นอยรอล นิวโรเชียร์ พล. 2003;37(อาหารเสริม 2):53–61.
58 Neumann B, Schulte-Mattler W, Brix S, Poschl P, Jilg W, Bogdahn U, Steinbrecher A, Kleiter I. การทำงานของระบบประสาทอัตโนมัติและอุปกรณ์ต่อพ่วงในโรคไข้สมองอักเสบเฉียบพลันที่เกิดจากเห็บ พฤติกรรมสมอง 2016;6(8): e00485.
59. แมนเดิล CW. ขั้นตอนของวงจรการจำลองแบบของไวรัสไข้สมองอักเสบที่เกิดจากเห็บซึ่งส่งผลต่อการเกิดโรคทางระบบประสาท ไวรัส Res 2005;111(2):161–74.
60. แจ็คสัน เอซี ขาอ่อนแรงที่เกี่ยวข้องกับการติดเชื้อไวรัส Powassan– ออนแทรีโอ สามารถ Dis Wkly Rep. 1989;15(24):123–4.
61 CfD C. การป้องกัน: การระบาดของโรคไข้สมองอักเสบ Powassan-Maine และ Vermont, 1999-2001 MMWR Morb ตัวแทน Wkly ประจำสัปดาห์. 2001;50(35):761–4.

62 Santos RI, Hermance ME, Gelman BB, Thangamani S. แตรช่องท้องไขสันหลังและการมีส่วนร่วมของอวัยวะน้ำเหลืองในการติดเชื้อไวรัส Powassan ในแบบจำลองเมาส์ ไวรัส 2016;8(8):220.
63. ฮูเวอร์ เอสอี, คาวาดา เจ, วิลสัน ดับเบิลยู, โคเฮน เจไอ การไหลของ Oropharyngeal ของไวรัส Epstein – Barr ในกรณีที่ไม่มีเซลล์ B หมุนเวียน เจ โรคติดเชื้อ 2008;198(3):318–23.
64. เซลล์Küppers R. B ที่อยู่ภายใต้อิทธิพล: การเปลี่ยนแปลงของเซลล์ B โดยไวรัส Epstein – Barr แนท เรอ อิมมูนอล. 2003;3(10):801–12.
65. โบลลาร์ด ซีเอ็ม, โคเฮน เจไอ ฉันจะรักษาโรคไวรัส Epstein – Barr ที่ใช้งานเรื้อรังของ T-cell ได้อย่างไร เลือด. 2018;131(26):2899–905.
66. จัคโมลา เอส, จฮา เอชซี. การตอบสนองของเซลล์ Glial ต่อการติดเชื้อไวรัส Epstein – Barr: การมีส่วนร่วมที่เป็นไปได้ต่อปฏิกิริยาการอักเสบที่เกี่ยวข้องกับไวรัสในสมอง ไวรัสวิทยา 2021;559:182–95.
67. ไวรัส Hassani A, Corboy JR, Al-Salam S, Khan G. Epstein–Barr มีอยู่ในสมองในกรณีส่วนใหญ่ของโรคปลอกประสาทเสื่อมแข็ง และอาจมีส่วนร่วมมากกว่าเซลล์ B กรุณาหนึ่ง 2018;13(2): e0192109.
68. คิม KD, ทานิซาวะ เอช, เด ลีโอ เอ, วลาดิมีโรวา โอ, คอสเซนคอฟ เอ, ลู เอฟ, โชเว แอลซี, โนมา คิ, ลีเบอร์แมน PM ข้อมูลจำเพาะทาง Epigenetic ของไซต์เชื่อมต่อโครโมโซมโฮสต์สำหรับไวรัส Epstein – Barr ที่แฝงอยู่ แนทคอม. 2020;11(1):877.
69. เลย์ JD, Tsao CJ, Chen JY, Kadin ME, Su IJ การควบคุมของยีนเนื้อร้ายเนื้องอก - อัลฟาโดยไวรัส Epstein – Barr และการกระตุ้นของแมคโครฟาจในเซลล์ T ที่ติดเชื้อไวรัส Epstein – Barr ในการเกิดโรคของโรคเม็ดเลือดแดง เจคลินลงทุน 1997;100(8):1969–79.
70 Cahir-McFarland ED, Carter K, Rosenwald A, Giltnane JM, Henrickson SE, Staudt LM, Kief E. บทบาทของ NF-kappa B ในการอยู่รอดของเซลล์และการถอดรหัสโปรตีนเมมเบรนที่แฝงอยู่ 1- การแสดงออกหรือ Epstein – Barr เซลล์ที่ติดไวรัส latency III เจ วิโรล. 2004;78(8):4108–19.
71. Lang HL, Jacobsen H, Ikemizu S, Andersson C, Harlos K, Madsen L, Hjorth P, Sondergaard L, Svejgaard A, Wucherpfennig K. พื้นฐานการทำงานและโครงสร้างของ TCR cross-reactivity ในหลายเส้นโลหิตตีบ แนท อิมมูนอล. 2002;3(10):940–3.
72. โกลต์ซมาน จี, นากอร์นอฟ เอส, ฮอร์วิทซ์ เอ็ม, ราโปพอร์ต เอ็มเจ การติดเชื้อไวรัส Epstein – Barr ในผู้ใหญ่: ความท้าทายในการวินิจฉัย ฮาเรฟัวห์. 2000;138(8):640–3.
73. โคเฮน เจไอ การติดเชื้อไวรัสเอพสเตน-บาร์ N ภาษาอังกฤษ J Med 2000;343(7):481–92.
74 อีเพน เอ็ม, โฮสเตตเตอร์ เอ็ม, เนเกลีย JP. ม้ามโตขนาดใหญ่และโมโนนิวคลีโอซิสติดเชื้อที่เกี่ยวข้องกับไวรัส Epstein-Barr ในผู้ป่วยที่เป็นโรค Gaucher เจ พีเดียตร์ ฮีมาทอล ออนคอล 1999;21(1):47.
75 Shah J, Lingiah V, Pyrsopoulos N, Galan M. การบาดเจ็บที่ตับเฉียบพลันเนื่องจากการติดเชื้อไวรัส Epstein – Barr อย่างรุนแรง ACG Case Rep J. 2020;7(2): e00325.
76. กรอตโตที่ 1, มิมูนี ดี, เฮอร์ตา เอ็ม, มิมูนี เอ็ม, โคเฮน ดี, โรบิน จี, พิทลิค เอส, กรีน MS การนำเสนอทางคลินิกและห้องปฏิบัติการของการติดเชื้อ mononucleosis เชิงบวกของ EBV ในผู้ใหญ่วัยหนุ่มสาว การติดเชื้อ Epidemiol 2003;131(1):683–9.
77. ไวท์ พีดี, โธมัส เจเอ็ม, เอเมส เจ, โกรเวอร์ เอสเอ, แคงโกร โฮ, แคลร์ เอดับบลิว การมีอยู่ของกลุ่มอาการอ่อนเพลียหลังไข้ต่อม ไซโคล เมด. 1995;25(5):907–16.
78. เคอร์ เจอาร์ การควบคุมยีนที่เกิดจากไวรัส Epstein–Barr-2 ระบุชนิดย่อยเฉพาะของกลุ่มอาการเหนื่อยล้าเรื้อรัง/สมองอักเสบจากกล้ามเนื้ออักเสบ กุมารด้านหน้า 2019;7:59.
79 Kerr J. การควบคุมยีนตอบสนองการเจริญเติบโตในระยะเริ่มแรกในไวรัส Epstein-Barr (EBV) ที่เกี่ยวข้องกับโรคไข้สมองอักเสบจากไขสันหลังอักเสบ/อาการเหนื่อยล้าเรื้อรัง (ME/CFS) สารชีวโมเลกุล 2020;10(11):1484.
80 ชไรเบอร์ เอสเอส, ทอคโค จี, ชอร์ส ทีเจ, ทอมป์สัน อาร์เอฟ การกระตุ้นยีนระยะเริ่มแรกทันทีหลังจากความเครียดเฉียบพลัน รายงานประสาท 1991;2(1):17.
81. Knapska E, Kaczmarek L. ยีนสำหรับความเป็นพลาสติกของเส้นประสาทในสมองของสัตว์เลี้ยงลูกด้วยนม: Zif268/Egr-1/NGFI-A/Krox-24/TIS8/ZENK? โปรก นูโรไบโอล 2004;74(4):183–211.
82. บุชวาลด์ ดี, ซัลลิแวน เจแอล, เลดดี้ เอส, โคมารอฟ อัล. กลุ่มอาการการติดเชื้อไวรัส Epstein – Barr เรื้อรังและโรคไขข้ออักเสบ polymyalgia เจ รูมาทอล. 1988;15(3):479–82.
83. บูชวาลด์ ดี, โกลเดนเบิร์ก ดีแอล, ซัลลิแวน เจแอล, โคมารอฟ อัล. กลุ่มอาการการติดเชื้อไวรัส Epstein – Barr เรื้อรังและใช้งานอยู่และ fibromyalgia หลัก โรคข้ออักเสบรูม 1987;30(10):1132–6.
84. โคบายาชิ เอ็น, มิตซุย ที, โอกาวะ วาย, อิริอุจิชิมะ เอช, ทากิซาวะ เอ็ม, โยโกฮาม่า เอ, ไซโตห์ ที, โคอิโซ เอช, สึคาโมโตะ เอ็น, มูราคามิ เอช และอื่นๆ กรณีที่พบไม่บ่อยของการติดเชื้อไวรัส Epstein–Barr (EBV) เรื้อรังที่มีการแทรกซึมของ CD8+ T เซลล์ที่ติดเชื้อ EBV เข้าไปในกล้ามเนื้อ เจ พีเดียตร์ ฮีมาทอล ออนคอล 2018;40(3):e171–5.
85 Ishikawa T, Zhu BL, Li DR, Zhao D, Maeda H. Epstein-Barr ไวรัสกล้ามเนื้อหัวใจอักเสบเป็นสาเหตุของการเสียชีวิตอย่างกะทันหัน: การชันสูตรพลิกศพ 2 กรณี Int J กฎหมาย Med 2005;119(4):231–5.
86 Serafni B, Rosicarelli B, Veroni C, Mazzola GA, Aloisi F. เซลล์ CD8 T เฉพาะไวรัส Epstein-Barr เลือกแทรกซึมเข้าไปในสมองในหลายเส้นโลหิตตีบและมีปฏิสัมพันธ์เฉพาะกับเซลล์ที่ติดไวรัส: เบาะแสสำหรับกลไกทางภูมิคุ้มกันวิทยาที่ขับเคลื่อนด้วยไวรัส เจ วิโรล. 2019;93(24):e00980.
87. Koga M, Fujiwara M, Ariga S, Isumi H, Tashiro N, Matsubara T, Furukawa S. CD8+ T-lymphocytes แทรกซึมเข้าไปในกล้ามเนื้อหัวใจในกล้ามเนื้อหัวใจอักเสบจากไวรัสเริมชนิด fulminant แพทย์กุมารปฎลโมล 2001;20(3):189–95.
88. แอสเชริโอ เอ, มุงเกอร์ เคแอล. EBV และภูมิคุ้มกันอัตโนมัติ Curr Top ไมโครไบโอล อิมมูนอล 2015;390(พอยต์ 1):365–85.
89. เฮาเอน จี, เทรียร์ เอ็นเอช, เฟรเดอริกเซ่น เจแอล. ไวรัส Epstein-Barr และโรคปลอกประสาทเสื่อมแข็ง อิมมูนอลด้านหน้า 2020;11:587078.
90. เพนเดอร์ ส.ส., Csurhes PA, Smith C, Douglas NL, Neller MA, Matthews KK, Beagley L, Rehan S, Crooks P, Hopkins TJ และคณะ การบำบัดด้วยทีเซลล์เฉพาะไวรัส Epstein–Barr สำหรับโรคปลอกประสาทเสื่อมแข็งแบบก้าวหน้า เจซีไอ อินไซท์. 2018.
91. Imran TF, Yick F, Verma S, Estiverne C, Ogbonnaya-Odor C, Thiruvarudsothy S, Reddi AS, Kothari N. Lupus โรคไตอักเสบ: การอัปเดต คลินิก Exp Nephrol 2016;20(1):1–13.
92. ฮาร์เลย์ เจบี, เจมส์ เจเอ การติดเชื้อไวรัส Epstein – Barr ทำให้เกิดภูมิคุ้มกันโรคลูปัส บูล NYU Hosp Jt Dis. 2549;64(1–2):45–50.
93. จิเล็ก เอส, คูห์เล เจ, เมย์ลัน พี, ไรช์ฮาร์ต นพ., ปันตาเลโอ จี, ดู ปาสคิเยร์ RA. โรคไข้สมองอักเสบหลัง EBV รุนแรงที่เกี่ยวข้องกับการตอบสนองของระบบภูมิคุ้มกันเฉพาะของ myelin oligodendrocyte glycoprotein เจ นิวโรอิมมูนอล. 2007;192(1–2):192–7.
94 Grau JM, Masanes F, Pedrol E, Casademont J, Fernandez-Sola J, Urbano-Marquez A. การติดเชื้อไวรัสภูมิคุ้มกันบกพร่องชนิดที่ 1 และผงาด: ความเกี่ยวข้องทางคลินิกของการรักษาด้วย zidovudine แอน นอยรอล. 1993;34(2):206–11.
95. ดัดเจียน ดับบลิวดี, ฟิลลิปส์ เคดี, คาร์สัน เจเอ, บริวเวอร์ RB, ดูร์สติน เจแอล, แฮนด์ จีเอ ต่อต้านการสูญเสียกล้ามเนื้อในผู้ติดเชื้อ HIV ยาเอชไอวี 2006;7(5):299–310.
96. กลุ่ม HIVNSS: กลุ่มอาการอ่อนแรงของระบบประสาทและกล้ามเนื้อที่เกี่ยวข้องกับเอชไอวี โรคเอดส์ 2004;18(10):1403–1412.
97 Gomes-Neto M, Rodriguez I, Ledo AP, Vieira JPB, Brites C. ความแข็งแรงของกล้ามเนื้อและความสามารถในการออกกำลังกายแบบแอโรบิกในผู้ป่วยที่ติดเชื้อ HIV: การทบทวนอย่างเป็นระบบและการวิเคราะห์เมตาดาต้า J ได้รับภูมิคุ้มกัน Defc Syndr 2018;79(4):491–500.
98. Erlandson KM, Schrack JA, Jankowski CM, Brown TT, แคมป์เบลล์ TB ความบกพร่องทางการทำงาน ความพิการ และความอ่อนแอในผู้ใหญ่สูงวัยที่ติดเชื้อเอชไอวี Curr ตัวแทนเอชไอวี/เอดส์ 2014;11(3):279–90.
99. มอร์เจลโล เอส, วูล์ฟ ดี, ก็อดฟรีย์ อี, ไฟน์สไตน์ อาร์, ทาเกลียติ เอ็ม, ซิมป์สัน DM ความผิดปกติของไมโตคอนเดรียในผงาดที่เกี่ยวข้องกับไวรัสภูมิคุ้มกันบกพร่องของมนุษย์ แอกต้า นิวโรพาทอล. 1995;90(4):366–74.
100.เอเจสีขาว. ความเป็นพิษต่อไมโตคอนเดรียและการบำบัดเอชไอวี การติดเชื้อทางเพศสัมพันธ์ 2001;77(3):158–73.
101. Thangaraj A, Periyasamy P, Liao K, Bendi VS, Callen S, Pendyala G, Buch S. HIV-1 การกระตุ้นการทำงานของ microglial ที่ใช้สื่อกลางของ TAT: บทบาทของความผิดปกติของไมโตคอนเดรียและไมโทแฟจีที่มีข้อบกพร่อง การกินอัตโนมัติ 2018;14(9):1596–619.
102. Jacotot E, Ravagnan L, Loefer M, Ferri KF, Vieira HL, Zamzami N, Costantini P, Druillennec S, Hoebeke J, Briand JP, และคณะ โปรตีน R ของไวรัส HIV-1 ชักนำให้เกิดการตายของเซลล์โดยมีผลโดยตรงต่อรูพรุนที่เปลี่ยนผ่านของไมโตคอนเดรีย เจเอ็กซ์พีเมด 2000;191(1):33–46.
103. Deniaud A, Brenner C, Kroemer G. การซึมผ่านของเยื่อไมโตคอนเดรียโดย HIV-1 Vpr. ไมโตคอนเดรีย. 2004;4(2–3):223–33.
104 Lv T, Cao W, Li T. การกระตุ้นภูมิคุ้มกันและการอักเสบที่เกี่ยวข้องกับเอชไอวี: ความเข้าใจและกลยุทธ์ปัจจุบัน เจ อิมมูนอล เรส 2021;2021:7316456.
105. การ์เด้น GA Microglia ในระบบประสาทเสื่อมที่เกี่ยวข้องกับไวรัสภูมิคุ้มกันบกพร่องของมนุษย์ กเลีย. 2002;40(2):240–51.
106. Schlote W. โรคไข้สมองอักเสบเอชไอวี Verh Dtsch Ges Pathol. 1991;75:51–60.
107. Germaniskis L, นักร้อง EJ. เอชไอวีและโรคระบบประสาทส่วนปลาย เจ อินท์ รศ.สฟิสิกส์ แคร์. 1995;1(6):30–3.
108. อควาโร่ เอส, คาลิโอ อาร์, บัลซารินี่ เจ, เบลลอคกี้ เอ็มซี, การาชี่ เอ, แปร์โน ซีเอฟ. ขนาดมหึมาและการติดเชื้อเอชไอวี: แนวทางการรักษาที่มีต่อแหล่งสะสมไวรัสเชิงกลยุทธ์นี้ สารต้านไวรัส 2002;55(2):209–25.
109. Merrill JE, Chen IS HIV-1, มาโครฟาจ, เซลล์เกลีย และไซโตไคน์ในโรคระบบประสาทเอดส์ ฟาเสบ เจ. 1991;5(10):2391–7.
110. เมลลาโด้ เอ็ม, โรดริเกซ-ฟราเด เจเอ็ม, บีลา-โคโร เอเจ, อนา เอเอ็ม, มาร์ติเนซ เอซี เคมีควบคุมการติดเชื้อเอชไอวี-1 ธรรมชาติ. 1999;400(6746):723–4.
111. Blanpain C, Libert F, Vassart G, Parmentier M. CCR5 และการติดเชื้อเอชไอวี ช่องทางการรับ. 2545;8(1):19–31.
112 Roy A, Jana A, Yatish K, Freidt MB, Fung YK, Martinson JA, Pahan K. สายพันธุ์ออกซิเจนที่มีปฏิกิริยาควบคุม CD11b ใน microglia ผ่านไนตริกออกไซด์: ความหมายของโรคทางระบบประสาทเสื่อม ฟรี Radic Biol Med 2008;45(5):686–99.
113. Mangino G, Famiglietti M, Capone C, Veroni C, Percario ZA, Leone S, Fiorucci G, Lulf S, Romeo G, Agresti C และอื่นๆ การรักษา HIV-1 myristoylated nef ของเซลล์ไมโครเกลียของหนูจะกระตุ้นการสังเคราะห์ไนตริกออกไซด์ที่เหนี่ยวนำไม่ได้ การผลิต NO2 และกิจกรรมที่เป็นพิษต่อระบบประสาท กรุณาหนึ่ง 2015;10(6): e0130189.
114. บอร์ราโฮ เอ, สปุช ซี, เปเนโด แมสซาชูเซตส์, โอลิวาเรส เจเอ็ม, อากิส-บัลโบอา อาร์ซี บทบาทสำคัญของไมโครเกลียในเอชไอวี-1-ความผิดปกติทางระบบประสาทและวิถีทางโมเลกุลที่เกี่ยวข้องกับการเกิดโรค แอน เมด. 2021;53(1):43–69.
115. เอซิริ เอ็มเอ็ม, มอร์ริส ซีเอส, มิลลาร์ด พีอาร์. ชะตากรรมของ oligodendrocytes ในการติดเชื้อ HIV-1 เอดส์. 1991;5(9):1081–8.
116 Barateiro A, Brites D, Fernandes A. Oligodendrocyte การพัฒนาและ myelination ในการพัฒนาระบบประสาท: กลไกระดับโมเลกุลในสุขภาพและโรค Curr Pharm Des. 2016;22(6):656–79.
117. Dheen ST, Kaur C, หลิงอีเอ การกระตุ้นการทำงานของจุลินทรีย์และผลกระทบต่อโรคทางสมอง เคอรร์เมดเคม. 2007;14(11):1189–97.
118. เจนเซ่น บีเค, โรธ แอลเอ็ม, กรินสแปน เจบี, จอร์แดน-สคุตโต เคแอล การสูญเสียสารสีขาวและความผิดปกติของ oligodendrocyte ในเอชไอวี: ผลที่ตามมาของการติดเชื้อ การรักษาด้วยยาต้านไวรัส หรือทั้งสองอย่าง? การทำงานของสมอง 2019;1724: 146397.
119. Kaul M. HIV-1 ที่เกี่ยวข้องกับภาวะสมองเสื่อม: อัปเดตเกี่ยวกับกลไกทางพยาธิวิทยาและวิธีการรักษา Curr ความคิดเห็น Neurol 2009;22(3):315–20.
120. Liu H, Xu E, Liu J, Xiong H. Oligodendrocyte การบาดเจ็บและการเกิดโรคของ HIV-1- ที่เกี่ยวข้องกับความผิดปกติทางระบบประสาท วิทย์สมอง 2016;6(3):23
121. สมิธ LK, Babcock IW, มินาไมด์ LS, Shaw AE, แบมเบิร์ก เจอาร์, Kuhn TB ปฏิสัมพันธ์โดยตรงของ HIV gp120 กับตัวรับ CXCR4 และ CCR5 ของเซลล์ประสาททำให้เกิดพยาธิสภาพของแท่งโคฟิลิน - แอกตินผ่านกลไกพรีออนโปรตีนของเซลล์และกลไกที่ขึ้นกับ NOX กรุณาหนึ่ง 2021;16(3): e0248309.
122. Fantuzzi L, Spadaro F, Purifcato C, Cecchetti S, Podo F, Belardelli F, Gessani S, Ramoni C. จำเป็นต้องมีการเปิดใช้งาน Phosphatidylcholine- specific phospholipase C สำหรับการหลั่ง CCL2 ที่ขึ้นกับ CCR5- และ NF-kB-driven CCL2 ออกมาเพื่อตอบสนองต่อ HIV-1 gp120 ในมาโครฟาจปฐมภูมิของมนุษย์ เลือด. 2008;111(7):3355–63.
123 Perl A, Banki K. การควบคุมทางพันธุกรรมและเมตาบอลิซึมของศักยภาพของเยื่อหุ้มเซลล์ไมโตคอนเดรียและการผลิตออกซิเจนปฏิกิริยาขั้นกลางในโรคเอชไอวี สัญญาณรีดอกซ์สารต้านอนุมูลอิสระ 2000;2(3):551–73.
124. Datta G, Miller NM, Afghah Z, Geiger JD, Chen X. HIV-1 gp120 ส่งเสริม lysosomal exocytosis ในเซลล์ Schwann ของมนุษย์ โรคประสาทเซลล์ส่วนหน้า 2019;13:329.
125. Keswani SC, Polley M, Pardo CA, Griffin JW, McArthur JC, Hoke A. Schwann เซลล์ chemokine receptors เป็นสื่อกลางในความเป็นพิษของ HIV-1 gp120 ต่อเซลล์ประสาทรับความรู้สึก แอน นอยรอล. 2003;54(3):287–96.
126. Gottschalk G, Knox K, Roy A. ACE2: จุดตัดของโควิด-19 และมะเร็งปอด ตัวแทนยีน 2021;23: 101077
127. แคมป์เบลล์ F, Archer B, Laurenson-Schafer H, Jinnai Y, Konings F, Batra N, Pavlin B, Vandemaele K, Van Kerkhove MD, Jombart T, และคณะ ความสามารถในการแพร่เชื้อที่เพิ่มขึ้นและการแพร่กระจายทั่วโลกของสายพันธุ์ต่างๆ ที่เป็นข้อกังวลของ SARS-CoV-2 ณ เดือนมิถุนายน 2021 Euro Surveill 2021.
128 Rubio-Casillas A, Redwan EM, Uversky VN. SARS-CoV-2: ผู้เชี่ยวชาญด้านการหลีกเลี่ยงภูมิคุ้มกัน ชีวเวชศาสตร์ 2022;10(6):1339.
129. แอนเดอร์สัน จี, คาซาซานตา ดี, ค็อกคิเอรี เอ, ดากอสติโน เอฟ, เซก้า เอ็ม, ดามิอานี่ จี, เรก้า เอ็มแอล คุณลักษณะการวินิจฉัยของผู้ป่วยที่เป็นบวกกับโรคซาร์ส-โควิด-2-: การทบทวนอย่างรวดเร็วและการวิเคราะห์เมตา เจ คลินิก พยาบาล. 2021;30(13–14):1826–37.
130. Boehm E, Kronig I, Neher RA, Eckerle I, Vetter P, Kaiser L. Novel SARSCoV-2 ตัวแปร: การระบาดใหญ่ภายในการระบาดใหญ่ การติดเชื้อคลิน ไมโครไบโอล 2021;27(8):1109–17.
131 Perrotta F, Matera MG, Cazzola M, Bianco A. การติดเชื้อ SARSCoV2 ทางเดินหายใจอย่างรุนแรง: ตัวรับ ACE2 มีความสำคัญหรือไม่ ยาช่วยหายใจ 2020;168:105996.
132. Carcaterra M, Caruso C. Alveolar epithelial cell type II เป็นเป้าหมายหลักของการพัฒนาไวรัส SARS-CoV-2 และ COVID-19 ผ่านทางการยกเลิกการควบคุมวิถี NF-Kb: ทฤษฎีทางสรีรวิทยาและพยาธิวิทยา สมมติฐานทางการแพทย์ 2021;146: 110412.
133. บริดเจส JP, วลาดาร์ EK, หวง เอช, เมสัน อาร์เจ การตอบสนองของเซลล์เยื่อบุทางเดินหายใจต่อ SARS-CoV-2 ในโรคโควิด-19 ทรวงอก. 2022;77(2):203–9.
134. Gottschalk G, Keating JF, Kesler K, Knox K, Roy A. การบริหารทางจมูกของ ACIS KEPTIDE™ ป้องกัน SARS-CoV2- ความเป็นพิษเฉียบพลันที่เกิดขึ้นใน K18-hACE2 แบบจำลองเมาส์ที่มนุษย์สร้างขึ้นของ COVID{{ 5}}: ข้อมูลเชิงลึกเชิงกลไกสำหรับบทบาทในการป้องกันโรคของ KEPTIDE™ ในโรคโควิด-19 bioRxiv 2020.
135. Zang R, Gomez Castro MF, McCune BT, Zeng Q, Rothlauf PW, Sonnek NM, Liu Z, Brulois KF, Wang X, Greenberg HB, และคณะ TMPRSS2 และ TMPRSS4 ส่งเสริมการติดเชื้อ SARS-CoV-2 ของเอนเทอโรไซต์ในลำไส้เล็กของมนุษย์ วิทย์อิมมูนอล. 2020;5(47):eabc3582.
136. Baughn LB, Sharma N, Elhaik E, Sekulic A, Bryce AH, Fonseca R. กำหนดเป้าหมาย TMPRSS2 ในการติดเชื้อ SARS-CoV-2 มาโย คลินิก พรอค. 2020;95(9):1989–99.
137. อ้นทอง พี, ปราชญ์สิทธิกุล วี. เปิดเผยบทบาทของไฮยาลูโรแนนในโรคโควิดที่รุนแรง-19 EXCLI เจ. 2021;20:117–25.
138. George S, Pal AC, Gagnon J, Timalsina S, Singh P, Vydyam P, Munshi M, Chiu JE, Renard I, Harden CA หลักฐานของโปรตีนขัดขวาง SARS-CoV-2 ในปัสสาวะของผู้ป่วยโควิด-19 medRxiv 2021
139. Wang HI, Chuang ZS, Kao YT, Lin YL, Liang JJ, Liao CC, Liao CL, Lai MMC, Yu CY โปรตีนโครงสร้างขนาดเล็ก E และ M ทำให้ไวรัสเทียม SARS-CoV-2 สามารถแพร่เชื้อได้มากขึ้น และเผยให้เห็นฟีโนไทป์ของไวรัสตามธรรมชาติ Int J โมลวิทย์ 2021;22(16):9087.
140. Xie X, Muruato A, Lokugamage KG, Narayanan K, Zhang X, Zou J, Liu J, Schindewolf C, Bopp NE, Aguilar PV และอื่นๆ โคลน cDNA ที่ติดเชื้อของ SARS-CoV-2 จุลินทรีย์โฮสต์ของเซลล์ 2020;27(5):841–8.
141. Zhang L, Richards A, Barrasa MI, Hughes SH, Young RA, Jaenisch R. Reverse-transcribed SARS-CoV-2 RNA สามารถรวมเข้ากับจีโนมของเซลล์มนุษย์ที่เพาะเลี้ยง และสามารถแสดงออกในเนื้อเยื่อที่ได้มาจากผู้ป่วย . Proc Natl Acad วิทย์ 2021;118(21): e2105968118.
142. V'Kovski P, Kratzel A, Steiner S, Stalder H, Thiel V. ชีววิทยาของไวรัสโคโรนาและการจำลองแบบ: ผลกระทบของ SARS-CoV-2 แนท รีฟ ไมโครไบโอล 2021;19(3):155–70.
143. Finkel Y, Gluck A, Nachshon A, Winkler R, Fisher T, Rozman B, Mizrahi O, Lubelsky Y, Zuckerman B, Slobodin B และอื่นๆ SARS-CoV-2 ใช้กลยุทธ์หลายง่ามเพื่อขัดขวางการสังเคราะห์โปรตีนของโฮสต์ ธรรมชาติ. 2021;594(7862):240–5.
144. แลงเกอร์-โกลด์ เอ, สมิธ เจบี, กอนซาเลส อีจี, คาสติลโล อาร์ดี, ฟิเกโรอา เจจี, รามานาธาน เอ, ลี บีเอช, กูลด์ เอ็มเค การระบุโรคโควิด-19 ไซโตไคน์พายุตั้งแต่เนิ่นๆ และการรักษาด้วยอะนาคินราหรือโทซิลิซูแมบ Int J โรคติดเชื้อ 2020;99:291–7.
145. เช็ตต์ จี, สติเชอร์ลิง เอ็ม, นิวราธ MF. โควิด-19: เสี่ยงต่อไซโตไคน์ที่มุ่งเป้าไปที่โรคอักเสบเรื้อรังหรือไม่ แนท เรอ อิมมูนอล. 2020;20(5):271–2.
146. Chiappetta S, Sharma AM, Bottino V, Stier C. COVID-19 และบทบาทของการอักเสบเรื้อรังในผู้ป่วยโรคอ้วน อินท์ เจ โอเบส (ลอนดอน) 2020;44(8):1790–2.
147. บัตเลอร์ MJ, Barrientos RM. ผลกระทบของโภชนาการต่อความอ่อนแอของโควิด-19 และผลที่ตามมาในระยะยาว ภูมิคุ้มกันพฤติกรรมสมอง 2020;87:53–4.
148 Ouedraogo DD, Tiendrebeogo WJS, Kabore F, Ntsiba H. COVID-19, โรคไขข้ออักเสบเรื้อรัง และการรักษาต้านรูมาติก คลิน รูมาทอล. 2020;39(7):2069–75.
149. Liu Y, Sawalha AH, Lu Q. โควิด-19 และโรคภูมิต้านตนเอง Curr ความคิดเห็น ไขข้ออักเสบ. 2021;33(2):155–62.
150. Gunther C, Aschof R, Beissert S. โรคภูมิต้านตนเองทางผิวหนังระหว่างการระบาดใหญ่ของโควิด-19 J Eur Acad Dermatol Venereol. 2020;34(11):e667–70.
151 Chauhan A, Ghoshal S, Pal A. เพิ่มความไวของการติดเชื้อ SARS-CoV2 ในผู้ป่วยมะเร็งช่องปาก; เหตุและผล: สมมติฐาน สมมติฐานทางการแพทย์ 2020;144: 109987.
152. Khatoon F, Prasad K, Kumar V. อาการทางระบบประสาทของโควิด-19: หลักฐานที่มีอยู่และกระบวนทัศน์ใหม่ เจ นิวโรไวรอล. 2020;26(5):619–30.
153 Gasmi A, Tippairote T, Mujawdiya PK, Gasmi Benahmed A, Menzel A, Dadar M, Bjorklund G. การมีส่วนร่วมทางระบบประสาทของการติดเชื้อ SARS-CoV2 โมล นิวโรไบโอล. 2021;58(3):944–9.
154. Schirinzi T, Landi D, Liguori C. COVID-19: การจัดการกับปัจจัยเสี่ยงที่อาจเกิดขึ้นสำหรับความผิดปกติทางระบบประสาทเรื้อรัง เจ นอยรอล. 2021;268(4):1171–8.
155. Marshall M. ความทุกข์ยากอันยาวนานของผู้ขนส่งทางไกลที่มีไวรัสโคโรนา ธรรมชาติ. 2020;585(7825):339–41.
156 เฟร์นานเดซ-เด-ลาส-เปนาส ซี, ปาลาซิออส-เซน่า ดี, โกเมซ-มายอร์โดโม วี, กัวดราโด้ เอ็มแอล, ฟลอเรนซิโอ แอลแอล. การกำหนดอาการหลังโควิด (โควิดหลังเฉียบพลัน, โควิดระยะยาว, ต่อเนื่องหลังโควิด): การจำแนกประเภทเชิงบูรณาการ Int J Environ Res สาธารณสุข 2021;18(5):2621.
157. Visvabharathy L, Hanson B, Orban Z, Lim PH, Palacio N, Jain R, Liotta EM, Penaloza-MacMaster P, Koralnik IJ รถลากยาวของ Neuro-Covid แสดงความผิดปกติในวงกว้างในการสร้างหน่วยความจำของทีเซลล์และการตอบสนองต่อการฉีดวัคซีน medRxiv 2021
158. Schmidt C. COVID-19 รถลากยาว แนท ไบโอเทคโนล. 2021;39(8):908–13.
159 ร.คริสซาน ดาบิจา, อันโตเฮ ที่ 1, โตรฟอร์ เอ, อันโตนิอู เอสเอ Corticosteroids ในการติดเชื้อ SARSCOV2: ความแน่นอนและความไม่แน่นอนในการปฏิบัติทางคลินิก ผู้เชี่ยวชาญ Rev Anti Infect Ther 2021;19:1–10.
160. ซานิน แอล, ซาราเซโน จี, แพนเชียนี พีพี, เรนิซี จี, ซินญอรินี แอล, มิกลิโอราติ เค, ฟอนตาเนลลา เอ็มเอ็ม SARS-CoV-2 สามารถกระตุ้นให้สมองและกระดูกสันหลังทำลายรอยโรคได้ แอคต้า นิวโรเชียร์ (เวียนนา) 2020;162(7):1491–4.
161 Ismail II, Salama S. Association of CNS demyelination and COVID-19 การติดเชื้อ: การทบทวนอย่างเป็นระบบที่ได้รับการปรับปรุง เจ นอยรอล. 2021;269:541.
162. โซกิ เอ, ราเมซานี เอ็ม, รูซเบห์ เอ็ม, ดาราซัม ไอโอวา, ซาห์ราอัน แมสซาชูเซตส์ กรณีของเหตุการณ์การทำลายล้างผิดปกติของระบบประสาทส่วนกลางที่เป็นไปได้ภายหลังสถานการณ์โควิด-19 Mult Scler สัมพันธ์ Disord 2020;44: 102324.
163. Shabani Z. Demyelination อันเป็นผลมาจากการตอบสนองของภูมิคุ้มกันในผู้ป่วยโรคโควิด-19 แอกต้า นิวรอล เบลเยียม 2021;121(4):859–66.
164. โซโลมอน ที. การติดเชื้อทางระบบประสาทด้วย SARS-CoV-2—เรื่องราวจนถึงตอนนี้ แนท เรฟ นอยรอล. 2021;17(2):65–6.
165. Olivarria GM, Cheng Y, Furman S, Pachow C, Hohsfeld LA, Smith-Geater C, Miramontes R, Wu J, Burns MS, Tsourmas KI และคณะ Microglia ไม่จำกัดการจำลองแบบ SARS-CoV-2 หลังจากการติดเชื้อในระบบประสาทส่วนกลางของหนูดัดแปลงพันธุกรรม K18-hACE2 bioRxiv 2021.
166. Zhang BZ, Chu H, Han S, Shuai H, Deng J, Hu YF, Gong HR, Lee AC-Y, Zou Z, Yau T และอื่นๆ SARS-CoV-2 แพร่เชื้อไปยังเซลล์ต้นกำเนิดของระบบประสาทของมนุษย์และสารอินทรีย์ในสมอง ความละเอียดของเซลล์ 2020;30(10):928–31.
167. ซอง อี, จาง ซี, อิสราเอล บี บี, ลู-คัลลิแกน เอ, ปราโด เอวี, สเกรียไบน์ เอส, ลู พี, ไวซ์แมน OE, หลิว เอฟ, ได วาย, และคณะ การบุกรุกของระบบประสาทของ SARS-CoV-2 ในสมองของมนุษย์และหนู เจเอ็กซ์พีเมด 2021.
168. Singh KK, Chaubey G, Chen JY, Suravajhala P. การถอดรหัส SARS-CoV-2 การแย่งชิงไมโทคอนเดรียของโฮสต์ในการเกิดโรคโควิด-19 แอมเจ ฟิซิออล เซลล์ ฟิสิออล 2020;319(2):C258-c267.
169 Yoshinari S, Hamano S, Ito T, Eto Y. ภาพ MRI-diffusion ถ่วงน้ำหนักของโรคไข้สมองอักเสบที่เกี่ยวข้องกับการติดเชื้อ herpesvirus 6 ของมนุษย์ ไม่นะ ฮัตัตสึ 2005;37(5):374–9.
170. Zhang N, Zuo Y, Jiang L, Peng Y, Huang X, Zuo L. Epstein – Barr ไวรัสและโรคทางระบบประสาท ด้านหน้า โมล บิโอสซี. 2021;8:816098.
171. Cavrois M, Banerjee T, Mukherjee G, Raman N, Hussien R, Rodriguez BA, Vasquez J, Spitzer MH, Lazarus NH, Jones JJ และคณะ การวิเคราะห์ทางไซโตเมทริกจำนวนมากของการเข้ามาของ HIV การจำลองแบบ และการเปลี่ยนแปลงในเนื้อเยื่อ CD4+ ทีเซลล์ ตัวแทนเซลล์ 2017;20(4):984–98.
172. Shen XR, Geng R, Li Q, Chen Y, Li SF, Wang Q, Min J, Yang Y, Li B, Jiang RD, และคณะ การติดเชื้อ ACE2- อย่างอิสระของทีลิมโฟไซต์โดย SARSCoV-2 เป้าหมายการถ่ายโอนสัญญาณ Ther. 2022;7(1):83.
173. Song P, Li W, Xie J, Hou Y, You C. พายุไซโตไคน์ที่เกิดจาก SARS-CoV-2 คลิน ชิม แอคต้า. 2020;509:280–7.
174 Yan L, Jayaram M, Chithanathan K, Zharkovsky A, Tian L. การกระตุ้นการทำงานของจุลินทรีย์เฉพาะทางเพศและการแสดงออกของตัวรับ SARS-CoV-2 ที่เกิดจากความเครียดที่ไม่สามารถคาดเดาได้เรื้อรัง โรคประสาทเซลล์ส่วนหน้า 2021;15: 750373.
175. Gatti P, Ilamathi HS, Todkar K, Germain M. Mitochondria-กำหนดเป้าหมายการจำลองแบบของไวรัสและกลยุทธ์การเอาชีวิตรอด-ในอนาคตสำหรับ SARS-CoV-2 เภสัชหน้า. 2020;11:578599.
176. Dharancy S, Malapel M, Perlemuter G, Roskams T, Cheng Y, Dubuquoy L, Podevin P, Conti F, Canva V, Philippe D, และคณะ การแสดงออกที่บกพร่องของอัลฟ่าตัวรับที่กระตุ้นการทำงานของ peroxisome proliferator ระหว่างการติดเชื้อไวรัสตับอักเสบซี ระบบทางเดินอาหาร. 2005;128(2):334–42.
177. Zhang C, Song JW, Huang HH, Fan X, Huang L, Deng JN, Tu B, Wang K, Li J, Zhou MJ และอื่นๆ การอักเสบของ NLRP3 ชักนำให้เกิดการสูญเสีย CD4+ ทีเซลล์ในผู้ป่วยที่ติดเชื้อ HIV แบบเรื้อรัง-1- เจคลินลงทุน 2021;131(6):e138861.
178. Santos A, Póvoa P, Paixão P, Mendonça A, Taborda-Barata L. การเปลี่ยนแปลงวิถีไกลโคไลติกในการติดเชื้อ SARS-COV 2 และความสำคัญในการทำความเข้าใจความรุนแรงของโควิด-19 เคมีหน้า. 2021;9:685196.
179 Fluge O, Tronstad KJ, Mella O. กลไกทางพยาธิวิทยาและการแทรกแซงที่เป็นไปได้ในโรคไข้สมองอักเสบจากอาการปวดกล้ามเนื้อ/อาการอ่อนเพลียเรื้อรัง (ME/CFS) เจคลินลงทุน 2021.
180. Natelson BH, ผู้ประกอบ SA, Tseng CL, Ottenweller JE ความผิดปกติของน้ำไขสันหลังในผู้ป่วยกลุ่มอาการเหนื่อยล้าเรื้อรัง Clin Diagn Lab อิมมูนอล 2548;12(1):52–5.
181 Hornig M, Gottschalk CG, Eddy ML, Che X, Ukaigwe JE, ปีเตอร์สัน DL, ลิปคิน WI การวิเคราะห์เครือข่ายภูมิคุ้มกันของน้ำไขสันหลังในผู้ป่วยโรคสมองอักเสบจากไขสันหลังอักเสบ/กลุ่มอาการอ่อนเพลียเรื้อรังด้วยการนำเสนอที่ผิดปกติและคลาสสิก แปล จิตเวชศาสตร์. 2017;7(4):e1080.
182. Hornig M, Gottschalk G, Peterson DL, Knox KK, Schultz AF, Eddy ML, Che X, ลิปคิน WI การวิเคราะห์เครือข่ายไซโตไคน์ของน้ำไขสันหลังในโรคไข้สมองอักเสบจากอาการปวดกล้ามเนื้อ/กลุ่มอาการเหนื่อยล้าเรื้อรัง โมลจิตเวช. 2016;21(2):261–9.
183 Peterson D, Brenu EW, Gottschalk G, Ramos S, Nguyen T, Staines D, Marshall-Gradisnik S. Cytokines ในน้ำไขสันหลังของผู้ป่วยที่มีอาการเหนื่อยล้าเรื้อรัง/โรคไข้สมองอักเสบจากกล้ามเนื้อหัวใจตาย สื่อลามกอนาจาร 2015;2015: 929720.
184. เฟลเกอร์ เจซี, โคล SW, ก้าว TW, Hu F, วูลไวน์ BJ, โดโฮ GH, Raison CL, มิลเลอร์ AH ลายเซ็นระดับโมเลกุลของเซลล์โมโนนิวเคลียร์ในเลือดระหว่างการรักษาอินเตอร์เฟอรอน-อัลฟาเรื้อรัง: ความสัมพันธ์กับภาวะซึมเศร้าและความเหนื่อยล้า ไซโคล เมด. 2012;42(8):1591–603.
185 Hornig M, Montoya JG, Klimas NG, Levine S, Felsenstein D, Bateman L, Peterson DL, Gottschalk CG, Schultz AF, Che X, และคณะ ลายเซ็นภูมิคุ้มกันในพลาสมาที่โดดเด่นใน ME/CFS ปรากฏในช่วงต้นของการเจ็บป่วย วิทยาศาสตรบัณฑิต 2558.
186 Maes M. ความเครียดจากการอักเสบและออกซิเดชั่นและไนโตรเซทีฟลดหลั่นเป็นเป้าหมายยาใหม่ในโรคไข้สมองอักเสบจากอาการปวดกล้ามเนื้อและอาการเหนื่อยล้าเรื้อรัง มดเทรนด์เภสัช 2013;28:162–74.
187. มันดาราโน AH, มายา เจ, จิโลเทโอ แอล, ปีเตอร์สัน ดีแอล, เมย์นาร์ด เอ็ม, ก็อตชอล์ก CG, แฮนสัน มิสเตอร์ ผู้ป่วยโรคไข้สมองอักเสบจากอาการปวดกล้ามเนื้อ/กลุ่มอาการเหนื่อยล้าเรื้อรังแสดงการเปลี่ยนแปลงเมแทบอลิซึมของทีเซลล์และความสัมพันธ์ของไซโตไคน์ เจ คลินิก สืบสวน 2020;130(3):1491–505.
188. มอนโตย่า เจจี, โฮล์มส์ TH, แอนเดอร์สัน เจเอ็น, เมคเกอร์ HT, โรเซนเบิร์ก-ฮัสสัน วาย, บาเลนเซีย ไอเจ, ชู แอล, น้องเจดับบลิว, ทาโต้ CM, เดวิส เอ็มเอ็ม ลายเซ็นไซโตไคน์ที่เกี่ยวข้องกับความรุนแรงของโรคในผู้ป่วยกลุ่มอาการเหนื่อยล้าเรื้อรัง Proc Natl Acad Sci สหรัฐอเมริกา ก. 2017;114(34): E7150–8.
189 Morris G, Maes M. ปัจจัยนิวเคลียร์ที่เพิ่มขึ้น-kappaB และการสูญเสีย p53 เป็นกลไกสำคัญในโรคไข้สมองอักเสบจากอาการปวดกล้ามเนื้อ/อาการเหนื่อยล้าเรื้อรัง (ME/CFS) สมมติฐานทางการแพทย์ 2012;79(5):607–13.
190 Gottschalk G, Peterson D, Knox K, Maynard M, Whelan RJ, Roy A. ATG13 ที่เพิ่มขึ้นในซีรั่มของผู้ป่วยที่มี ME/CFS ช่วยกระตุ้นการตอบสนองต่อความเครียดจากปฏิกิริยาออกซิเดชันในเซลล์ microglial ผ่านการกระตุ้นตัวรับสำหรับผลิตภัณฑ์ขั้นปลายไกลเคชันขั้นสูง (RAGE) . โมลเซลล์ Neurosci 2022;120: 103731.
191. Roy A, Rangasamy SB, Kundu M, Pahan K. BPOZ-2 การนำส่งยีนช่วยบรรเทาอาการ alpha-synucleinopathy ในหนูทดลองดัดแปลงพันธุกรรม A53T ของโรคพาร์กินสัน ตัวแทนวิทยาศาสตร์ 2016;6(1):1–14.
192 Sanchez-Guajardo V, Tentillier N, Romero-Ramos M. ความสัมพันธ์ระหว่าง alpha-synuclein และ microglia ในโรคพาร์กินสัน: การพัฒนาล่าสุด ประสาทวิทยา 2015;302:47–58.
193. ออสติน เอสเอ, โฟลเดน AM, เมอร์ฟี่ อีเจ, คอมบ์ส ซีเค การแสดงออกของ Alpha-synuclein จะปรับฟีโนไทป์การกระตุ้นการทำงานของ microglial J Neurosci ของ J Soc Neurosci 2006;26(41):10558–63.
194. Kim C, Ho DH, Suk JE, You S, Michael S, Kang J, Joong Lee S, Masliah E, Hwang D, Lee HJ, และคณะ oligomeric alpha-synuclein ที่ปล่อยออกมาจากเซลล์ประสาทเป็นตัวเอกภายนอกของ TLR2 สำหรับการกระตุ้นพาราครินของ microglia แนทคอม. 2013;4:1562.
195 Samuel F, Flavin WP, Iqbal S, Pacelli C, Sri Renganathan SD, Trudeau LE, Campbell EM, Fraser PE, Tandon A. ผลของซีรีน 129 ฟอสโฟรีเลชั่นต่อการรวมตัวของอัลฟา-ซินโคลิน การเชื่อมโยงของเมมเบรน และการทำให้เป็นภายใน เจ ไบโอล เคม. 2016;291(9):4374–85.
196. Tanita K, Hoshino A, Imadome KI, Kamiya T, Inoue K, Okano T, Yeh TW, Yanagimachi M, ชิราอิชิ A, Ishimura M, และคณะ ความผิดปกติของต่อมน้ำเหลืองที่เกี่ยวข้องกับไวรัส Epstein – Barr δ T-cell ที่เกี่ยวข้องกับการกลายพันธุ์ของ hypomorphic IL2RG กุมารด้านหน้า 2019;7:15.
197. Phan TL, Pritchett JC, Leifer C, Zerr DM, Koelle DM, Di Luca D, Lusso P. HHV-6การติดเชื้อ B, การสร้างทีเซลล์ใหม่ และโรคกราฟต์เทียบกับโฮสต์หลังการปลูกถ่ายเซลล์ต้นกำเนิดเม็ดเลือด . การขนส่งไขกระดูก 2018;53(12):1508–17.
198. Douek DC, Brenchley JM, Betts MR, Ambrozak DR, Hill BJ, Okamoto Y, Casazza JP, Kuruppu J, Kunstman K, Wolinsky S, และคณะ เอชไอวีจะแพร่เชื้อซีดี4+ ทีเซลล์ที่จำเพาะต่อเอชไอวีได้เป็นพิเศษ ธรรมชาติ. 2002;417(6884):95–8.
199. แรมบุกคานา เอ, คุนซ์ เอส, มิน เจ, แคมป์เบลล์ เคพี, โอลด์สโตน ปริญญาโทบริหารธุรกิจ การกำหนดเป้าหมายเซลล์ Schwann โดยการติดเชื้อ nonlytic arenaviral ยับยั้งการคัดเลือก myelination Proc Natl Acad วิทย์ 2003;100(26):16071–6.
หมายเหตุของผู้จัดพิมพ์
Springer Nature ยังคงเป็นกลางเกี่ยวกับการเรียกร้องเขตอำนาจศาลในแผนที่ที่เผยแพร่และความผูกพันของสถาบัน
【ติดต่อ】อีเมล: george.deng@wecistanche.com / WhatsApp:008613632399501/Wechat:13632399501