ส่วนที่สอง บทบาทหลายแง่มุมของความผิดปกติของไมโทคอนเดรียในท่อไตในการพัฒนาโรคไต
Jun 08, 2023
ไมโตคอนเดรียไบโอเจเนซิส
จำนวนไมโทคอนเดรียเป็นปัจจัยสำคัญของการทำงานของไมโทคอนเดรีย และเป็นกลไกสำคัญในการปรับให้เข้ากับความต้องการพลังงานที่สูงขึ้น (รูปที่ 2) การกำเนิดทางชีวภาพของไมโทคอนเดรียเป็นปัจจัยสำคัญของจำนวนไมโทคอนเดรีย peroxisome proliferator-activated receptor (PPARG) coactivator-1 ของตัวกระตุ้นการถอดรหัส (PGC1a) เป็นตัวควบคุมการถอดรหัสหลักของการกำเนิดไบโอไมโทคอนเดรีย การแสดงออกของ PGC1a ลดลงในไตของผู้ป่วยโรคไตเฉียบพลันและเรื้อรัง [10] หนูที่มีการลบ PCG1a ทางพันธุกรรมนั้นดูมีสุขภาพดีที่การตรวจวัดพื้นฐาน แต่มีความไวต่อการบาดเจ็บเฉียบพลันและเรื้อรังเพิ่มขึ้น [28] ในขณะเดียวกัน PGC1a ที่แสดงออกเฉพาะท่อไตได้รับการปกป้องจากการบาดเจ็บของไตเฉียบพลันและการเกิดพังผืด PGC1a ที่แสดงออกมากเกินไปในเซลล์ทูบูลทำให้การขาดพลังงานกลับคืนสู่สภาพเดิมโดยการปรับปรุงออกซิเดชันของกรดไขมัน [66] นอกจากนี้ PGC1a ยังเพิ่มระดับของเอนไซม์ de novo NAD biosynthetic [28] PGC1a ทำงานร่วมกับปัจจัยการถอดรหัสอื่นๆ เช่น ปัจจัยนิวเคลียร์อีรีทรอยด์ 2-ปัจจัยที่เกี่ยวข้อง 1 (NRF1) และ NRF2 NRF1 และ NRF2 ควบคุมการแสดงออกของหน่วยย่อยของห่วงโซ่การถ่ายโอนอิเล็กตรอนที่เข้ารหัสโดยจีโนมนิวเคลียร์ NRF1 จับกับโปรโมเตอร์และควบคุมการแสดงออกของ TFAM (ปัจจัยการถอดรหัส A ยล) หนูที่น่าพิศวง NRF2 แสดงความเสียหายของเนื้อเยื่อและพังผืดเพิ่มขึ้นในแบบจำลองของโรค [67] TFAM เป็นสิ่งจำเป็นสำหรับการถอดรหัสและการจำลองแบบของยีนที่เข้ารหัสด้วยไมโทคอนเดรีย [68] หนูที่มีการลบ TFAM เฉพาะท่อแสดง OXPHOS ที่ผิดปกติ ภาวะพร่องพลังงาน (ATP ต่ำ) การตายของเซลล์ และพังผืดที่ไต [69] ปัจจัยการถอดรหัสอัลฟาและแกมมาที่เกี่ยวข้องกับเอสโตรเจน (ESRRA, ESRRRG) แสดงให้เห็นว่ามีบทบาทในการควบคุมการกำเนิดไบโอไมโทคอนเดรีย หนูที่มีการลบ ESRRA นั้นมีสุขภาพดีที่การตรวจวัดพื้นฐาน แต่แสดงการบาดเจ็บของท่อที่เพิ่มขึ้นในการตั้งค่าของโรค [70] หนูที่มี ESRRG เฉพาะที่ท่อไตเสียชีวิตจากภาวะไตวายเนื่องจากการฝ่อของเยื่อบุผิว การขยายตัวของท่อไต และการก่อตัวของถุงน้ำ [71] วิธีการทางเภสัชวิทยาได้รับการพัฒนาขึ้นเพื่อฟื้นฟูการกำเนิดทางชีวภาพของไมโทคอนเดรีย เช่น ผ่านเบต้า 2-adrenergic receptor (2AR) agonist, formoterol [72, 73] และ 5-HT1F receptor agonist แบบเลือก, LY344864 [ 74], LY334370 [75, 76]. วิธีนี้แสดงให้เห็นประโยชน์ในการรักษาการบาดเจ็บของไตที่ขาดเลือด

คลิกที่นี่เพื่อผลกระทบของ Cistanche
Mitochondria Dynamics รูปร่าง ขนาด และการหมุนเวียน
รูปร่างและขนาดของไมโตคอนเดรียซึ่งถูกควบคุมโดยฟิชชันและฟิวชั่น เป็นปัจจัยกำหนดการทำงานของไมโทคอนเดรียอีกชนิดหนึ่งที่ไม่ค่อยเข้าใจ (รูปที่ 2) ความผิดปกติในพลวัตของยลได้รับการสังเกตทั้งในสภาวะของโรคเฉียบพลันและเรื้อรัง [77] DRP1 (โปรตีนที่เกี่ยวข้องกับไดนามิน 1) เป็นตัวควบคุมหลักของฟิชชันของไมโทคอนเดรีย การลบ DRP1 หรือ mdivi{8}} ที่เจาะจงเฉพาะท่อใกล้เคียง สารยับยั้งทางเภสัชวิทยาของ DRP1 รักษาโครงสร้างของไมโตคอนเดรีย ลดความเครียดออกซิเดชัน และป้องกันการบาดเจ็บของไตที่ขาดเลือดหรือซิสพลาติน การอักเสบ และการตายของเซลล์ [78, 79 ]. Mitofusin (MFN) 1 และ 2 ควบคุมการหลอมรวมของไมโทคอนเดรีย หนูที่มีภาวะพร่อง MFN2 เฉพาะที่ท่อใกล้เคียงแสดงให้เห็นการฟื้นตัวของการทำงานของไตที่เร่งขึ้นและเพิ่มอัตราการรอดชีวิตหลังจากการบาดเจ็บของไตเฉียบพลัน [80]
ไมโทคอนเดรียที่เสียหายหรือเก่าจะถูกย่อยสลายในโปรตีโอโซมหรือผ่านไมโทฟาจี ไมโทฟาจีช่วยให้สามารถย่อยสลายไมโทคอนเดรียที่เสียหายแบบเลือกได้โดยใช้เครื่องจักรดูดเลือด การสูญเสียศักยภาพของเยื่อหุ้มไมโทคอนเดรียทำหน้าที่เป็นตัวกระตุ้นให้เกิดไมโทฟาจี (รูปที่ 3) Mitophagy มีบทบาททั้งในโรคไตเฉียบพลันและเรื้อรัง PINK1 และ PARKIN เป็นตัวกระตุ้น mitophagy ที่สำคัญ การแทรก PINK1 เข้าไปในไมโทคอนเดรียที่มีสุขภาพดีจะทำให้เกิดการแตกแยกของ PARL (โปรตีนคล้ายรูปสี่เหลี่ยมขนมเปียกปูน) ซึ่งเป็นสื่อกลางของ PINK1 และการกำจัดอย่างรวดเร็วโดยเส้นทางที่ขึ้นกับโปรตีโอโซม ภายใต้ความเครียดระดับเซลล์ ไมโทคอนเดรียที่มีข้อบกพร่องและศักยภาพของเยื่อหุ้มเซลล์บกพร่องจะสะสม PINK1 ไว้ในเยื่อหุ้มชั้นนอก PINK1 บนเยื่อไมโทคอนเดรียชั้นนอกจะดึง PARKIN เพื่อสร้างไมโทฟาโกโซม หนูที่น่าพิศวง PINK1 หรือ PARKIN มีไมโทฟาจีต่ำ พัฒนาความเสียหายของไมโตคอนเดรียอย่างรุนแรง การผลิต mtROS ที่สูงขึ้น และการตายของเซลล์ที่เพิ่มขึ้นและการบาดเจ็บของไตหลังการฉีด LPS [81], ซิสพลาติน [82] หรือการผ่าตัด UUO [83] การขาดไมโตคอนเดรียลเมทิลมาโลนิล-โคเอ็นไซม์ เอ มิวเทส (MMUT) เป็นโรคทางเมตาบอลิซึมที่สืบทอดมาซึ่งเกี่ยวข้องกับการบาดเจ็บของไต หนูที่น็อคเอาต์ MMUT ทำให้ PINK ทื่อ1-ซึ่งควบคุมไมโตฟากี ซึ่งนำไปสู่การสะสมของไมโทคอนเดรียที่ผิดปกติ และความผิดปกติของเยื่อบุผิวของไต [84]

Bcl2 ที่ทำปฏิกิริยากับโปรตีน 3 (BNIP3), BNIP3L (NIX) และ FUNDC1 คือตัวรับไมโตฟากีที่เป็นอิสระจาก PINK1/Parkin หนูที่มีการแสดงออกมากเกินไปของ BNIP3 มีการตายของเซลล์ที่ต่ำกว่าและทำให้การบาดเจ็บของไตเฉียบพลันลดลง [85] BNIP3 ถูกควบคุมโดยการถอดรหัสโดยปัจจัยที่เหนี่ยวนำให้เกิดภาวะขาดออกซิเจน 1-alpha (HIF1a) BNIP3 เป็นสื่อกลางที่สำคัญของการตอบสนองเมแทบอลิซึมแบบปรับตัวโดยการควบคุม ROS ของไมโตคอนเดรียผ่านทางไมโทฟาจี [86] การแสดงออกที่มากเกินไปของ NIX โดยเวกเตอร์ adenoviral recombinant ลดการกระจายตัวของไมโตคอนเดรียและการตายของเซลล์ท่อในหนูที่ท้าทายอาหารที่มีโปรตีนสูง [87] หนูที่น็อคเอาต์ FUNDC1 มีระดับ ROS สูงขึ้น การอักเสบเพิ่มขึ้น และการผลิตอีริโทรโพอีตินบกพร่อง [88] บทความล่าสุดแสดงให้เห็นว่า PHB2 (Prohibitin2) เป็นอีกหนึ่งตัวรับไมโทคอนเดรียเมมเบรนภายในไมโทคอนเดรีย [89] การล้มลงของ PHB2 ทำให้ไมโทฟากีลดลงและการตายของเซลล์ที่เพิ่มขึ้น ในขณะที่การแสดงออกของ PHB2 ที่มากเกินไปจะช่วยป้องกันการกระตุ้นจากการอักเสบ [90] นอกจากแบบจำลองทางพันธุกรรมแล้ว การเพิ่มประสิทธิภาพทางเภสัชวิทยาของไมโตฟาจียังแสดงให้เห็นว่ามีประโยชน์อีกด้วย การรักษาด้วย MitoQ (สารต้านอนุมูลอิสระที่กำหนดเป้าหมายของไมโทคอนเดรีย) ปรับปรุงไมโตฟาจีและป้องกันการบาดเจ็บของท่อที่เกิดจากเบาหวาน [41] โคเอ็นไซม์ คิวเท็น (CoQ10) เป็นตัวพาอิเล็กตรอนในระบบหายใจแบบยล การบริหาร CoQ10 ฟื้นฟูไมโทฟาจีในโรคไตจากเบาหวานและปรับปรุงการทำงานของไต [91]
ไดนามิกของไมโตคอนเดรียและการควบคุมคุณภาพมีความสำคัญอย่างยิ่งต่อการทำงานของไต โดยเฉพาะอย่างยิ่งไมโตฟาจีมีบทบาทสำคัญในการกำจัดและรีไซเคิลไมโทคอนเดรียที่เสียหาย การปรับปรุงไมโตฟากีเป็นกลยุทธ์ที่มีศักยภาพในการปรับปรุงสุขภาพของไมโตคอนเดรียและแสดงให้เห็นประโยชน์ในแบบจำลองสัตว์

สารสกัดจาก Cistanche และผง Cistanche
บทบาทของไมโทคอนเดรียในการควบคุมการอักเสบ
ความเสียหายอย่างรุนแรงของไมโทคอนเดรียและความบกพร่องในการกวาดล้างไมโทคอนเดรียสามารถนำไปสู่การรั่วไหลของไมโทคอนเดรียดีเอ็นเอ (mtDNA) เข้าไปในไซโตซอล กลไกที่แน่นอนของการรั่วไหลของ mtDNA ยังไม่เป็นที่เข้าใจอย่างสมบูรณ์ (รูปที่ 4) รูพรุนของ BAK และ BAX ในเยื่อหุ้มเซลล์ชั้นนอกของไมโตคอนเดรียสามารถนำไปสู่การยุบตัวของเยื่อหุ้มเซลล์ภายในไมโตคอนเดรียและการปล่อย mtDNA ของไซโตซิลิก [6] การปรากฏตัวของ mtDNA ในไซโตซอลเป็นสัญญาณของการติดเชื้อที่ทำให้เกิดโรคและเป็นที่รู้จักโดยเส้นทางการตรวจจับนิวคลีโอไทด์ของไซโตโซล ตัวรับกรดนิวคลีอิกสามารถแบ่งออกเป็นสองประเภทหลัก: ตัวรับความรู้สึกทางภูมิคุ้มกัน ซึ่งรวมถึง Toll-like receptor 3 (TLR3), TLR7, TLR8, TLR9, ยีนที่กระตุ้นกรดเรติโนอิก I (RIG-I), มะเร็งผิวหนังที่เกี่ยวข้องกับความแตกต่าง ยีน 5 (MDA5) ไม่มีใน melanoma 2 (AIM2) และ cyclic GMP–AMP synthetase (cGAS); และตัวรับกรดนิวคลีอิก รวมถึง RNA แบบเกลียวคู่ (dsRNA) -โปรตีนไคเนส R ที่กระตุ้นการทำงาน (PKR), โปรตีนที่เหนี่ยวนำโดย IFN ที่มี tetratricopeptide ซ้ำ 1 (IFIT1), 2′−5′-oligoadenylate synthetase 1 (OAS1) และไรโบนิวคลีเอส L ( RNase L) และอะดีโนซีนดีอะมิเนสที่ออกฤทธิ์ต่อ RNA 1 (ADAR1) ทั้งสองทีมรายงานการเปิดใช้งาน cGAS-stimulator ของยีน interferon (STING) วิถีการตรวจจับ DNA ของ cytosolic ในเซลล์ท่อไตที่เป็นโรคอย่างอิสระรวมถึงแบบจำลองการบาดเจ็บที่เกิดจาก cisplatin [92] และหนู TFAM เคาะออก TFAM เฉพาะท่อ [69] การยับยั้งทางเภสัชวิทยาของ STING โดยใช้ C176 หรือการลบทางพันธุกรรมของ STING ทำให้การบาดเจ็บของไตลดลงทั้งในรูปแบบโรคไตเฉียบพลันและเรื้อรัง [69] การศึกษาเมื่อเร็วๆ นี้ ซึ่งวิเคราะห์แบบจำลองความเสี่ยง APOL1-ที่เหนี่ยวนำให้เกิดโรคไต บ่งชี้ว่าตัวแปร APOL1 ที่เกี่ยวข้องกับโรคไตได้เปลี่ยนแปลงไมโตฟากี ซึ่งนำไปสู่การรั่วไหลของ mtDNA ในเซลล์และการกระตุ้น cGAS และ STING [93, 94] STING กระตุ้นโมเลกุลปลายน้ำ รวมถึง TBK1, IRF3 และ IRF7 และกระตุ้นการแสดงออกของยีนที่กระตุ้นอินเตอร์ฟีรอน (ISGs) มีรายงานว่า ISG15 ถูกปล่อยสู่พื้นที่นอกเซลล์และควบคุมการย้ายถิ่นและการกระตุ้นเซลล์ภูมิคุ้มกัน [95] Bst2 เรียกว่า Tetherin ส่งเสริมการกระตุ้นเซลล์เดนดริก [96] หรือการเพิ่มจำนวนทีเซลล์ [97] NFkB ยังเป็นเป้าหมายดาวน์สตรีมของ STING มีการอธิบายถึงบทบาทของ NFkB ในการอักเสบของไต [98]
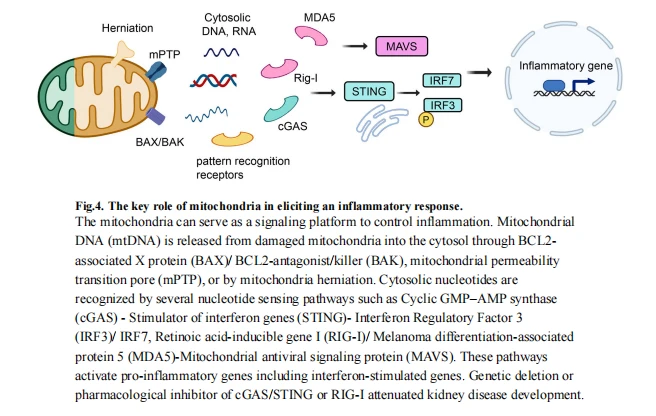
DNA ไมโตคอนเดรียของไซโตซิลิกหรือ DNA ของเซลล์เนื้อร้ายที่จับโดยมาโครฟาจยังสามารถเปิดใช้งาน AIM2 ซึ่งเป็นเส้นทางการตรวจจับนิวคลีโอไทด์ของไซโตโซลอีกทางหนึ่ง [99] ในการศึกษาหนึ่ง หนู AIM2 KO แสดงการกระตุ้น caspase-1 และการแสดงออกของ IL-1B ที่ลดลง และได้รับการปกป้องจากการบาดเจ็บของไตที่เกิดจาก UUO [100] ในทางกลับกัน ในการศึกษาแบบจำลองไตอักเสบที่เกิดจากซีรั่มพิษต่อไต (NTS) หนู AIM2 KO แสดงการก่อตัวของเสี้ยวไตที่รุนแรงกว่า การบาดเจ็บของท่อ และการอักเสบ [101] บริบทโดยนัยขึ้นอยู่กับบทบาทของ AIM2 หนูที่มีการลบพันธุกรรมของ RIG-I ยังได้รับการปกป้องจากเนื้อเยื่อพังผืดและโรคไต [102]
Toll-like receptors (TLRs) ที่แสดงออกบนเอนโดโซมจะจดจำนิวคลีโอไทด์ของไซโตโซลและกระตุ้นการตอบสนองของภูมิคุ้มกันโดยธรรมชาติและการลดระดับการอักเสบ มีการแสดง Cytosolic mtDNA เพื่อเปิดใช้งาน TLR9 [103] อย่างไรก็ตาม บทบาทของ TLR9 ในโรคไตยังไม่เป็นที่เข้าใจอย่างสมบูรณ์ การบาดเจ็บของไตลดลงในแบบจำลองการติดเชื้อที่เหนี่ยวนำให้เกิด cecal ligation and puncture (CLP) ในหนูที่มีการสูญเสีย TLR9 ทั่วโลก [104] หนูที่ขาด TLR9 เฉพาะในท่อไตใกล้เคียงที่แสดงด้วย AKI ที่รุนแรงกว่า [105]

อาหารเสริม Cistanche
การตายของเซลล์
ไมโทคอนเดรียมีบทบาทสำคัญในการจัดกลไกการตายของเซลล์จำนวนมาก อะพอพโทซิสเป็นกลไกการตายของเซลล์ที่ไม่เกิดการอักเสบซึ่งเกิดขึ้นโดยไม่มีการแตกของเยื่อหุ้มเซลล์ การปลดปล่อยไซโตโครม c จากไมโทคอนเดรียไปยังไซโตซอลผ่านรูขุมขน BAX/BAK เปิดใช้งาน caspase ที่ตามมา เช่น caspase-9 ตามด้วยการเปิดใช้งานการดำเนินการ caspase เช่น caspase-3 (รูปที่ 5) การตายของเซลล์ได้รับการสังเกตทั้งในโรคไตเฉียบพลันและเรื้อรัง และน่าจะเป็นกลไกสำคัญที่ส่งผลให้เซลล์ทูบูลและพอดไซต์สูญเสียไปในโรคไตเฉียบพลันและเรื้อรัง ผลของสารยับยั้ง pan-caspase ในการบาดเจ็บของไตเฉียบพลันและการเกิดพังผืดในไตยังคงไม่สามารถสรุปได้ การศึกษาก่อนหน้านี้แสดงให้เห็นว่า z-VAD (pan-caspase inhibitor) ยับยั้งการตายของเซลล์ในท่อไต และป้องกันการอักเสบและการบาดเจ็บของเนื้อเยื่อหลังภาวะขาดเลือด [106] ในการศึกษาในภายหลัง การรักษาด้วย z-VAD ล้มเหลวในการปรับปรุงการบาดเจ็บของไตในรูปแบบ ischemia-reperfusion [107] นอกจากนี้ ยังมีการตั้งคำถามเกี่ยวกับความจำเพาะของ z-VAD รวมถึงผลกระทบที่อาจเกิดขึ้นกับ autophagy [108] หนู Caspase-3 KO มีการตายของเซลล์บุผนังหลอดเลือดขนาดเล็กที่มีความรุนแรงน้อยกว่า และลดการเกิดพังผืดที่ไตหลังจากได้รับบาดเจ็บจากภาวะขาดเลือด [109] การตายของเซลล์ท่อไตยังถูกลดทอนในหนู BAX/BAK double KO ที่มีการทำงานของไตดีขึ้นหลังจากได้รับบาดเจ็บจากภาวะขาดเลือด [110] การศึกษาความสัมพันธ์ของการทำงานของไตทั่วทั้งจีโนมระบุว่า caspase-9 เป็นยีนที่เสี่ยงต่อโรคไต การแสดงออกของแคสเปสที่ลดลง-9 ป้องกันหนูจากการบาดเจ็บที่ไตและการเกิดพังผืด [111] ซึ่งบ่งชี้ถึงบทบาทเชิงสาเหตุของการตายของเซลล์ในการพัฒนาของโรค

สรุปข้อสังเกต
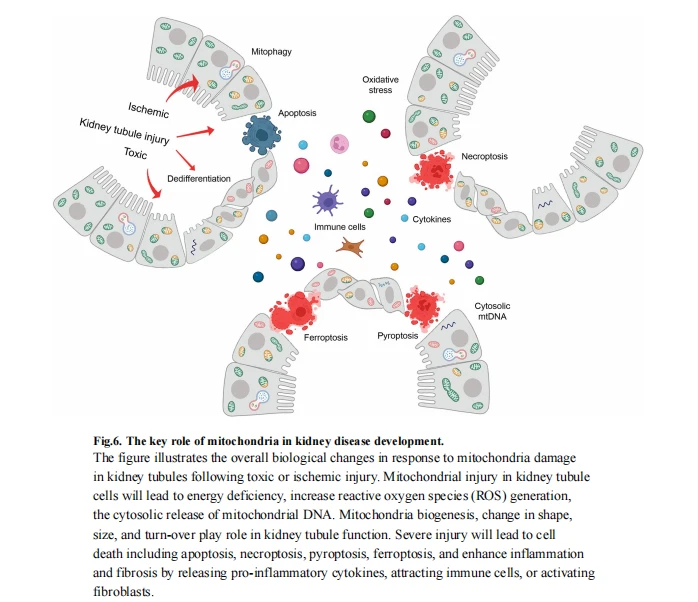
ท่อไตมีความหนาแน่นของไมโตคอนเดรียสูงที่สุดชนิดหนึ่งเพื่อสร้างพลังงานสำหรับการขนส่งโซเดียมและสารละลายอื่นๆ ในปริมาณมาก ข้อบกพร่องในการสร้างไบโอจีเนซิสของไมโทคอนเดรีย ไดนามิกส์ และไมโตฟาจีมีส่วนทำให้เกิดโรคไตโดยเซลล์ไม่สามารถตอบสนองความต้องการด้านพลังงานของเซลล์ ความเสียหายของไมโตคอนเดรียได้รับการยอมรับอย่างกว้างขวางในการบาดเจ็บของไตเฉียบพลันหรือเรื้อรัง การบาดเจ็บของไมโทคอนเดรียกระตุ้นกลไกการตายของเซลล์หลายเซลล์ (apoptosis, necroptosis, pyroptosis, ferroptosis) ซึ่งนำไปสู่การสูญเสียเซลล์เยื่อบุผิว การอักเสบ และโรคไต ไมโทคอนเดรียที่บกพร่องจะปล่อย ROS และความเสียหายของไมโทคอนเดรียเพิ่มเติมสามารถทำให้เกิดการรั่วไหลของไซโตซิลิกของดีเอ็นเอของไมโทคอนเดรีย กระตุ้นเซ็นเซอร์นิวคลีโอไทด์ของไซโตซิลิก กระตุ้นให้เกิดการอักเสบ และเพิ่มการพัฒนาของโรคไต (รูปที่ 6) การศึกษาในอนาคตจะต้องมีเป้าหมายเพื่อทำความเข้าใจความสัมพันธ์และลำดับขั้นระหว่างการเปลี่ยนแปลงของไมโทคอนเดรียที่แตกต่างกันที่สังเกตได้ในสภาวะที่เป็นโรค นอกจากนี้ เนื่องจากไมโทคอนเดรียมีปฏิสัมพันธ์กับออร์แกเนลล์อื่นๆ เช่น นิวเคลียส เอนโดพลาสมิกเรติคูลัม และเพอรอกซีโซม การทำงานในอนาคตควรมุ่งเป้าไปที่การผ่าความผิดปกติของไมโทคอนเดรียและปฏิสัมพันธ์ของออร์แกเนลล์ในโรคให้ดียิ่งขึ้น นอกจากนี้ยังเป็นที่ต้องการในการพัฒนาวิธีการที่ไม่รุกรานเพื่อตรวจสอบการทำงานของไมโตคอนเดรียในผู้ป่วย ยาที่กำหนดเป้าหมายความผิดปกติของไมโตคอนเดรียอาจมีแนวโน้มในการรักษาและป้องกันโรคไต ยาเหล่านี้บางตัวรวมถึงยาที่มุ่งเป้าไปที่ความเครียดจากปฏิกิริยาออกซิเดชัน การสร้างไบโอไมโตคอนเดรียของไมโทคอนเดรีย และการตายของเซลล์ แสดงผลในแบบจำลองสัตว์ อย่างไรก็ตาม ประสิทธิภาพของยาเหล่านี้ในผู้ป่วยโรคไตยังไม่ได้รับการระบุ
ผลกระทบของ Cistanche ต่อไต
Cistanche เป็นสมุนไพรจีนโบราณที่ใช้มานานหลายศตวรรษในการรักษาโรคภัยไข้เจ็บต่างๆ การศึกษาล่าสุดพบว่ามีผลดีต่อไต ซึ่งเป็นส่วนสำคัญของระบบการกรองของร่างกาย บทความนี้จะกล่าวถึงผลกระทบของระยะทางต่อไต
ประโยชน์หลักอย่างหนึ่งของระยะทางคือความสามารถในการปรับปรุงการทำงานของไต สมุนไพรได้รับการแสดงเพื่อปกป้องไตจากความเสียหายที่เกิดจากความเครียดออกซิเดชันและการอักเสบ สิ่งนี้มีความสำคัญเนื่องจากการอักเสบเป็นเวลานานและความเสียหายจากอนุมูลอิสระสามารถนำไปสู่โรคไตเรื้อรังและภาวะไตวายได้ Cistanche ยังพบว่าเพิ่มการไหลเวียนของเลือดไปยังไต ซึ่งจำเป็นสำหรับการทำงานที่เหมาะสม
Cistanche พบว่าลดระดับ creatinine สูงซึ่งเป็นตัวบ่งชี้ความผิดปกติของไต ระดับครีเอตินินสูงมักพบในผู้ที่เป็นโรคไตเรื้อรัง และในที่สุดอาจนำไปสู่โรคไตวายเรื้อรังระยะสุดท้ายได้ มีการแสดง Cistanche เพื่อควบคุมระดับ creatinine ซึ่งจะช่วยลดความเสี่ยงของความเสียหายของไต
นอกจากนี้ระยะทางยังมีคุณสมบัติขับปัสสาวะ ซึ่งหมายความว่าสามารถเพิ่มปริมาณปัสสาวะซึ่งสามารถช่วยขับสารพิษออกจากไตได้ วิธีนี้ทำให้ระยะทางเป็นประโยชน์สำหรับผู้ที่มีนิ่วในไต เนื่องจากสามารถช่วยทำลายนิ่วในไตและกำจัดออกจากร่างกายได้
ประการสุดท้าย ระยะทางมีคุณสมบัติต้านการอักเสบ ซึ่งจะเป็นประโยชน์สำหรับผู้ที่มีอาการไตอักเสบ การอักเสบของไตมักเกี่ยวข้องกับความผิดปกติของไตต่างๆ รวมถึง glomerulonephritis และ pyelonephritis Cistanche สามารถช่วยลดการอักเสบในไต ปกป้องไตจากความเสียหาย
สรุปได้ว่า ระยะทางมีผลดีหลายประการต่อไต สามารถเพิ่มการไหลเวียนของเลือดไปยังไต ลดระดับครีเอตินินสูง เพิ่มปริมาณปัสสาวะ และลดการอักเสบ ประโยชน์เหล่านี้ทำให้ Cistanche มีศักยภาพในการรักษาโรคไตต่างๆ รวมถึงโรคไตเรื้อรัง อย่างไรก็ตาม จำเป็นต้องมีการวิจัยเพิ่มเติมเพื่อให้เข้าใจถึงประโยชน์ที่เป็นไปได้ของสมุนไพรต่อสุขภาพไตอย่างถ่องแท้

ประโยชน์ของ Cistanche
อ้างอิง
66. ฮัน SH และคณะ (2017) PGC-1 ป้องกันการเกิดพังผืดในไตที่เกิดจากรอยบาก เจ แอม ซ็อก เนฟรอล 28 (11), 3312–3322. [ผับเมด: 28751525]
67. Nezu M และ Suzuki N (2020) บทบาทของ Nrf2 ในการปกป้องไตจากความเสียหายจากออกซิเดชัน Int J Mol Sci 21 (8).
68. Picca A และ Lezza AM (2015) กฎระเบียบของการสร้างไบโอไมโทคอนเดรียผ่านปฏิกิริยาของดีเอ็นเอไมโตคอนเดรียของ TFAM: ข้อมูลเชิงลึกที่เป็นประโยชน์จากการศึกษาเรื่องอายุและการจำกัดแคลอรี่ ไมโทคอนเดรียน 25, 67–75. [ผับเมด: 26437364]
69. ชุง KW et al. (2019) ความเสียหายของไมโตคอนเดรียและการเปิดใช้งาน STING Pathway นำไปสู่การอักเสบของไตและพังผืด เซลล์ Metab 30 (4), 784–799.e5. [ผับเมด: 31474566]
70. สึชิดะ เค และคณะ (2018) ตัวรับที่เกี่ยวข้องกับเอสโตรเจนเป็นสิ่งจำเป็นสำหรับการรักษาความสมบูรณ์ของไมโทคอนเดรียในการบาดเจ็บของไตเฉียบพลันที่เกิดจากซิสพลาติน Biochem Biophys Res ชุมชน 498 (4), 918– 924 [PubMed: 29545177]
71. Zhao J และคณะ (2018) การรวมจีโนมของ ERR -HNF1 ควบคุมพลังงานชีวภาพของไตและป้องกันโรคไตเรื้อรัง Proc Natl Acad Sci สหรัฐอเมริกา 115 (21), E4910–e4919. [PubMed: 29735694]
72. คาเมรอน RB และคณะ (2019) Proximal Tubule (2) -Adrenergic Receptor เป็นสื่อกลาง Formoterol กระตุ้นการฟื้นตัวของไมโทคอนเดรียและการทำงานของไตหลังจากได้รับบาดเจ็บจากภาวะขาดเลือดและกลับคืนสู่เลือด J Pharmacol Exp Ther 369 (1), 173–180. [ผับเมด: 30709866]
73. เจซินคีย์ เอสอาร์ และคณะ (2014) Formoterol ฟื้นฟูการทำงานของไมโตคอนเดรียและไตหลังจากได้รับบาดเจ็บจากการขาดเลือดและกลับเลือดกลับ เจ แอม ซ็อก เนฟรอล 25 (6), 1157–62. [PubMed: 24511124]
74. Gibbs WS และคณะ (2018) การระบุกลไกคู่ที่ไกล่เกลี่ย 5-hydroxytryptamine receptor 1F ที่เกิดจากไมโตคอนเดรียลไบโอเจเนซิส J Physiol Renal Physiol 314 (2), F260–f268 หรือไม่ [PubMed: 29046298]
75. Garrett SM และคณะ (2014) Agonism ของตัวรับ 5-hydroxytryptamine 1F ส่งเสริมการสร้างไบโอคอนเดรียของไมโตคอนเดรียและการฟื้นตัวจากการบาดเจ็บของไตเฉียบพลัน J Pharmacol Exp Ther 350 (2), 257–64. [ผับเมด: 24849926]
76. กิบส์ WS และคณะ (2018) 5-ตัวรับ HT(1F) ควบคุมสภาวะสมดุลของไมโตคอนเดรีย และการสูญเสียศักยภาพของมันทำให้เกิดการบาดเจ็บของไตเฉียบพลัน และทำให้การฟื้นตัวของไตลดลง Am J Physiol ไต Physiol 315 (4), F1119–f1128? [ผับเมด: 29846105]
77. Zhan M และคณะ (2013) พลวัตของไมโตคอนเดรีย: กลไกการกำกับดูแลและบทบาทที่เกิดขึ้นใหม่ในพยาธิสรีรวิทยาของไต ไต อินท์ 83 (4), 568–81. [ผับเมด: 23325082]
78. เพอร์รี HM และคณะ (2018) การขาดโปรตีนที่เกี่ยวข้องกับไดนามิน 1 ส่งเสริมการฟื้นตัวจาก AKI เจ แอม ซ็อก เนฟรอล 29 (1), 194–206. [ผับเมด: 29084809]
79. บรูคส์ ซี และคณะ (2552) ระเบียบไดนามิกของไมโทคอนเดรียในการบาดเจ็บของไตเฉียบพลันในแบบจำลองการเพาะเลี้ยงเซลล์และสัตว์ฟันแทะ เจ คลิน อินเวสท์ 119 (5), 1275–85. [PubMed: 19349686]
80. แกล JM et al. (2015) การทำให้ล้มลงแบบมีเงื่อนไขของท่อส่วนต้นไมโตฟูซิน 2 ช่วยเร่งการฟื้นตัวและปรับปรุงการอยู่รอดหลังจากภาวะไตขาดเลือด เจ แอม ซ็อก เนฟรอล 26 (5), 1092–102. [PubMed: 25201884]
81. วัง วาย และคณะ (2021) PINK1/PARK2/optineurin pathway ของ mitophagy ถูกเปิดใช้งานเพื่อป้องกันการบาดเจ็บเฉียบพลันของไตจากการติดเชื้อ รีดอกซ์ไบโอล 38, 101767 [PubMed: 33137712]
82. วัง วาย และคณะ (2018) PINK1/Parkin-mediated mitophagy ถูกกระตุ้นใน cisplatin nephrotoxicity เพื่อป้องกันการบาดเจ็บของไต โรคเซลล์ตาย 9 (11), 1113 [PubMed: 30385753]
83. หลี่ S และคณะ (2020) Drp1-PARK ที่มีการควบคุม2-ไมโตฟากีที่ขึ้นกับเซลล์ช่วยป้องกันการเกิดพังผืดที่ไตในการอุดตันของท่อไตข้างเดียว ฟรี Radic Biol Med 152, 632–649 [ผับเมด: 31825802]
84. ลูเซียนี เอ และคณะ (2020) ไมโทฟาจีบกพร่องเชื่อมโยงโรคไมโทคอนเดรียกับความเครียดของเยื่อบุผิวในการขาดเอนไซม์เมทิลมาโลนิล-โคเอ นัท คอมมูน 11(1), 970. [PubMed: 32080200]
85. Fu ZJ และคณะ (2020) HIF-1 -BNIP3-เซลล์ไมโทฟาจี้ที่เป็นสื่อกลางในเซลล์ท่อช่วยป้องกันภาวะไตขาดเลือด/การไหลเวียนกลับของเลือด รีดอกซ์ไบโอล 36, 101671 [PubMed: 32829253]
86. จาง เอช และคณะ (2008) Mitochondrial autophagy เป็น HIF-1-การตอบสนองทางเมตาบอลิซึมแบบปรับตัวที่ขึ้นอยู่กับภาวะขาดออกซิเจน เจ ไบโอล เคม 283 (16), 10892–903. [ผับเมด: 18281291]
87. Xu D และคณะ (2019) ไมโตฟากีที่ใช้ NIX เป็นสื่อกลางป้องกันการตายของเซลล์ท่อนำไข่ที่เกิดจากโปรตีนในปัสสาวะและการบาดเจ็บของไต J Physiol Renal Physiol 316 (2), F382–f395 หรือไม่ [PubMed: 30207166]
88. เกิงจี et al. (2021) ไมโตฟากีที่อาศัยรีเซปเตอร์ควบคุมการผลิต EPO และป้องกันภาวะโลหิตจางจากไต Elife 10. 89. Wei Y และคณะ (2017) Prohibitin 2 เป็นตัวรับ Mitophagy Membrane ภายใน เซลล์ 168 (1–2), 224–238.e10. [ผับเมด: 28017329]
90. Xu Y และคณะ (2019) Prohibitin 2-เซลล์ไมโทฟาจีที่เป็นสื่อกลางลดการบาดเจ็บของเซลล์เยื่อบุผิวท่อไตโดยควบคุมความผิดปกติของไมโทคอนเดรียและการกระตุ้น NLRP3 ที่ก่อให้เกิดการอักเสบ J Physiol Renal Physiol 316 (2), F396–f407 หรือไม่ [PubMed: 30539655]
91. ซัน เจ และคณะ (2019) CoQ10 ช่วยแก้ไขความผิดปกติของไมโตคอนเดรียในโรคไตจากเบาหวานผ่านไมโทฟาจี เจ เอ็นโดครินอล.
92. มาเอกาวะ เอช และคณะ (2019) ความเสียหายของไมโทคอนเดรียทำให้เกิดการอักเสบผ่านการส่งสัญญาณ cGAS-STING ในการบาดเจ็บที่ไตเฉียบพลัน ตัวแทนเซลล์ 29 (5), 1261–1273.e6. [ผับเมด: 31665638]
93. อู๋ เจ และคณะ (2021) บทบาทสำคัญของ NLRP3 และ STING ใน APOL1-ที่เกี่ยวข้องกับ podocytopathy เจ คลิน อินเวสท์ 131 (20).
94. อู๋ เจ และคณะ (2021) ความแปรปรวนของความเสี่ยง APOL1 ในบุคคลที่มีบรรพบุรุษทางพันธุกรรมของแอฟริกาทำให้เกิดความบกพร่องของเซลล์บุผนังหลอดเลือดซึ่งทำให้ภาวะติดเชื้อรุนแรงขึ้น ความคุ้มกัน 54 (11), 2632–2649.e6. [PubMed: 34715018]
95. Perng YC และ Lenschow DJ (2018) ISG15 ในภูมิคุ้มกันต้านไวรัสและอื่น ๆ แนท เรฟ ไมโครไบโอล 16 (7), 423–439. [PubMed: 29769653]
96. Li SX และคณะ (2016) Tetherin/BST-2 ส่งเสริมการเปิดใช้งานและการทำงานของเซลล์เดนไดรติกระหว่างการติดเชื้อรีโทรไวรัสเฉียบพลัน ตัวแทนวิทยาศาสตร์ 6, 20425 [PubMed: 26846717]
97. อูราตะ เอส et al. (2018) BST-2 ควบคุมการเพิ่มจำนวนและการอ่อนแรงของทีเซลล์โดยกำหนดรูปแบบการแพร่กระจายของการติดเชื้อไวรัสแบบถาวรในช่วงแรก กรุณา Pathog 14 (7), e1007172. [ผับเมด: 30028868]
98. Sanz AB และคณะ (2553) NF-kappaB ในการอักเสบของไต เจ แอม ซ็อก เนฟรอล 21 (8), 1254–62. [PubMed: 20651166]
99. จง Z et al. (2018) การสังเคราะห์ DNA ของไมโทคอนเดรียใหม่ช่วยให้สามารถเปิดใช้งาน NLRP3 ที่ก่อให้เกิดการอักเสบได้ ธรรมชาติ 560 (7717), 198–203. [PubMed: 30046112]
100. โคมาดะ ที และคณะ (2018) การดูดซึมมาโครฟาจของ DNA เซลล์เนื้อร้ายเปิดใช้งาน AIM2 Inflammasome เพื่อควบคุมฟีโนไทป์ของการอักเสบใน CKD เจ แอม ซ็อก เนฟรอล 29 (4), 1165–1181. [ผับเมด: 29439156]
101. ชุง เอช และคณะ (2021) AIM2 ยับยั้งการอักเสบและการเพิ่มจำนวนเซลล์เยื่อบุผิวระหว่างโรคกรวยไตอักเสบ เจ อิมมูนอล 207 (11), 2799–2812. [ผับเมด: 34740957]
102. โจว Z และคณะ (2020) RIG-I ทำให้พังผืดคั่นระหว่างหน้ารุนแรงขึ้นผ่านการกระตุ้นไฟโบรบลาสต์ที่อาศัย c-Myc ในหนู UUO เจ โมล เมด (เบิร์ล) 98 (4), 527–540. [PubMed: 32036390]
103. Zhang Q et al. (2010) DAMPs ไมโทคอนเดรียที่หมุนเวียนทำให้เกิดการตอบสนองต่อการอักเสบต่อการบาดเจ็บ ธรรมชาติ 464 (7285), 104–7. [PubMed: 20203610]
104. ไนโตะ Y et al. (2020) IL-17A เปิดใช้งานโดย Toll-like receptor 9 ก่อให้เกิดการบาดเจ็บเฉียบพลันของไตจากการติดเชื้อ Am J Physiol ไต Physiol 318 (1), F238–f247 [ผับเมด: 31760767]
105. ฮัน SJ และคณะ (2018) ไตใกล้เคียงท่อ TLR9 ทำให้รุนแรงขึ้นการบาดเจ็บของไตขาดเลือดเฉียบพลัน เจ อิมมูนอล 201 (3), 1073–1085. [ผับเมด: 29898963]
106. Daemen MA และคณะ (1999) การยับยั้ง apoptosis ที่เกิดจาก ischemia-reperfusion ช่วยป้องกันการอักเสบ เจ คลิน อินเวสท์ 104 (5), 541–9. [ผับเมด: 10487768]
107. ลิงเกอร์มันน์ เอ และคณะ (2012) Rip1 (ไคเนสโปรตีนที่โต้ตอบกับรีเซพเตอร์ 1) ไกล่เกลี่ยการตายของเซลล์และก่อให้เกิดการบาดเจ็บของไตขาดเลือด/การกลับคืนสู่เลือด ไต อินท์ 81 (8), 751–61. [PubMed: 22237751]
108. เฮอร์ซอก ซี และคณะ (2012) zVAD-fmk ป้องกันการแตกแยกของโปรตีน autophagy ที่เกิดจาก cisplatin แต่บั่นทอน autophagic flux และทำให้การทำงานของไตแย่ลง J Physiol Renal Physiol 303 (8), F1239–50 หรือไม่ [ผับเมด: 22896037]
109. ยาง B และคณะ (2018) Caspase-3 เป็นตัวควบคุมสำคัญของการสลายตัวของหลอดเลือดขนาดเล็กและพังผืดในไตหลังจากการบาดเจ็บจากการขาดเลือดและการกลับเป็นซ้ำ เจ แอม ซ็อก เนฟรอล 29 (7), 1900–1916 [PubMed: 29925521]
110. Wei Q และคณะ (2013) Bax และ Bak มีบทบาทสำคัญในการบาดเจ็บของไตขาดเลือดเฉียบพลันในโมเดลเมาส์ที่น่าพิศวงเฉพาะท่อร่วมและใกล้เคียง ไต อินท์ 84 (1), 138–48. [ผับเมด: 23466994]
111. Doke T และคณะ (2021) การศึกษาความสัมพันธ์ทั่วทั้งจีโนมระบุบทบาทของแคสเปส-9ในโรคไต Sci Adv 7 (45), eabi8051. [ผับเมด: 34739325]
โทโมฮิโตะ โดเกะ1,2, คาทาลิน ซัสทัก1,2
1. Department of Medicine, Renal Electrolyte and Hypertension Division, University of Pennsylvania, Philadelphia, PA, USA.
2. Department of Genetics, University of Pennsylvania, Perelman School of Medicine, Philadelphia, PA 19104, USA