ผลทางประสาทของสารสกัด Bu-Shen-Huo-Xue ต่อการตายของเซลล์ที่เกิดจากน้ำตาลกลูโคสสูงในเซลล์ PC12
Mar 09, 2022
สำหรับข้อมูลเพิ่มเติม:ali.ma@wecistanche.com
Shao-Yang Zhao, Xin Dong , Peng-Fei Tu , Ke-Wu Zeng, Xue-Mei Wang
1Research Studio of Integration of Traditional and Western Medicine, First Hospital, Peking University, Beijing, China.
2State Key Laboratory of Natural and Biomimetic Drugs, School of Pharmaceutical Sciences, Peking University, Beijing ประเทศจีน.
ไฮไลท์
ความเป็นพิษต่อระบบประสาทที่เกิดจากกลูโคสสูง (HG) เกี่ยวข้องกับพยาธิสภาพของเบาหวานโรคไข้สมองอักเสบ (DE) ในการศึกษาของเรา สารสกัด Bu-Shen-Huo-Xue (BSHX) ซึ่งเป็นสูตรสมุนไพรสารป้องกันประสาทกิจกรรมบนเซลล์ PC12 ที่เหนี่ยวนำโดย HG และกลไกที่เป็นไปได้อาจเกี่ยวข้องกับการปราบปรามการสร้างสายพันธุ์ออกซิเจนที่มีปฏิกิริยา (ROS) รวมทั้งแคสเปสที่มีไมโตคอนเดรียและเส้นทางการส่งสัญญาณ MAPK ของ JNK/p38 การศึกษานี้นำเสนอตัวแทนที่มีแนวโน้มในการรักษา DE ในการใช้งานทางคลินิก

คลิกเพื่อดูประโยชน์ของสารสกัด cistanche และ Cistanche สำหรับไต
Cistancheเป็นสมุนไพรโทนิคที่รู้จักกันดีที่สามารถบำรุงและปกป้องไต. ตามทฤษฎีการแพทย์แผนจีนCistancheเป็นสมุนไพรที่ดีที่สุดสำหรับไต.Cistancheอุดมไปด้วยเอไคนาโคไซด์ แอคทีโอไซด์ และฟลาโวนอยด์ ส่วนผสมที่มีประสิทธิภาพเหล่านี้ในCistancheลดได้ไตการตายของเซลล์และการเพิ่มขึ้นไตการเพิ่มจำนวนเซลล์ ดังนั้น,Cistancheคืออาหารเสริมไตธรรมชาติ.

เชิงนามธรรม
วัตถุประสงค์: เพื่อตรวจสอบผลของสารป้องกันระบบประสาทของสารสกัด Bu-Shen-Huo-Xue (BSHX) ซึ่งเป็นสูตรผสมสมุนไพร ต่อต้านความเป็นพิษต่อระบบประสาทที่เกิดจากกลูโคสสูง (HG) ในเซลล์ PC12 วิธีการ: การทดสอบความมีชีวิตของเซลล์, การทดสอบ Lactate Dehydrogenase (LDH), การตรวจหา Reactive Oxygen Species (ROS), Hoechst 33258, Acridine Orange (AO)/Ethidium Bromide (EB) double stain และการทดสอบ Mitochondrial Membrane Potential (MMP) นอกจากนี้ Bax, Bcl-2, caspase-3, cleaved caspase-3, PARP, PARP แยก, cytochrome c และ Mitogen-Activated Protein Kinases (MAPK) ถูกตรวจพบโดย western blot ผลลัพธ์: สารสกัด BSHX เพิ่มความมีชีวิตของเซลล์และลดการรั่วไหลของ LDH ในลักษณะที่ขึ้นกับความเข้มข้นในเซลล์ PC12 ที่เกิดจาก HG นอกจากนี้ สารสกัด BSHX ยังลดระดับของ ROS ภายในเซลล์ เพิ่มศักยภาพของเยื่อหุ้มไมโตคอนเดรีย ควบคุมการแสดงออกของ Bax และ Bcl-2 และยับยั้งการปลดปล่อยไซโตโครมซีจากไมโตคอนเดรีย นอกจากนี้ สารสกัด BSHX ยังลดการกระตุ้นของ caspase-3 และ PARP และยับยั้ง phosphorylations ของ c-Jun N-terminal kinase (JNK) และ p38 MAPKs สรุป: สารสกัด BSHX มีผลในการป้องกันระบบประสาทอย่างมีนัยสำคัญต่อการตายของเซลล์ที่เกิดจาก HG ในเซลล์ PC12 ผลกระทบนี้อาจเกี่ยวข้องกับการยับยั้งการสร้าง ROS เช่นเดียวกับ caspase ที่อาศัยไมโตคอนเดรียและเส้นทางการส่งสัญญาณ JNK/p38 MAPK
คำสำคัญ:โรคไข้สมองอักเสบจากเบาหวาน, ยาจีนโบราณ, สารสกัด Bu-Shen-Huo-Xue,สารป้องกันประสาท, กลูโคสสูง
ตัวย่อ: AO: acridine สีส้ม; BSHX: Bu-Shen-Huo-Xue; DE: โรคไข้สมองอักเสบจากเบาหวาน; DM: โรคเบาหวาน; DMSO: ไดเมทิลซัลฟอกไซด์; EB: เอทิเดียมโบรไมด์; ERK: ไคเนสโปรตีนควบคุมภายนอกเซลล์; HG: กลูโคสสูง; JNK: c-Jun N-terminal Kinase; LDH: แลคเตท ดีไฮโดรจีเนส; MAPKs: ไคเนสโปรตีนที่กระตุ้นด้วยไมโตเจน; MWP: ใบสั่งยา Wu-Zi-Yan-Zong; MTT: 3-[4, 5-Dimethylthiazol-2-yl] 2, 5-diphenyltetrazolium Bromide; PBS: ฟอสเฟตบัฟเฟอร์น้ำเกลือ; PBST: น้ำเกลือบัฟเฟอร์ฟอสเฟต 0.1 เปอร์เซ็นต์ Tween 20; ROS: ชนิดออกซิเจนปฏิกิริยา; T2DM: เบาหวานชนิดที่ 2; TCM: ยาจีนโบราณ
พื้นหลัง
ในช่วงไม่กี่ปีที่ผ่านมา Diabetic Encephalopathy (DE) ซึ่งเป็นภาวะแทรกซ้อนของ Diabetes Mellitus (DM) ที่เกิดขึ้นในระบบประสาทส่วนกลาง (CNS) ได้รับความสนใจอย่างกว้างขวาง DE อาจเกี่ยวข้องกับปัจจัยเสี่ยงหลายประการ เช่น อายุ ระยะเวลา และการควบคุมระดับน้ำตาลในเลือดของโรคเบาหวาน [1, 2] อาการทางคลินิกของ DE คือการเปลี่ยนแปลงทางสัณฐานวิทยาและสรีรวิทยาในสมองและความผิดปกติทางปัญญาที่เกิดขึ้น ภาวะน้ำตาลในเลือดสูง ความเครียดจากปฏิกิริยาออกซิเดชัน และการอักเสบเรื้อรังอาจเป็นสาเหตุสำคัญของการเกิดโรคของ DE [3] แม้ว่าการทดลองจำนวนมากขึ้นได้แสดงให้เห็นว่าภาวะน้ำตาลในเลือดสูงในระยะยาวสามารถเร่งอายุสมองได้ แต่ยังไม่มีการสำรวจพยาธิกำเนิดที่แม่นยำของ DE
อะพอพโทซิสคือการตายของเซลล์ที่ตั้งโปรแกรมไว้ซึ่งควบคุมโดยยีนเพื่อรักษาเสถียรภาพของสภาพแวดล้อมจุลภาค โปรตีนที่เกี่ยวข้องกับการตายของเซลล์แบบอะพอพโทซิส ได้แก่ แฟมิลี Bcl-2, caspases, p53 เป็นต้น แฟมิลี Bcl-2 แบ่งออกเป็นสองประเภท กลุ่มแรกส่งเสริมการตายของเซลล์ เช่น Bax และอีกกลุ่มต่อต้านการตายของเซลล์ เช่น Bcl-2 พวกมันสามารถควบคุมอะพอพโทซิสได้ผ่านทางวิถีการส่งสัญญาณของแคสเปส ซึ่งเป็นปฏิกิริยาการขยายคาสเคดของซับสเตรตไฮโดรไลซิสที่จำกัดซึ่งไม่สามารถย้อนกลับได้ของแคสเปส [4-6] นอกจากนี้ การศึกษายังแสดงให้เห็นว่าการตายของเซลล์ที่เกิดจากกลูโคสสูง (HG) เกี่ยวข้องกับความผิดปกติของไมโตคอนเดรีย ความเสียหายของดีเอ็นเอ และการผลิต Reactive Oxygen Species (ROS) ที่มากเกินไป [7] การศึกษาของหนูที่เป็นเบาหวานพบว่า Adenosine 5'-monophosphate (AMP)-activated Protein Kinase (AMPK) ซึ่งเป็นพลังงานภายในเซลล์และตัวรับความเครียดสามารถยับยั้งการตายของเซลล์ ROS ได้ นอกจากนี้ หลักฐานที่เพิ่มขึ้นได้แสดงให้เห็นว่าการยับยั้งโปรตีนไคเนสที่กระตุ้นด้วยไมโตเจน (MAPK) อาจเป็นประโยชน์ต่อการยับยั้งการตายของเซลล์ประสาท รายงานอื่นแสดงให้เห็นว่า c-Jun N-terminal Kinase (JNK), Extracellular Regulated Protein Kinases (ERK), p38 MAPK เส้นทางการส่งสัญญาณอาจควบคุมการตายของเซลล์ประสาท [8,9]

ตามทฤษฎีการแพทย์แผนจีนไตการขาดสารสำคัญและภาวะชะงักงันในเลือดถือเป็นการก่อโรคพื้นฐานของ DE ดังนั้นกลยุทธ์การบำรุงไตและการกระตุ้นเลือดมักใช้ในการใช้งานทางคลินิกสำหรับ DE การศึกษาก่อนหน้านี้สามารถยืนยันได้ว่าใบสั่งยา Wu-Zi-Yan-Zong ที่แก้ไขแล้ว (MWP) ซึ่งเป็นใบสั่งยาที่มุ่งเป้าไปที่การบำรุงไตสามารถปรับปรุงความบกพร่องทางสติปัญญาและปกป้องเซลล์ประสาทโดยลดความเป็นพิษ [10, 11] ใบสั่งยา Bu-Shen-Huo-Xue (BSHX) ซึ่งมีการเพิ่มปลิงตาม MWP ได้รับการกำหนดสูตรเฉพาะเพื่อหล่อเลี้ยงไตและกระตุ้นเลือด ผลการศึกษาเมื่อเร็วๆ นี้แสดงให้เห็นว่าใบสั่งยา BSHX สามารถปรับปรุงกลุ่มอาการความจำเสื่อมของผู้ป่วย DM ซึ่งบ่งชี้ถึงคุณสมบัติในการป้องกันระบบประสาทที่มีประสิทธิภาพ [12] อย่างไรก็ตาม กลไกทางเภสัชวิทยาโดยละเอียดของ BSHX ยังคงไม่ชัดเจน ในการศึกษานี้ เราตั้งเป้าหมายที่จะสังเกตผลการป้องกันของสารสกัด BSHX ต่อเซลล์ PC12 ที่เกิดจาก HG และสำรวจกลไกระดับโมเลกุลที่อาจเกิดขึ้น
วิธีการ
วัสดุและรีเอเจนต์
สมุนไพรทั้งหมดซื้อมาจาก Kang Ren Tang Chinese Medicine Co., Ltd. (ปักกิ่ง ประเทศจีน) และรับรองความถูกต้องโดย Dr. PF Tu เภสัชกรตาม Chinese Pharmacopoeia (The Pharmacopoeia Commission of PRC, 2010) 3- [4, 5-Dimethylthiazol-2-yl] 2, 5-diphenyltetrazolium bromide (MTT) มาจาก Sigma Chemical Co. (Saint Louis, MO, USA) ซื้อชุดทดสอบ lactate dehydrogenase (LDH) จากสถาบัน Nanjing Jiancheng Bioengineering (หนานจิง เจียงซู จีน). Acridine Orange (AO)/Ethidium Bromide (EB) double stain kit และ Hoechst 33258 ได้รับจาก Solar Co., Ltd. (ปักกิ่ง ประเทศจีน) ซื้อชุดทดสอบศักยภาพของเยื่อหุ้มไมโตคอนเดรียด้วย JC-1, 2, 7-ไดคลอโรฟลูออเรสซีน ไดอะซิเตต (DCFH-DA) จากสถาบันเทคโนโลยีชีวภาพ Beyotime (เซี่ยงไฮ้ ประเทศจีน) แอนติบอดีปฐมภูมิสำหรับแคสเปส-3, แคสเปสแยก-3, PARP, PARP แยก, ไซโตโครม C, Bax, Bcl-2, p38, p-p38, ERK, p-ERK, JNK, p -JNK และ -tubulin ได้มาจากเทคโนโลยีการส่งสัญญาณของเซลล์ (บอสตัน, แมสซาชูเซตส์, สหรัฐอเมริกา)
การเตรียมสารสกัด BSHX
BSHX ประกอบด้วยส่วนประกอบทางยาเจ็ดชนิด (ตารางที่ 1) สำหรับการเตรียมสารสกัด BSHX, Tsizi (Cuscuta Chinensis Lam.), Gouqi (Lycium barbarum L.), Fupenzi (Rubus chingii Hu), Wuweizi (Schizandra Chinensis (Turcz.) Baill.), Cheqiancao (Plantago Asiatica L.), Shuizhi ( Hirudo nipponica Whitman.) และ Yinyanghuo (Epimedium brevican Maxim.) ผสมกันในสัดส่วน 8:8:4:1:2:1:8 และแช่ในปริมาตรรวม 10 ครั้ง (v/w) น้ำกลั่นเป็นเวลา 30 นาที จากนั้นต้มเป็นเวลา 1 ชั่วโมงและต้มอีกครั้งเป็นเวลา 1 ชั่วโมง ในปริมาณรวม 5 ครั้ง (v/w) น้ำกลั่น ส่วนลอยเหนือตะกอนถูกรวมและทำให้แห้งโดยการทำแห้งเยือกแข็ง สารสกัดแห้งขั้นสุดท้ายคือ 25 เปอร์เซ็นต์ (w/w) ของน้ำหนักของสมุนไพรดิบ และตัวอย่างใบสำคัญถูกฝากไว้ในศูนย์วิจัยการแพทย์แผนจีนสมัยใหม่ ศูนย์วิทยาศาสตร์สุขภาพมหาวิทยาลัยปักกิ่ง ปักกิ่ง ประเทศจีน
การเพาะเลี้ยงเซลล์
สายพันธุ์เซลล์ pheochromocytoma ของหนู (เซลล์ PC12) ได้มาจาก Peking Union Medical College Cell Bank (ปักกิ่ง ประเทศจีน) และปลูกใน Modified Eagle Medium (DMEM) ของ Dulbecco (Macgene, Beijing, China) เสริมด้วยซีรัมของทารกในครรภ์ 10 เปอร์เซ็นต์ (Biowest, France ) และ 1 เปอร์เซ็นต์ Penicillin-Streptomycin (100×, Macgene, Beijing, China) ในตู้อบความชื้นที่มีอากาศ 95 เปอร์เซ็นต์และ CO2 5% ที่ 37 องศา
ตัวอย่างการรักษา
ในการทดสอบเบื้องต้น เซลล์ PC12 ได้รับการบำบัดด้วยสารสกัด BSHX (20, 50, 100 มก./ลิตร) เพียงอย่างเดียวเป็นเวลา 48 ชั่วโมงเพื่อประเมินความเป็นพิษต่อเซลล์ สำหรับการวิเคราะห์ผลทางประสาทของสารสกัด BSHX ต่อความเป็นพิษต่อระบบประสาทที่เกิดจากกลูโคส (HG) สูง เซลล์ PC12 ได้รับการบำบัดร่วมกับสารสกัด BSHX (20, 50, 100 มก./ลิตร) และ HG (75 mM) เป็นเวลา 48 ชั่วโมง ตามด้วยการทดสอบ MTT เพื่อความอยู่รอดของเซลล์ การสอบวิเคราะห์อื่นๆ ทั้งหมดถูกกระทำภายใต้สภาวะเดียวกันกับช่วงความเข้มข้นของสารสกัด BSHX ตั้งแต่ 20 ถึง100 มก./ลิตร
การทดสอบความมีชีวิตของเซลล์
เซลล์ PC12 ถูกเพาะในเพลต 96-หลุมที่ความหนาแน่น 3.5 × 10³ เซลล์ต่อหลุม หลังจากการฟักไข่ด้วยสารสกัด BSHX (ที่มีหรือไม่มี HG) เป็นเวลา 48 ชั่วโมง สารลอยเหนือตะกอนจะถูกลบออกและสารละลาย MTT (0.5 มก./มล.) ถูกเติม หลังจากการบ่มที่ 37 องศาเป็นเวลา 4 ชั่วโมง สารละลาย MTT ถูกกำจัดออกและเซลล์ถูกละลายในไดเมทิลซัลฟอกไซด์ (DMSO) สำหรับการเขย่า 5 นาที วัดความหนาแน่นของแสง (OD) ที่ 570 นาโนเมตรโดยใช้เครื่องอ่านไมโครเพลท ความมีชีวิตของเซลล์ ( เปอร์เซ็นต์ )=[OD (การรักษา) – OD (ว่าง)]/ [OD (การควบคุมที่ไม่ได้รับการรักษา) – OD (ว่าง)] × 100 เปอร์เซ็นต์

การทดสอบ LDH
เซลล์ PC12 ได้รับการเพาะเลี้ยงและกระตุ้นการบำบัดด้วยสารสกัด HG และ BSHX ตามที่อธิบายไว้ก่อนหน้านี้ จากนั้น ตรวจพบ LDH ที่ปล่อยออกมาจากเซลล์โดยใช้ชุด LDH เชิงพาณิชย์ตามคำแนะนำของผู้ผลิต วัดค่าการดูดกลืนที่ 450 นาโนเมตร LDH (U/L)=[OD (การรักษา) – OD (ว่าง)] / [OD (มาตรฐาน) – OD (ว่าง)] × 0.2 (mmol/L) × 1000
Hoechst 33258 การย้อมสีและการย้อมสี AO/EB
สำหรับการย้อมสี Hoechst 33258 เซลล์ถูกตรึงด้วยพาราฟอร์มัลดีไฮด์ 4% เป็นเวลา 30 นาที จากนั้นเซลล์ถูกล้างด้วยฟอสเฟตบัฟเฟอร์ซาลีน (PBS) 3 ครั้ง และบ่มด้วยสารละลายทำงาน Hoechst 33258 (1 ไมโครกรัม/มิลลิลิตร) ในที่มืดเป็นเวลา 30 นาทีที่อุณหภูมิห้อง ภาพถูกถ่ายโดยใช้กล้องจุลทรรศน์เรืองแสง (IX73, Olympus, Japan) ภายใต้ความยาวคลื่นที่กระตุ้นด้วยคลื่นแม่เหล็กไฟฟ้า 352 นาโนเมตร/ความยาวคลื่นที่ปล่อยออกมา 461 นาโนเมตร สำหรับการย้อมสี AO/EB ให้นำสื่อออกจากแผ่นหลุม 96-หลุม แล้วเติมส่วนผสม AO/EB (100 ug/mL AO และ 100 ug/mL EB ผสมกัน) เป็นเวลา 5 นาทีในที่มืดที่อุณหภูมิห้อง จากนั้นเซลล์ถูกล้างด้วย PBS 3 ครั้ง เซลล์ถูกมองเห็นโดยใช้กล้องจุลทรรศน์เรืองแสงภายใต้ความยาวคลื่นกระตุ้น 490 นาโนเมตร/ความยาวคลื่นการปล่อย 530 นาโนเมตร สำหรับการย้อมสี AO และความยาวคลื่นกระตุ้น 520 นาโนเมตร/ความยาวคลื่นการปล่อย 590 นาโนเมตร สำหรับการย้อมสี EB
การตรวจจับ ROS ภายในเซลล์
สำหรับการตรวจหา ROS ภายในเซลล์ เซลล์ PC12 ถูกเพาะเข้าไปในแผ่น 6-หลุมที่ความหนาแน่น 5×10⁵ และอยู่ภายใต้การบำบัดด้วยสารสกัด HG และ BSHX เป็นเวลา 24 ชั่วโมง หลังจากการฟักตัว 24 ชั่วโมง เซลล์ PC12 ถูกล้างด้วยสื่อกลางอินทรีดัดแปลงของ Dulbecco ที่ปราศจากซีรัมเป็นเวลา 3 ครั้ง และเติมลงใน 10μΜ 2', 7'-dichlorofluorescein diacetate (DCF-DA) ซึ่งถูกออกซิไดซ์เป็นฟลูออเรสเซนต์ 2', 7'-dichlorofluorescein (DCF) โดยไฮโดรเปอร์ออกไซด์ที่ 37 องศาเป็นเวลา 30 นาทีในที่มืด จากนั้น เซลล์ถูกล้างด้วย PBS เย็น 3 ครั้งและแขวนลอยอีกครั้งใน PBS ตรวจพบระดับภายในเซลล์ของ ROS โดยการวัดความเข้มของแสงเรืองแสงเฉลี่ยโดยโฟลว์ไซโตเมทรี (BD FACSCaliburTM, USA) ความยาวคลื่นกระตุ้น/ปล่อยอยู่ที่ 488 / 525 นาโนเมตร มีการนับเหตุการณ์อย่างน้อย 10,000 ต่อตัวอย่าง ค่าถูกแสดงเป็นค่าการดูดกลืนแสงเฉลี่ยที่ทำให้เป็นมาตรฐานกับเปอร์เซ็นต์ของค่าควบคุม
การทดสอบศักยภาพของเยื่อหุ้มไมโตคอนเดรีย
การแบ่งขั้วไมโตคอนเดรียถูกประเมินโดยใช้ชุดทดสอบ JC-1 เชิงพาณิชย์ หลังจากได้รับการบำบัดด้วยสารสกัด HG และ BSHX เซลล์ถูกบ่มด้วยสารละลายการทำงานของ JC-1 (1 ×) ที่ 37 องศาเป็นเวลา 15 นาทีในความมืด จากนั้น นำส่วนลอยเหนือตะกอนออกและล้างเซลล์ 2 ครั้งด้วยสารละลายบัฟเฟอร์ JC-1 (1 ×) เซลล์ถูกมองเห็นโดยใช้กล้องจุลทรรศน์เรืองแสงภายใต้ความยาวคลื่นกระตุ้น 460 นาโนเมตร/ความยาวคลื่นการปล่อย 530 นาโนเมตรสำหรับโมโนเมอร์ JC-1 (ตรวจพบในเซลล์ที่มีไมโทคอนเดรียแบบขั้ว) และความยาวคลื่นกระตุ้น 520 นาโนเมตร/ความยาวคลื่นการปล่อย 590 นาโนเมตรสำหรับ JC{{13 }} พอลิเมอร์ (มีอยู่ในไมโตคอนเดรียโพลาไรซ์) เซลล์ที่มีการเรืองแสงสีเขียว (โมโนเมอร์) ถือว่ามีไมโตคอนเดรียแบบขั้ว เซลล์ที่มีสารเรืองแสงสีแดง (พอลิเมอร์) ถือว่ามีไมโตคอนเดรียปกติ
การวิเคราะห์ Western blot
เซลล์ PC12 ถูกรวบรวมและสลายในบัฟเฟอร์ RIPA เย็นที่มีตัวยับยั้งโปรตีเอสค็อกเทล 1 เท่า ส่วนลอยเหนือตะกอนถูกรวบรวมโดยการหมุนเหวี่ยงด้วยความเร็วสูงที่ 12,000 รอบต่อนาที เป็นเวลา 10 นาทีที่ 4 องศา ความเข้มข้นของโปรตีนถูกกำหนดโดยการทดสอบแบรดฟอร์ด เศษส่วนที่เสริมด้วยไซโตซอลและไมโตคอนเดรียถูกแยกออกด้วยชุดแยกไมโตคอนเดรีย (เพียร์ซ ร็อกฟอร์ด สหรัฐอเมริกา) สำหรับการวิเคราะห์ไซโตโครมซี สำหรับโปรตีนอื่นๆ ไลเซตของเซลล์ทั้งหมดถูกแยกโดย SDS-PAGE (10 เปอร์เซ็นต์ -15 เปอร์เซ็นต์ ) และถ่ายโอนไปยังเมมเบรนโพลีไวนิลลิดีนฟลูออไรด์ (PVDF) จากนั้นเยื่อโพลีไวนิลลิดีนฟลูออไรด์ถูกบล็อกด้วยนมไม่มีไขมัน 5 เปอร์เซ็นต์ และบ่มด้วยแอนติบอดีปฐมภูมิที่ระบุไว้ที่ 4 องศาเป็นเวลาข้ามคืน เยื่อหุ้มถูกล้างด้วย PBST (น้ำเกลือบัฟเฟอร์ฟอสเฟต, 0.1 เปอร์เซ็นต์ Tween 20) สามครั้งและบ่มด้วยแอนติบอดีทุติยภูมิที่อุณหภูมิห้องเป็นเวลา 2 ชั่วโมง จากนั้น เยื่อเมมเบรนถูกล้างด้วย PBST อีกสามครั้งและแสดงภาพโดยใช้สารตั้งต้นเคมีลูมิเนสเซนต์ที่ได้รับการปรับปรุง และสแกนด้วย Kodak Digital Imaging System (Gel Logic 2200Pro, Kodak, USA)
การวิเคราะห์ทางสถิติ
ค่าทั้งหมดแสดงเป็นค่าเฉลี่ย±ส่วนเบี่ยงเบนมาตรฐาน (SD) ความสำคัญของความแตกต่างระหว่างค่าเฉลี่ยถูกกำหนดโดยการวิเคราะห์ความแปรปรวนทางเดียว (ANOVA) โดยใช้ซอฟต์แวร์ Statistical Package for Social Sciences (SPSS 16.0) P < 0.05="">
ผลลัพธ์
สารสกัด BSHX ปกป้องเซลล์ PC12 จากการบาดเจ็บของเซลล์ที่เกิดจาก HG
เพื่อตรวจสอบว่าสารสกัด BSHX สามารถปกป้องเซลล์ PC12 จากการดูถูก HG ได้หรือไม่ เราได้ทำการรักษาเซลล์ PC12 ด้วยความเข้มข้นของสารสกัด BSHX (20, 50 และ 100 มก./ลิตร) เป็นเวลา 48 ชั่วโมงภายใต้สภาวะ HG (75 mM) การประเมินความมีชีวิตของเซลล์โดยใช้การทดสอบ MTT พบว่าการดูถูก HG ทำให้ความมีชีวิตของเซลล์ PC12 ลดลงอย่างมีนัยสำคัญ (ความมีชีวิตของเซลล์อยู่ที่ประมาณ 56.9 ± 6.7 เปอร์เซ็นต์) และการรักษาด้วยสารสกัด BSHX ช่วยป้องกันการตายของเซลล์ในลักษณะที่ขึ้นกับความเข้มข้นอย่างมีนัยสำคัญ ความมีชีวิตของเซลล์เพิ่มขึ้นเป็น 87.8 ± 9.2 เปอร์เซ็นต์ เมื่อเซลล์ถูกบำบัดร่วมกับสารสกัด BSHX (100 มก./ลิตร) (รูปที่ 1A) Lactate Dehydrogenase (LDH) ถูกปลดปล่อยออกจากเซลล์ที่เสียหายและสามารถใช้เป็นตัวบ่งชี้ความเป็นพิษของเซลล์ได้ สอดคล้องกับผลลัพธ์ของการทดสอบ MTT เราพบว่า HG ดูถูกเพิ่มการปลดปล่อย LDH จากเซลล์ PC12 อย่างมีนัยสำคัญ และการบำบัดด้วยสารสกัด BSHX ป้องกันการปลดปล่อย LDH ในลักษณะที่ขึ้นกับความเข้มข้น (รูปที่ 1B) ผลลัพธ์เหล่านี้ชี้ให้เห็นว่าสารสกัด BSHX เพิ่มความมีชีวิตของเซลล์ ในเซลล์ PC12 ที่เกิดจาก HG

สารสกัด BSHX ยับยั้งการตายของเซลล์ PC12 ผ่านทางเส้นทางที่ขึ้นกับ caspase-9/3-
เพื่อตรวจสอบผลของสารสกัด BSHX ต่อการตายของเซลล์ เราใช้สีย้อม Hoechst 33258 เป็นการทดสอบที่ละเอียดอ่อนสำหรับการตายของเซลล์ นิวเคลียสของเซลล์ปกติที่ย้อมด้วย Hoechst 33258 แสดงให้เห็นการเรืองแสงสีน้ำเงินที่สม่ำเสมอ ในขณะที่เซลล์ apoptotic ที่นิวเคลียสโครมาตินจากก้อนเมฆแสดงอนุภาคเรืองแสงที่มีสีมากเกินไปและหนาแน่น เปอร์เซ็นต์ของการตายของเซลล์ถูกคำนวณตามจำนวนเซลล์ apoptotic เทียบกับจำนวนเซลล์ทั้งหมด ข้อมูลของเราเปิดเผยว่าการดูถูก HG (75 mM) เพิ่มสัดส่วนของเซลล์ apoptotic ได้อย่างมาก (51.7 ± 4.3 เปอร์เซ็นต์) และการรักษาด้วยสารสกัด BSHX ได้รับการปกป้องอย่างมีนัยสำคัญต่อการตายของเซลล์ที่เกิดจาก HG ในเซลล์ PC12 (รูปที่ 2A) ผลลัพธ์เหล่านี้ได้รับการสนับสนุนเพิ่มเติมโดยการวิเคราะห์การย้อมสีสองครั้งของ AO/EB AO เข้าสู่เซลล์ปกติและเซลล์ apoptotic และปล่อยแสงเรืองแสงสีเขียว ในขณะที่ EB เข้าสู่เซลล์ apoptotic เท่านั้นและปล่อยแสงสีแดง [13] การทดสอบ AO/EB แสดงให้เห็นว่าเปอร์เซ็นต์ของเซลล์ apoptotic เพิ่มขึ้นอย่างมีนัยสำคัญหลังจากการดูหมิ่น HG (75 mM) (47.8.7 ± 2.6 เปอร์เซ็นต์ ) และลดลงเมื่อให้สารสกัด BSHX ในเซลล์ PC12 (รูปที่ 2B) ซึ่งบ่งชี้ว่าสารสกัด BSHX มีประสิทธิภาพ ยับยั้งการตายของเซลล์ PC12 ที่เกิดจาก HG
จากนั้น เราตรวจสอบผลของสารสกัด BSHX ต่อเส้นทางแคสเปส-3/PARP ซึ่งเป็นเส้นทางที่สำคัญสำหรับการตายของเซลล์ที่เกี่ยวข้องกับไมโตคอนเดรีย [14] Western blot เปิดเผยว่าการดูถูก HG (75 mM) เพิ่มการแสดงออกของรูปแบบที่ใช้งานของ caspase-3 และ PARP อย่างมีนัยสำคัญ และลดการแสดงออกของ caspase ทั้งหมด-3 และ PARP ในเซลล์ PC12 และผลกระทบนี้กลับกันอย่างเห็นได้ชัด โดยการบำบัดด้วยสารสกัด BSHX (รูปที่ 2C) แสดงให้เห็นว่าสารสกัด BSHX ปกป้องเซลล์ PC12 จากการตายแบบอะพอพโทซิสได้อย่างมีประสิทธิภาพผ่านการควบคุมของแคสเปสที่ขึ้นกับไมโตคอนเดรีย-3/วิถี PARP
สารสกัด BSHX ยับยั้งการผลิต ROS ภายในเซลล์ในเซลล์ PC12 ที่เกิดจาก HG
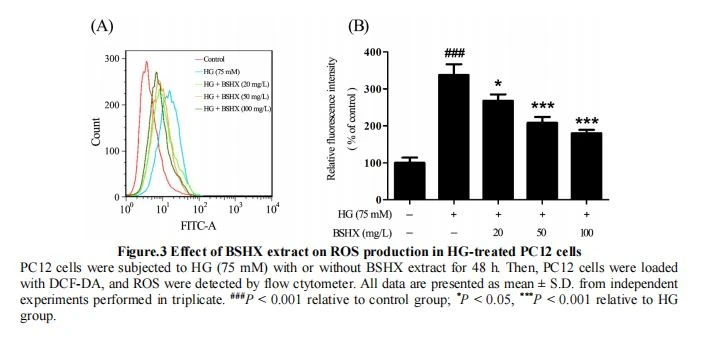
เนื่องจาก HG สามารถเพิ่มประสิทธิภาพการก่อตัวของ ROS ภายในเซลล์ [15] เราจึงทดสอบระดับของ ROS ภายในเซลล์เพื่อตรวจสอบว่าสารสกัด BSHX สามารถยับยั้งการสร้าง ROS ได้หรือไม่ มีการเพิ่มขึ้น 3.23-เท่าของความเข้มของการเรืองแสงเฉลี่ยที่สังเกตพบในเซลล์ PC12 ที่ได้รับ 75 มิลลิโมลาร์ HG เป็นเวลา 48 ชั่วโมงเมื่อเทียบกับกลุ่มควบคุม ในทางตรงกันข้าม การรักษาร่วมกับสารสกัด BSHX จะลดความเข้มของแสงฟลูออเรสเซนส์เฉลี่ยลงอย่างมีนัยสำคัญที่ประมาณ 0.76-, 0.{{10}} และ 0. {12}}เท่าของกลุ่มแบบจำลองตามลำดับ ซึ่งบ่งชี้ว่าสารสกัด BSHX สามารถยับยั้งการผลิต ROS ที่เหนี่ยวนำโดย HG (รูปที่ 3A, B)

สารสกัด BSHX ช่วยรักษาสมดุลของไมโตคอนเดรียในเซลล์ PC12 ที่เกิดจาก HG โดยควบคุมการแสดงออกของ Bax และ Bcl-2
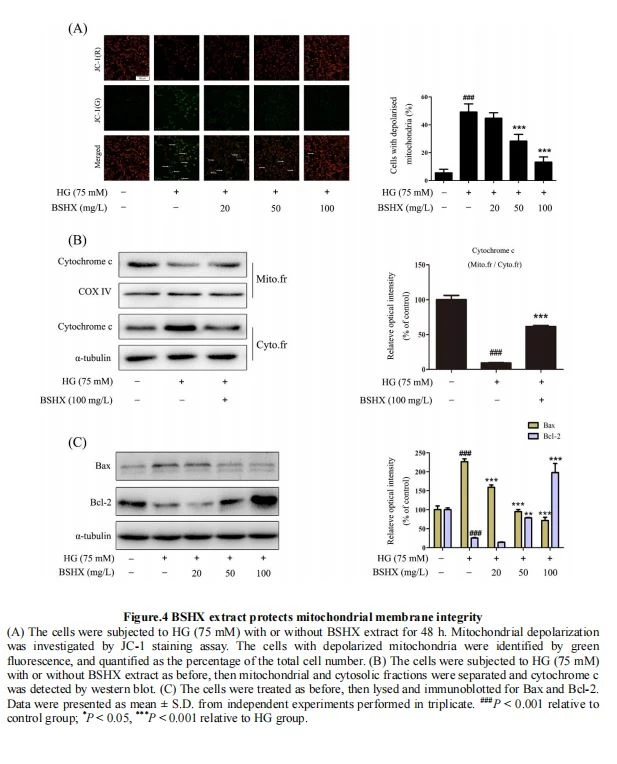
ศักยภาพของเยื่อหุ้มไมโตคอนเดรียเป็นพารามิเตอร์ที่สำคัญของการทำงานของไมโตคอนเดรียที่ใช้เป็นตัวบ่งชี้ถึงความสมบูรณ์ของเซลล์ JC-1 เป็นสีย้อมแบบไลโปฟิลิกซึ่งเป็นสีย้อมที่มีประจุบวกที่สามารถเลือกเข้าสู่ไมโตคอนเดรียและเปลี่ยนสีจากสีเขียวเป็นสีแดงแบบย้อนกลับได้เมื่อศักยภาพของเมมเบรนเพิ่มขึ้น ในเซลล์ที่มีสุขภาพดีซึ่งมีศักยภาพของเยื่อหุ้มไมโตคอนเดรียสูง JC-1 จะสร้างสารเชิงซ้อนที่รู้จักกันในชื่อ J-aggregates ที่มีการเรืองแสงสีแดงเข้มข้น ในทางกลับกัน ในเซลล์ apoptotic ที่มีศักยภาพของเยื่อหุ้มไมโตคอนเดรียต่ำ JC-1 ยังคงอยู่ในรูปแบบโมโนเมอร์ ซึ่งแสดงเฉพาะการเรืองแสงสีเขียวเท่านั้น [16, 17] อัตราส่วนของการเรืองแสงสีเขียวกับการเรืองแสงสีแดงจึงสามารถสะท้อนการสลับขั้วของไมโตคอนเดรีย ในการศึกษาของเรา จำนวนเซลล์ที่มีไมโทคอนเดรียแบบขั้ว (เรืองแสงสีเขียว) เพิ่มขึ้นอย่างมีนัยสำคัญหลังจาก HG (75 mM) เป็นเวลา 48 ชั่วโมง และการเพิ่มขึ้นนี้กลับรายการโดยการบำบัดด้วยสารสกัด BSHX ในลักษณะที่ขึ้นกับความเข้มข้น (รูปที่ 4A)
ต่อมาเราตรวจพบการกระจายตัวของไมโตคอนเดรียและไซโตพลาสซึมของไซโตโครม ซี ซึ่งเป็นตัวแสดงหลักในวิถีการตายแบบอะพอพโทซิสที่ขึ้นกับแคสเปส เราพบว่าการดูถูก HG (75 mM) เป็นเวลา 48 ชั่วโมงทำให้เกิดการโยกย้ายอย่างรวดเร็วของ cytochrome c จากไมโตคอนเดรียไปยังไซโตพลาสซึม และการย้ายตำแหน่งนี้ได้รับการป้องกันอย่างมีนัยสำคัญโดยการบำบัดด้วยสารสกัด BSHX (รูปที่ 4B) ซึ่งบ่งชี้ว่าสารสกัด BSHX สามารถยับยั้งการปลดปล่อยของ ไซโตโครม ซี จากไมโตคอนเดรีย
นอกจากนี้ โปรตีนในตระกูล Bcl-2 ยังเป็นตัวควบคุมที่สำคัญของวิถีการตายแบบอะพอพโทติกต่างๆ Bcl-2 สามารถยับยั้งการตายของเซลล์ที่เกิดจากปัจจัยที่เป็นพิษต่อเซลล์ต่างๆ และเป็นตัวยับยั้งการปลดปล่อยไซโตโครมซีจากไมโตคอนเดรียไปยังไซโตพลาสซึม อย่างไรก็ตาม Bax ในฐานะสมาชิกคนหนึ่งของตระกูล Bcl-2 เป็นปัจจัยสนับสนุนการตายของเซลล์ เมื่อเกิดอะพอพโทซิส Bax จะย้ายจากไซโตพลาสซึมไปยังไมโตคอนเดรียและทำลายความสมบูรณ์ของไมโตคอนเดรีย [5, 18] ในการศึกษาของเรา ระดับโปรตีนของ Bcl-2 ถูกปรับลดลง และ Bax ถูกควบคุมโดยการดูถูก HG (75 mM) เป็นเวลา 48 ชั่วโมง ผลกระทบนี้ถูกย้อนกลับโดยขึ้นอยู่กับความเข้มข้นโดยสารสกัด BSHX (รูปที่ 4C) ผลลัพธ์ทั้งหมดข้างต้นชี้ให้เห็นว่าสารสกัด BSHX ปกป้องเซลล์ PC12 จากการสลับขั้วไมโตคอนเดรียที่เกิดจาก HG โดยควบคุมการแสดงออกของ Bax และ Bcl-2
ผลของสารสกัด BSHX ต่อการตายของเซลล์ผ่านเส้นทางการส่งสัญญาณ JNK/p38 MAPK
การศึกษาบางชิ้นแสดงให้เห็นว่าการผลิต ROS ที่เพิ่มขึ้นเกี่ยวข้องกับการกระตุ้นวิถีของ MAPK เพื่อกระตุ้นการตายของเซลล์9 [19, 20] ดังนั้นเราจึงตรวจสอบผลของสารสกัด BSHX ต่อวิถีการส่งสัญญาณ Mitogen-Activated Protein Kinase (MAPK) เพื่อตรวจสอบว่าสารสกัด BSHX สามารถลดทอนการตายของเซลล์ที่เกิดจาก HG ได้หรือไม่ ดังแสดงในรูปที่ 5 การดูถูก HG (75 mM) เป็นเวลา 48 ชั่วโมงเพิ่ม phosphorylations ของ c-Jun NH2-terminal kinase (JNK) และ p38 ในเซลล์ PC12 ซึ่งถูกยับยั้งอย่างมีนัยสำคัญโดยสารสกัด BSHX ในความเข้มข้น- ลักษณะที่พึ่งพา อย่างไรก็ตาม ไม่พบผลลัพธ์ที่คล้ายกันกับ MAPK โปรตีนควบคุมภายนอกเซลล์ (ERK) ผลการวิจัยชี้ให้เห็นว่าสารสกัด BSHX สามารถยับยั้งการตายของเซลล์ที่เกิดจาก HG ผ่านทางเส้นทางการส่งสัญญาณ JNK/p38 MAPK
การอภิปราย
โรคไข้สมองอักเสบจากเบาหวาน (DE) เป็นภาวะแทรกซ้อนที่พบบ่อยของโรคเบาหวานประเภท 2 (T2DM) มันสามารถทำให้เกิดความบกพร่องทางสติปัญญาของสมองและเป็นปัจจัยเสี่ยงที่สำคัญของการเสียชีวิตและความพิการในผู้ป่วยเบาหวานชนิดที่ 2 ทั่วโลก [3] ดังนั้นจึงเป็นเรื่องสำคัญที่จะต้องศึกษากลไกของ DE ตลอดจนกลยุทธ์ในการป้องกันและรักษา
ในประเทศจีน ยาจีนโบราณ (TCMs) ถูกใช้ในการรักษา DM มาหลายปีแล้วและได้แสดงผลการรักษา การศึกษาทางคลินิกบางชิ้นแนะนำว่า TCMs ที่อาศัยการบำรุงไตและการกระตุ้นกลยุทธ์เลือด สามารถลดระดับน้ำตาลในเลือด ส่งเสริมการไหลเวียน และปรับปรุงการทำงานของสมองบกพร่อง ใบสั่งยา BSHX เป็นตัวแทนของ TCM เหล่านี้ การศึกษาทางคลินิกเบื้องต้นของเราแสดงให้เห็นว่าใบสั่งยา BSHX สามารถลดระดับน้ำตาลในเลือด โฮโมซิสเทอีน (HCY) และโปรตีน C-reactive ความไวสูง (hs-CPR) ในซีรัมได้อย่างมีประสิทธิภาพ และปรับปรุงการทำงานขององค์ความรู้ของผู้ป่วยโรคเบาหวานที่มีความบกพร่องทางสติปัญญาเล็กน้อย (MCI) [12]. อย่างไรก็ตาม ยังไม่มีหลักฐานที่จะพิสูจน์ประสิทธิภาพและกลไกทางเภสัชวิทยาจนถึงขณะนี้
ในการศึกษานี้ เราพบว่าสารสกัด BSHX สามารถลดอัตราการมีชีวิตของเซลล์ที่เกิดจาก HG ตามที่วัดโดย MTT, LDH assay เพื่อสำรวจเพิ่มเติมถึงผลการป้องกันของสารสกัด BSHX ต่อความมีชีวิตของเซลล์ เราได้ศึกษาการตายของเซลล์โดย Hoechst 33258 และการวิเคราะห์การย้อมสี AO/EB ผลการศึกษาพบว่าสารสกัด BSHX สามารถลดการตายของเซลล์ที่เกิดจาก HG ได้อย่างมีนัยสำคัญ ในฐานะที่เป็นเครื่องหมายของการตายของเซลล์ แคสเปส-3 และ PARP เพิ่มขึ้นอย่างมีนัยสำคัญหลังการรักษาด้วย HG แต่การกระตุ้นปัจจัยโปรอะพอพโทซิสเหล่านี้ถูกยับยั้งโดยสารสกัด BSHX ในลักษณะที่ขึ้นกับความเข้มข้น ผลลัพธ์ข้างต้นระบุว่าสารสกัด BSHX มีผลในการป้องกันความเสียหายของเซลล์ PC12 ที่เกิดจาก HG
ROS เกิดขึ้นระหว่างกระบวนการออกซิเดชันฟอสโฟรีเลชั่นของเซลล์ และการเพิ่มขึ้นของการผลิตหรือความเสียหายของระบบต้านอนุมูลอิสระสามารถนำไปสู่ความเครียดจากปฏิกิริยาออกซิเดชันในเซลล์ [21] จากการศึกษาพบว่าน้ำตาลกลูโคสสูงสามารถก่อให้เกิดการสะสมของ ROS ภายในเซลล์และในที่สุดก็เป็นเส้นทางการส่งสัญญาณ apoptotic และกลไกทั่วไปของภาวะแทรกซ้อนจากเบาหวานคือความเครียดจากปฏิกิริยาออกซิเดชัน [22, 23] ผลลัพธ์ของเราแสดงให้เห็นว่าระดับน้ำตาลในเลือดสูงอาจทำให้ ROS เพิ่มขึ้นในเซลล์ PC12 ซึ่งสอดคล้องกับการศึกษาก่อนหน้านี้ [24] เป็นที่คาดการณ์ว่าความเป็นพิษของกลูโคสสูงต่อเซลล์อาจทำได้โดยกระบวนการอะพอพโทซิสที่เกิดจาก ROS ไมโตคอนเดรียเป็นแหล่งสำคัญของการผลิต ROS ภายในเซลล์และอวัยวะเป้าหมายหลักสำหรับการโจมตี ROS เช่นกัน [25] ภายใต้สภาวะทางพยาธิวิทยา การเพิ่มขึ้นอย่างรวดเร็วของ ROS อาจส่งผลให้เกิดความผิดปกติของไมโตคอนเดรีย เยื่อหุ้มไมโตคอนเดรียอาจยุบตัว และในที่สุดก็นำไปสู่การตายของเซลล์ [26] ดังนั้นเราจึงตรวจพบความสมบูรณ์ของไมโตคอนเดรีย ผลลัพธ์ของเราแสดงให้เห็นว่าระดับกลูโคสสูงลดศักยภาพของเยื่อหุ้มไมโตคอนเดรียอย่างมีนัยสำคัญ เพิ่มอัตราส่วนของ Bax/Bcl-2 ที่ควบคุมสวิตช์ของรูพรุนการเปลี่ยนผ่านของไมโตคอนเดรีย (MPTP) และส่งเสริมการรั่วของไซโตโครม ซี ในขณะที่สารสกัด BSHX สามารถทำได้ ย้อนกลับการเปลี่ยนแปลงเหล่านี้ สิ่งเหล่านี้ชี้ให้เห็นว่าสารป้องกันระบบประสาทของสารสกัด BSHX กับเซลล์ PC12 ที่เกิดจาก HG อาจเป็นผลมาจากการรักษาความสมบูรณ์ของไมโตคอนเดรีย
เส้นทางการส่งสัญญาณ MAPK ยังมีบทบาทสำคัญในการตายของเซลล์ JNK, ERK และ p38 MAPK เป็นสมาชิกที่มีการศึกษามากที่สุดในตระกูล MAPK วิธีการหลักในการดำเนินการคือการเติมฟอสโฟรีเลตบริเวณเฉพาะของพวกมัน ซึ่งจะควบคุมการตายของเซลล์ [8, 27, 28] นอกจากนี้ การศึกษาได้แสดงให้เห็นว่าการผลิต ROS ที่มากเกินไปสามารถกระตุ้น p38MAPK phosphorylation [29-31] และ ROS สามารถกระตุ้นหรือไกล่เกลี่ยการเปิดใช้งานเส้นทาง MAPK [32] สิ่งเร้าระดับเซลล์หลายอย่างที่กระตุ้นการผลิต ROS แบบคู่ขนานสามารถกระตุ้นเส้นทาง MAPK ในเซลล์หลายประเภท [32, 33] กลไกที่เป็นไปได้สำหรับการเปิดใช้งาน MAPK โดย ROS อาจรวมถึงการปิดใช้งานและการเสื่อมสภาพของ MAPK phosphatase ที่คงวิถีทางไว้ในสถานะที่ไม่ใช้งาน [19] ในทางกลับกัน เพื่อยืนยันเพิ่มเติมว่าวิถีของ MAPK ถูกกระตุ้นโดยการสร้าง ROS หรือไม่ เซลล์ได้รับการบำบัดด้วยสารต้านอนุมูลอิสระ (เช่น NAC, ROS scavenger) เพื่อป้องกันการสะสม ROS และผลการศึกษาพบว่าการกระตุ้นด้วย MAPK เกือบจะถูกยับยั้งหลังจากการกระตุ้นเซลล์ด้วยสิ่งเร้าระดับเซลล์ [32, 33] ซึ่งบ่งชี้ถึงการมีส่วนร่วมของการหยุดการทำงานของ ROS ของเส้นทาง MAPK นอกจากนี้ จากการศึกษาพบว่าเมื่อเซลล์ได้รับการรักษาด้วยสารยับยั้ง JNK SP600125 ที่จำเพาะ การตายของเซลล์ที่เกิดจาก Cardiotoxin III อาจถูกปิดกั้น [34] การศึกษาก่อนหน้านี้ของเราพบว่าใบสั่งยา Wu-Zi-Yan-Zong (MWP) ที่แก้ไขแล้วสามารถยับยั้งการเปิดใช้งาน ERK/p38 MAPK ใน A -activated BV2 microglia [10] อย่างไรก็ตาม ในการศึกษานี้ เราพบว่าสารสกัด BSHX สามารถยับยั้งฟอสโฟรีเลชั่นของ JNK และ p38 MAPK และเราไม่ได้รับผลลัพธ์เช่นเดียวกันกับ p-ERK เราคาดการณ์ว่าปลิงมีบทบาทที่แตกต่างกันในสารสกัด BSHX ผลการวิจัยชี้ให้เห็นว่ากลไกการป้องกันอื่นของสารสกัด BSHX ต่อการตายของเซลล์ในเซลล์ PC12 ที่เกิดจาก HG อาจผ่านการควบคุมเส้นทางการส่งสัญญาณ JNK/p38 MAPK
บทสรุป
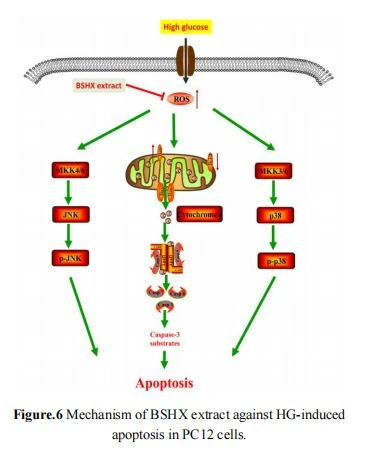
สารสกัด BSHX ซึ่งเป็นสูตรสมุนไพรหลายชนิด แสดงผลทางประสาทในเซลล์ PC12 ต่อการดูถูก HG สารสกัด BSHX ยับยั้งการตายของเซลล์ PC12 ที่เกิดจาก HG ได้อย่างมีประสิทธิภาพโดยการลดการสร้าง ROS ภายในเซลล์ รักษาความสมบูรณ์ของเยื่อหุ้มไมโตคอนเดรีย และปิดกั้นเส้นทางการส่งสัญญาณของ caspase-3 และ JNK/p38 MAPK (รูปที่ 6) โดยรวมแล้ว การค้นพบของเราชี้ให้เห็นว่าสารสกัด BSHX เป็นสารที่มีแนวโน้มในการรักษา DE ในการใช้งานทางคลินิก
ผลงานของผู้เขียน
คิดและออกแบบการทดลอง: Zeng KW, Wang XM ทำการทดลอง: Zhao SY วิเคราะห์ข้อมูล: Zhao SY, Zeng KW และ Wang XM รีเอเจนต์/วัสดุ/เครื่องมือวิเคราะห์ที่สนับสนุน: Zhao SY, Dong X, Tu PF, Zeng KW และ Wang XM เขียนพ่อ: Zhao SY
อ้างอิง
1 Riederer P, Korczyn AD, Ali SS และอื่น ๆ สมองของผู้ป่วยเบาหวานและการรับรู้ J Neural Transm 2017, 124: 1-24.
2. ฮาเหม็ด SA อาการบาดเจ็บที่สมองด้วยโรคเบาหวาน: หลักฐาน กลไก และผลการรักษา ผู้เชี่ยวชาญ Rev Clin Phar 2017, 10: 409-428.
3. Testa R, Bonfigli AR, Prattichizzo F และอื่น ๆ ทฤษฎี "ความจำเมตาบอลิซึม" และการรักษาภาวะน้ำตาลในเลือดสูงในระยะเริ่มต้นในการป้องกันภาวะแทรกซ้อนจากเบาหวาน Nutr 2017, 9: 437-445.
4. Ly JD, Grubb DR, Lawen A. ศักยภาพของเยื่อหุ้มยล (Δψm) ในการตายของเซลล์; การปรับปรุง. อะพอพโทซิส 2003, 8: 115-128.
5. Aouacheria A, Baghdiguian S, Lamb HM, Huska JD, Pineda FJ, Harwick J M. การเชื่อมโยงพลวัตของยลและเหตุการณ์ชีวิตหรือความตายผ่านโปรตีนในตระกูล Bcl-2 Neurochem Int 2017, 109: 141-161.
6. Bernardi P, Scorrano L, Colonna R และอื่น ๆ ไมโตคอนเดรียและการตายของเซลล์ ด้านกลไกและประเด็นระเบียบวิธี ก.พ. 2542, 264: 687-701
7. Yang L, Wu L, Du S และอื่น ๆ 1,25-(OH)2D3 ยับยั้งการตายแบบอะพอพโทซิสที่เกิดจากกลูโคสและการผลิต ROS ในเซลล์เยื่อบุช่องท้องของมนุษย์ผ่านทางวิถี MAPK/P38 Mol Med Rep 2016, 14: 839-844.
8. Tabakman R, Jiang H, Schaefer E และอื่น ๆ การปรับสภาพของปัจจัยการเจริญเติบโตของเส้นประสาทจะลดทอนออกซิเจนและไคเนส 1 ขั้วอะมิโนที่เหนี่ยวนำโดยขาดออกซิเจนและกลูโคส และการกระตุ้นไคเนส p38 และ p38 ที่กระตุ้นความเครียดและให้การป้องกันระบบประสาทในแบบจำลอง pheochromocytoma PC12 เจ โมล Neurosci 2004, 22: 237-250
9. Zou W, Zeng J, Zhuo M, Xu W, Sun L, Wang J, et al. การมีส่วนร่วมของ caspase-3 และ p38 mitogen-activated protein kinase ในการตายของเซลล์ที่เกิดจากโคบอลต์คลอไรด์ในเซลล์ PC12 J Neurosci Res 2002, 67: 837–843.
10. Yu Q, เพลง FJ, Chen JF, et al. ฤทธิ์ต้านการอักเสบของการอักเสบของใบสั่งยาดัดแปลง Wu-Zi-Yan-Zong ใน -Amyloid-Stimulated BV2 Microglia ผ่านเส้นทางการส่งสัญญาณ NF-κB และ ERK / p38 MAPK Evid-Based Compl Alt 2017, 2017: 1-10.
11. Zeng KW, Zhang T, Fu H และอื่น ๆ ใบสั่งยาดัดแปลง Wu-Zi-Yan-Zong ซึ่งเป็นสูตรสมุนไพรจีนโบราณ ยับยั้งกระบวนการอักเสบของเส้นประสาทที่เกิดจากไลโปโพลีแซ็กคาไรด์ใน astrocytes ของหนูผ่านทางเส้นทางการส่งสัญญาณ NF-κB และ JNK/p38 MAPK Phytomed 2012, 19: 122-129.
12. Fu H, Lin WW, Wang H และอื่น ๆ ผลของการกําหนด Bushen Huoxue ต่อการรักษาความบกพร่องทางสติปัญญาระดับเล็กน้อยของโรคเบาหวานประเภท 2 Chin J Integr Trad West Med 2017, 37: 661-665.
13. Baskić D, Popović S, Ristić P และอื่น ๆ การวิเคราะห์อะพอพโทซิสที่เกิดจากไซโคลเฮกซิไมด์ในเม็ดเลือดขาวของมนุษย์: กล้องจุลทรรศน์เรืองแสงโดยใช้แอนเนกซิน V/โพรพิเดียม ไอโอไดด์ กับอะคริดีน ออเรนจ์/เอธิเดียม โบรไมด์ เซลล์ไบโอล. Int 2006, 30: 924–932.
14. Galluzzi L, Lópezsoto A, Kumar S และอื่น ๆ แคสเปสเชื่อมต่อสัญญาณการตายของเซลล์กับสภาวะสมดุลของสิ่งมีชีวิต ภูมิคุ้มกัน 2016, 44: 221-231.
15. Hamed S, Brenner B, Roguin A. Nitric oxide: ปัจจัยสำคัญที่อยู่เบื้องหลังความผิดปกติของเซลล์ต้นกำเนิดบุผนังหลอดเลือดในโรคเบาหวานประเภท-2 Cardiovasc Res 2011, 91: 9-15.
16. Perelman A, Wachtel C, Cohen M และอื่น ๆ JC-1: ความยาวคลื่นที่กระตุ้นทางเลือกช่วยให้ไซโตเมตรีศักย์ของเมมเบรนยล การตายของเซลล์ 2012, 3: e430
17. Perry SW, Norman JP, Barbieri J, และคณะ โพรบศักย์ของเยื่อหุ้มไมโตคอนเดรียและการไล่ระดับโปรตอน: คู่มือการใช้งานจริง เทคโนโลยีชีวภาพ 2011, 50: 98-115.
18. Chipuk JE, Green D R. โปรตีน BCL-2 กระตุ้นการซึมผ่านของเยื่อหุ้มชั้นนอกของไมโตคอนเดรียได้อย่างไร Trends Cell Biol 2008, 18:157-164.
19. Son Y, Cheong YK, Kim NH และอื่น ๆ ไคเนสโปรตีนที่กระตุ้นด้วยไมโตเจนและชนิดออกซิเจนปฏิกิริยา: ROS สามารถกระตุ้นเส้นทาง MAPK ได้อย่างไร J การส่งสัญญาณ 2011: 792639
20. Zhang L, Zhang Z, Chen F และอื่น ๆ อะโรมาติกเฮเทอโรไซคลิกเอสเทอร์ของพอโดฟิลโลทอกซินออกฤทธิ์ต้าน MDR ในเซลล์มะเร็งเม็ดเลือดขาว K562/ADR ของมนุษย์ผ่านทางเส้นทางส่งสัญญาณ ROS/MAPK Eur J Med Chem 2016, 123:226-235.
21. Kanninen K, White AR, Koistinaho J และอื่น ๆ การกำหนดเป้าหมาย Glycogen Synthase Kinase-3 เพื่อประโยชน์ในการรักษาต่อความเครียดจากปฏิกิริยาออกซิเดชันในโรคอัลไซเมอร์: การมีส่วนร่วมของ Nrf2-ARE Pathway Int J Alzheimers Dis 2011, 2011:985085.
22. Babizhayev MA, Strokov IA, Novikov VV, และคณะ บทบาทของความเครียดจากปฏิกิริยาออกซิเดชันในโรคระบบประสาทเบาหวาน: การสร้างชนิดอนุมูลอิสระในปฏิกิริยาไกลเคชันและความหลากหลายของยีนที่เข้ารหัสเอนไซม์ต้านอนุมูลอิสระต่อความอ่อนแอทางพันธุกรรมต่อโรคระบบประสาทเบาหวานในประชากรของผู้ป่วยเบาหวานชนิดที่ 1 Cell Biochem Biophys 2015, 71: 1425-1443.
23. Volpe C, Villardelfino PH, Dos PA และอื่น ๆ การตายของเซลล์ ชนิดของออกซิเจนที่เกิดปฏิกิริยา (ROS) และภาวะแทรกซ้อนจากเบาหวาน Cell Death Dis 2018, 9: 119-127.
24. Chen K, Zhang M, Chen BD และอื่น ๆ Ginkgolide B ยับยั้งการตายของเซลล์ในเซลล์บุผนังหลอดเลือดจากสายสะดือของมนุษย์ที่กระตุ้นด้วยกลูโคสสูง แถลงการณ์เภสัชวิทยาจีน 2017, 33: 378-383.
25. Goldsteins G, Keksa-Goldstein V, Ahtoniemi T และอื่น ๆ บทบาทที่เป็นอันตรายของ Superoxide Dismutase ใน Mitochondrial Intermembrane Space เจ ไบโอล เคม 2008, 283: 8446-8452.
26. โคแวน KJ ชั้น KB. ไคเนสโปรตีนที่กระตุ้นด้วยไมโตเจน: เส้นทางการส่งสัญญาณใหม่ที่ทำงานในการตอบสนองของเซลล์ต่อความเครียดจากสิ่งแวดล้อม J Exp Bio 2003, 206: 1107.
27. Wu N, Lin X, Zhao X และอื่น ๆ MiR-125b ทำหน้าที่เป็นเนื้องอกในเซลล์ไกลโอบลาสโตมาและยับยั้งการตายของเซลล์ผ่านวิถีทางที่ไม่ขึ้นกับ p53 และ p38MAPK Brit J Cancer 2013, 109: 2853.
28. Shi L, Yu X, Yang H และอื่น ๆ ผลิตภัณฑ์ขั้นสุดท้ายจากกระบวนการไกลเคชั่นจะกระตุ้นการตายของเซลล์เยื่อบุผิวกระจกตาของมนุษย์ผ่านการสร้างสายพันธุ์ออกซิเจนที่มีปฏิกิริยาและการกระตุ้นเส้นทาง JNK และ p38 MAPK พลัสวัน 2013, 8: e66781.
29. Chung H, Kim E, Lee DH และอื่น ๆ Ghrelin ยับยั้งการตายของเซลล์ในเซลล์ประสาท hypothalamic ในระหว่างการกีดกันออกซิเจนและกลูโคส ต่อมไร้ท่อ 2007, 148: 148.
30. Palanivel K, Kanimozhi V, Kadalmani B. Verrucarin A เปลี่ยนแปลงโปรตีนควบคุมวัฏจักรเซลล์และกระตุ้นการตายของเซลล์โดยการกระตุ้น p38MAPK ที่ขึ้นกับออกซิเจนที่มีปฏิกิริยาในสายเซลล์มะเร็งเต้านมของมนุษย์ MCF-7 ชีววิทยาเนื้องอก 2014, 35: 10159.
31. Hua X, Chi W, Su L และอื่น ๆ การบาดเจ็บออกซิเดชันที่เกิดจาก ROS ที่เกี่ยวข้องกับการเกิดโรคของเชื้อรา Keratitis ผ่าน p38 MAPK Activation ตัวแทนวิทย์ 2017, 7: 10421.
32. Mccubrey JA, Lahair MM, Franklin RA. การกระตุ้นที่เหนี่ยวนำโดยสปีชีส์ออกซิเจนที่เกิดปฏิกิริยาของเส้นทางการส่งสัญญาณ MAP kinase สัญญาณรีดอกซ์ของสารต้านอนุมูลอิสระ 2006, 8: 1775-1789
33. Torres M, Forman H J. Redox การส่งสัญญาณและเส้นทาง MAP kinase ไบโอแฟกเตอร์ 2003, 17: 287-296.
34. Chien CM, Yang SH, Yang CC, ช้าง LS, Lin SR. Cardiotoxin III ชักนำ c-jun N-terminal การตายแบบอะพอพโทซิสที่ขึ้นกับไคเนสใน HL-60 เซลล์มะเร็งเม็ดเลือดขาวของมนุษย์ ฟังก์ชัน Biochem ของเซลล์ 2008, 26: 111-118