Lipoxidation และภูมิคุ้มกันมะเร็ง
Nov 09, 2023
เชิงนามธรรม
ปฏิกิริยาออกซิเดชันเป็นปฏิกิริยาที่รู้จักกันดีระหว่างสายพันธุ์อิเล็กโตรฟิลิกคาร์บอนิล ซึ่งเกิดขึ้นระหว่างการออกซิเดชันของไขมัน กับโปรตีนจำเพาะ ซึ่งโดยส่วนใหญ่แล้วจะทำให้เกิดการเปลี่ยนแปลงในการทำงานของโปรตีน สิ่งนี้สามารถเกิดขึ้นได้ภายใต้สภาวะทางสรีรวิทยา แต่ในหลายกรณี มีความเกี่ยวข้องกับกระบวนการทางพยาธิวิทยา รวมถึงมะเร็งด้วย การเกิดปฏิกิริยาออกซิเดชันอาจส่งผลต่อการพัฒนาของมะเร็งโดยอาศัยผลต่อเซลล์เนื้องอก เช่นเดียวกับการเปลี่ยนแปลงส่วนประกอบของภูมิคุ้มกันและการปรับการตอบสนองของระบบภูมิคุ้มกันที่ตามมา การก่อตัวของโปรตีน adducts ส่งผลต่อโปรตีนชนิดต่างๆ ในมะเร็ง โดยกระตุ้นให้เกิดกลไกต่างๆ เช่น การเพิ่มจำนวน การแยกเซลล์ และการตายของเซลล์ เป็นต้น ซึ่งเปลี่ยนแปลงการลุกลามของมะเร็ง ผลลัพธ์ที่แตกต่างที่ได้รับบันทึกไว้ว่าการก่อตัวของสารไลโปซิเดชั่นสามารถมีฤทธิ์ต้านสารก่อมะเร็งหรือสารก่อมะเร็งได้ ขึ้นอยู่กับชนิดของเซลล์ที่ได้รับผลกระทบและสารที่จำเพาะก่อตัวขึ้น นอกจากนี้ adducts ที่เกิดจาก lipoxidation อาจเปลี่ยนแปลงการตอบสนองของระบบภูมิคุ้มกัน ซึ่งส่งผลให้เกิดการเปลี่ยนแปลงเชิงบวกหรือเชิงลบในการลุกลามของมะเร็ง ดังนั้นในการทบทวนนี้ เราจึงสรุปผลกระทบของสาร lipoxidation ในเซลล์มะเร็งและส่วนประกอบของระบบภูมิคุ้มกัน และผลที่ตามมาในการวิวัฒนาการของมะเร็งประเภทต่างๆ

ประโยชน์ของ cistanche tubulosa-Antitumor
1. บทนำ
ความเครียดจากปฏิกิริยาออกซิเดชันมักเกี่ยวข้องกับการเพิ่มขึ้นของสายพันธุ์ออกซิเจนปฏิกิริยา (ROS) หรือการลดลงของการป้องกันสารต้านอนุมูลอิสระ ซึ่งในทางกลับกันสามารถสนับสนุนการเกิดออกซิเดชันของกรดไขมันไม่อิ่มตัวเชิงซ้อน (PUFA) ในชั้นไลปิดของเมมเบรน ซึ่งนำไปสู่การก่อตัวของ อัลดีไฮด์ที่มีปฏิกิริยาสูง [1] อัลดีไฮด์ที่ทำปฏิกิริยาด้วยอิเล็กโทรฟิลิกเหล่านี้สามารถแพร่กระจายจากแหล่งกำเนิดและทำปฏิกิริยากับชีวโมเลกุลที่สำคัญ เช่น โปรตีน แม้จะอยู่ในบริเวณที่ห่างไกล [2] ทำให้เกิดกระบวนการลิปิด็อกซิเดชัน ปฏิกิริยาออกซิเดชันเป็นปฏิกิริยาที่รู้จักกันดีระหว่างอิเล็กโทรฟิลิกคาร์บอนิลลิปิดที่เกิดขึ้นระหว่างการออกซิเดชันของลิพิดและโปรตีนจำเพาะ [3] ผลิตภัณฑ์ออกซิเดชันของไขมันอาจสะสมและปรับเปลี่ยนโปรตีนโดยโควาเลนต์ ซึ่งไม่เพียงขับเคลื่อนกระบวนการทางสรีรวิทยาเท่านั้น แต่ยังรวมถึงกระบวนการทางพยาธิวิทยาด้วยการเปลี่ยนแปลงโครงสร้างและการทำงานของโปรตีนหรือเปลี่ยนเส้นทางการส่งสัญญาณ สิ่งนี้มีผลกระทบต่อโรคต่างๆ เช่น มะเร็ง ซึ่งผลิตภัณฑ์จากออกซิเดชันของไขมันอาจมีอิทธิพลต่อการลุกลามของมะเร็งโดยตรง โดยผ่านการปรับพฤติกรรมของเซลล์มะเร็ง หรือผ่านการปรับการตอบสนองของระบบภูมิคุ้มกัน (รูปที่ 1) [4] ผลกระทบทางชีวภาพของสายพันธุ์ลิพิดคาร์บอนิลที่เกิดปฏิกิริยาซึ่งเกิดจากกระบวนการลิพิดเพอออกซิเดชันนั้นถูกปรับตามความเข้มข้นและความพร้อมใช้งานในท้องถิ่น ซึ่งขึ้นอยู่กับลิพิดเริ่มต้นที่กำหนดเป้าหมายโดยเปอร์ออกซิเดชัน รวมถึงการมีอยู่ของระบบล้างพิษและการผันคำกริยาของเซลล์ และความสามารถของเซลล์ เพื่อย่อยสลายโปรตีนดัดแปลง [5] นอกจากนี้ สิ่งที่ค่อนข้างสำคัญเช่นกัน ขึ้นอยู่กับชนิดของโปรตีนที่ถูกดัดแปลง ผลกระทบที่แตกต่างกันสามารถเกิดขึ้นได้ในการส่งสัญญาณทางสรีรวิทยาหรือพยาธิสรีรวิทยา [6]
ประโยชน์ของซิสตานช์สำหรับระบบภูมิคุ้มกันของผู้ชาย
โมเลกุลที่ดัดแปลงด้วยออกซิเดชั่น รวมถึง lipoxidation adducts ก็รายงานว่ามีบทบาทสำคัญในการปรับการอักเสบและการตอบสนองของระบบภูมิคุ้มกัน พวกมันสามารถกระตุ้นภูมิคุ้มกันปรับตัวและมีส่วนเกี่ยวข้องในการเกิดโรคต่างๆ [7] ในความเป็นจริง มีรายงานว่าปฏิกิริยาโควาเลนต์ของผลิตภัณฑ์อิเล็กโทรฟิลิกอัลดีไฮดิกกับโปรตีนอาจนำไปสู่การก่อตัวของชีวโมเลกุลที่สร้างภูมิคุ้มกัน [8] และผลิตภัณฑ์อิพอกซิเดชันเหล่านี้อาจเปลี่ยนแปลงการส่งสัญญาณของเซลล์ในการตอบสนองของระบบภูมิคุ้มกันในโรคหลายชนิด รวมถึงมะเร็ง [9 ] นอกจากนี้ เป็นที่ทราบกันดีว่าระบบภูมิคุ้มกันมีบทบาทสำคัญในการลุกลามของมะเร็ง ในเรื่องนี้ การศึกษาหลายชิ้นในช่วงไม่กี่ปีที่ผ่านมาได้แสดงให้เห็นถึงบทบาทสองประการของเม็ดเลือดขาวเองที่มีส่วนทำให้เกิดสภาพแวดล้อมจุลภาคแบบ "ก่อเนื้องอก" หรือต่อสภาพแวดล้อมจุลภาค "ต่อต้านเนื้องอก" [10] ในการทบทวนนี้ เราจะอภิปรายและสรุปความก้าวหน้าล่าสุดในการสร้างลิปิดซิเดชันและอิทธิพลของมันต่อพยาธิสรีรวิทยาของมะเร็ง นอกจากนี้เรายังจะเน้นย้ำถึงผลของการเกิดปฏิกิริยาไลออกซิเดชันต่อเนื้องอกและเซลล์ภูมิคุ้มกันในระหว่างการลุกลามของมะเร็ง

รูปที่ 1 แผนภาพแสดงการก่อตัวของอีพอกซิเดชันแอดดักส์และผลกระทบที่เป็นไปได้ต่อการลุกลามของมะเร็ง
2. เคมีของสารเติมอีพอกซิเดชันและความเกี่ยวข้องในพยาธิสรีรวิทยาของโรค
กรดไขมันไม่อิ่มตัวเป็นเป้าหมายหลักของอนุมูลออกซิเจนที่นำไปสู่การก่อตัวของผลิตภัณฑ์เปอร์ออกซิเดชันหลัก ลิพิดที่ถูกออกซิไดซ์เหล่านี้สามารถสลายตัวเพื่อสร้างผลิตภัณฑ์เปอร์ออกซิเดชันทุติยภูมิ (อนุพันธ์ที่มีคาร์บอนิลเป็นส่วนประกอบหลัก) และสามารถทำปฏิกิริยาโดยปฏิกิริยาเพิ่มเติมของกลุ่มคาร์บอนิล (อิเล็กโทรฟิล) กับหมู่อะมิโนและไทออล (นิวคลีโอไทล์) ซึ่งนำไปสู่การก่อตัวของ adducts โปรตีนลิพิดหรือ ผลิตภัณฑ์อิพอกซิเดชัน [11] (รูปที่ 1) อัลดีไฮด์และสายพันธุ์อิเล็กโตรฟิลิกคาร์บอนิลอื่นๆ ที่สร้างขึ้นจะขึ้นอยู่กับ PUFA เริ่มต้นที่ถูกกำหนดเป้าหมายโดยเปอร์ออกซิเดชัน ในแง่นี้ เปอร์ออกซิเดชันของ PUFA n-3 (กรด -ไลโนเลนิกและกรดโดโคซาเฮกซาอิโนอิก) ทำให้เกิด 4-ไฮดรอกซี-เฮกนัล (4-HHE) เป็นหลัก ในขณะที่เปอร์ออกซิเดชันของ n{{9} } PUFA เช่น กรดไลโนเลอิกและกรดอาราชิโดนิก จะสร้าง 4-ไฮดรอกซี-2-โนนีนัล (HNE) เป็นส่วนใหญ่ ซึ่งเป็นอัลดีไฮด์ที่เกิดปฏิกิริยาอิเล็กโตรฟิลิกที่มีการศึกษาอย่างเข้มข้นที่สุด [12–14] ประเภทของ adducts ที่สามารถเกิดขึ้นได้นั้นขึ้นอยู่กับปฏิกิริยาของสายพันธุ์ไขมันที่ถูกออกซิไดซ์ นอกจากนี้ ปฏิกิริยาของสารประกอบเหล่านี้กับโปรตีนสามารถเกิดขึ้นได้จากปฏิกิริยาหลักสองปฏิกิริยา: (i) การเติมหมู่อัลดีไฮดิกเข้ากับกลุ่มอะมิโนของโปรตีน (เช่น ไลซีน) ทำให้เกิด adduct พื้นฐานของชิฟฟ์โดยการสูญเสียน้ำ และ (ii) โดยการเติม Michael ให้กับนิวคลีโอไทล์โดยพันธะคู่ C˭C ที่ใช้งานอยู่ [3,9] แม้ว่าการก่อตัวของฐานชิฟฟ์จะย้อนกลับได้ แต่การก่อตัวของฐานของชิฟฟ์นั้นค่อนข้างคงที่ ดังนั้นการก่อตัวของฐานอย่างหลังจึงดูเหมือนจะเป็นที่นิยมในสิ่งมีชีวิต สิ่งสำคัญคือต้องพิจารณาด้วยว่าอิพอกซิเดชันขึ้นอยู่กับความสมดุลของอัตราการก่อตัวของผลิตภัณฑ์ออกซิเดชันของไขมัน ปฏิกิริยาของมัน และอัตราการล้างพิษโดยเอนไซม์ เช่น กลูตาไธโอนเปอร์ออกซิเดส [15] กลูตาไธโอน S-transferases (GST) [16 ] หรืออัลโดคีโตรีดักเตส (AKR) [17] การเกิดปฏิกิริยาออกซิเดชั่นสามารถเกิดขึ้นได้ในบุคคลที่มีสุขภาพดี [18,19] เนื่องจากการดัดแปลงโปรตีนโดยสายพันธุ์อิเล็กโทรฟิลิกที่ทำปฏิกิริยาไม่เพียงแต่อาจยับยั้งการทำงานของโปรตีนเท่านั้น แต่ในบางกรณียังอาจทำให้มีการทำงานเพิ่มขึ้นอีกด้วย แม้จะนำไปสู่ผลประโยชน์ก็ตาม [20 –22]. อย่างไรก็ตาม ความสำคัญของการเกิด lipoxidation และความเกี่ยวข้องทางพยาธิสรีรวิทยานั้นได้มีการพูดคุยกันอย่างกว้างขวางในงานหลายชิ้น [14,23–26] ในความเป็นจริง การวัด adducts โปรตีนทั่วโลก เช่น adducts HNE มักใช้เป็นตัวบ่งชี้ทางชีวภาพของการอักเสบ/ความเครียดจากปฏิกิริยาออกซิเดชัน/การเกิดออกซิเดชันของไขมันภายใต้สภาวะทางพยาธิวิทยาต่างๆ [27] การสะสมของผลิตภัณฑ์ lipid peroxidation และสาร adducts ของ lipoxidation มีส่วนเกี่ยวข้องกับการแก่ชราและในโรคที่ชัดเจนของตับ ไต ระบบประสาทและระบบหัวใจและหลอดเลือด ความผิดปกติของต่อมไร้ท่อและเมตาบอลิซึม เบาหวานและภาวะแทรกซ้อน และความเครียดจากปฏิกิริยาออกซิเดชันอื่นๆ โรคที่เกี่ยวข้อง [28] นอกจากนี้ lipoxidation ยังเกี่ยวข้องอย่างมากกับโรคความเสื่อมเรื้อรัง เช่น มะเร็ง หัวข้อเหล่านี้จะกล่าวถึงในหัวข้อต่อไปนี้

cistanche tubulosa-ปรับปรุงระบบภูมิคุ้มกัน
คลิกที่นี่เพื่อดูผลิตภัณฑ์ Cistanche Enhance Immunity
【สอบถามเพิ่มเติม】 อีเมล:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
3. การเกิดปฏิกิริยาออกซิเดชั่นในมะเร็ง: ส่งผลต่อเนื้องอกและเซลล์ภูมิคุ้มกัน
การก่อมะเร็งและการรักษามะเร็งได้รับอิทธิพลอย่างมากจากความเครียดจากปฏิกิริยาออกซิเดชันและการเกิดออกซิเดชันของไขมัน [28] และผลที่ตามมาคือ adducts ที่เกิดจากปฏิกิริยาออกซิเดชัน ผลิตภัณฑ์คาร์บอนิลที่เกิดปฏิกิริยาซึ่งมีการรายงานมากที่สุดที่เกิดขึ้นระหว่างการเกิดออกซิเดชันของไขมันได้แก่ malondialdehyde (MDA), อะโครลีน (ACR), 4-ไฮดรอกซี-เฮกนัล (4-HHE) และ 4-ไฮดรอกซี-2- nonenal (HNE) [29] และการศึกษาหลายชิ้นรายงานการก่อตัวของ adducts โปรตีนที่มีโปรตีนหลายชนิดในมะเร็งประเภทต่างๆ [30–33] ในความเป็นจริง ปฏิกิริยาที่มากขึ้นของ HNE ซึ่งเป็นหนึ่งในผลิตภัณฑ์หลักของการเกิด lipid peroxidation กับโปรตีน ทำให้เกิดการสันนิษฐานว่า HNE มีผลเป็นพิษต่อเซลล์และเป็นสารก่อมะเร็งผ่านการปรับโปรตีนที่เกี่ยวข้องกับการซ่อมแซม DNA [34] นอกจากนี้ งานอื่นๆ แสดงให้เห็นว่าความเครียดจากปฏิกิริยาออกซิเดชันและผลิตภัณฑ์อิเล็กโทรฟิลิกลิปิดเปอร์ออกซิเดชัน เช่น HNE ยังมีบทบาทสำคัญในการเหนี่ยวนำให้เกิดการหยุดวัฏจักรของเซลล์ กระบวนการสร้างความแตกต่าง และการตายของเซลล์ในเซลล์มะเร็ง [35] อย่างไรก็ตาม การศึกษาบางชิ้นแสดงผลที่ขัดแย้งกันเกี่ยวกับอิทธิพลของ HNE หรือ HNE adducts ในมะเร็งประเภทต่างๆ ของมนุษย์ [36–39] และรูปแบบของลักษณะทางเนื้อเยื่อวิทยาของ HNE ได้รับการแสดงให้เห็นว่าขึ้นอยู่กับต้นกำเนิดทางเนื้อเยื่อวิทยาของมะเร็ง [40] . ในทำนองเดียวกัน เซลล์มะเร็งมีความไวต่อผลิตภัณฑ์ออกซิเดชันของไขมันเนื่องจากผลิตภัณฑ์เหล่านี้ทำหน้าที่เป็นตัวส่งสารพิษตัวที่สองของอนุมูลอิสระ เช่นเดียวกับการส่งสัญญาณโมเลกุลและปัจจัยควบคุมการเจริญเติบโตที่มีอิทธิพลต่อกระบวนการสำคัญสำหรับการลุกลามของมะเร็ง เช่น การแพร่กระจาย การแยกความแตกต่าง และการตายของเซลล์ [28] อย่างไรก็ตาม มีความคลาดเคลื่อนในการปรากฏตัวของสารเติมออกซิเดชั่นในมะเร็งประเภทต่างๆ ตัวอย่างเช่น ในเซลล์ตับพบว่า HNE ส่วนใหญ่ถูกแปลงเป็นคอนจูเกต HNE-GSH ซึ่งถูกส่งออกจากเซลล์อย่างรวดเร็วและมีประสิทธิภาพ [41] อย่างไรก็ตาม ในเนื้องอก glial ของ astrocytic และ ependymal นั้น มีการตรวจพบ adducts โปรตีน HNE ในเซลล์ไมโทติค เนื้อตาย และเซลล์อะพอพโทติก และสัมพันธ์กับระดับความร้ายที่เพิ่มขึ้น [42] ความแตกต่างที่สังเกตได้ในการก่อตัวของอีพอกซิเดชัน adducts ในเนื้องอกต่างๆ อาจอธิบายได้โดย: ก) องค์ประกอบเมมเบรนที่แตกต่างกันของไขมันในเซลล์มะเร็งชนิดต่าง ๆ เช่นเดียวกับอัตราส่วนของคอเลสเตอรอล/PUFAs ที่แตกต่างกัน ซึ่งกำหนดแนวโน้มที่แตกต่างกันในการสร้างผลิตภัณฑ์ของการเกิดออกซิเดชันของไขมันและ ดังนั้น ลิพิดอิเล็กโทรฟิลิกที่แตกต่างกัน และดังนั้น adducts อิพอกซิเดชันที่แตกต่างกัน [43]; b) การแสดงออกที่สูงขึ้นของเอนไซม์ล้างพิษและโปรตีนต้านอนุมูลอิสระที่พบในเซลล์เนื้องอกบางชนิด ซึ่งส่งผลให้การเผาผลาญผลิตภัณฑ์ lipid peroxidation มีประสิทธิภาพและรวดเร็วยิ่งขึ้น [44]; c) ผลกระทบที่แตกต่างกัน ทั้งทางสรีรวิทยาหรือพยาธิวิทยา ที่ถูกกระตุ้นโดยผลิตภัณฑ์ lipid peroxidation บางชนิด ซึ่งทำหน้าที่ผ่านองค์ประกอบการตอบสนองของสารต้านอนุมูลอิสระ (ARE) เพื่อกระตุ้นการแสดงออกของเอนไซม์ที่สำคัญในการเผาผลาญ เช่น GST [45] ที่มีอิทธิพลต่อ Keap1–Nrf2– ทางเดิน ARE [46,47]; d) การก่อตัวเฉพาะที่ และ e) โปรตีนหรือเอนไซม์เป้าหมายที่ถูกใส่เข้าไปในอิเล็กโตรฟิลิกลิพิด
3.1. ผลของอิพอกซิเดชันในเซลล์เนื้องอก
ดังที่กล่าวไว้ข้างต้น ระดับของความเครียดจากปฏิกิริยาออกซิเดชัน และด้วยเหตุนี้ ระดับของผลิตภัณฑ์ลิออกซิเดชันจึงแตกต่างกันไปตามชนิดของมะเร็งโดยสัมพันธ์กับชนิดของเซลล์ ในมะเร็งตับ พบว่าระดับของผลิตภัณฑ์ lipid peroxidation ในเซลล์ตับลดลงเมื่อเปรียบเทียบกับเซลล์ตับปกติ [48,49] อาจส่งผลให้ระดับของผลิตภัณฑ์ epoxidation ลดลง ซึ่งสามารถอธิบายได้บางส่วนจากการเพิ่มขึ้นที่สังเกตได้ใน กิจกรรมของเอนไซม์ที่เผาผลาญอัลดีไฮด์ที่เป็นพิษระหว่างการเกิดมะเร็งตับหนู [50] จึงทำให้เซลล์มะเร็งได้รับการปกป้องจากพิษต่อเซลล์ของผลิตภัณฑ์อิพอกซิเดชันมากขึ้น เอนไซม์หลายชนิดที่เกี่ยวข้องกับการต้านทานเนื้องอกเนื่องจากความสามารถในการเผาผลาญไขมันอิเล็กโตรฟิลิก ในเวลาเดียวกันก็เป็นเป้าหมายของการเกิดปฏิกิริยาออกซิเดชันด้วย นี่คือกรณีของ AKR ซึ่งกระตุ้นการลดลงของคีโตนและอัลดีไฮด์ [51] หรือเอนไซม์ GST ที่เกี่ยวข้องกับการล้างพิษจากยา [3] AKR1B10 ซึ่งเป็นสมาชิกของตระกูล AKR มีการแสดงออกมากเกินไปในเนื้องอกหลายประเภท และอาจมีส่วนทำให้เกิดเนื้องอกผ่านกลไกต่างๆ นอกเหนือจากการมีส่วนร่วมในการต้านทานทางเคมี [52,53] โปรตีนนี้เป็นเป้าหมายเฉพาะสำหรับการเกิดปฏิกิริยาออกซิเดชันและการยับยั้งโดย A-class cyclopentenone prostaglandins (cyPG) และได้แสดงให้เห็นว่าความเข้มข้นต่ำของ prostaglandin A1 (PGA1) มีศักยภาพในการสะสมในเซลล์และผลการจับกุมวัฏจักรของเซลล์ G2/ M ของ doxorubicin ซึ่งเป็นตัวยับยั้ง topoisomerase ในเซลล์มะเร็งปอด A549 [54,55] เนื่องจากธรรมชาติของอิเล็กโทรฟิลิก cyPG อาจสร้าง Michael adducts ที่มี GSH ทั้งทางเอนไซม์ ผ่านการทำงานของ GST และไม่ใช่เอนไซม์ [56,57] ในทำนองเดียวกัน พบว่า adducts HNE ที่มี GST ถูกตรวจพบโดยการกระตุ้นภูมิคุ้มกันของ GST ตามด้วยการวิเคราะห์ Western blot โดยใช้แอนติบอดีต่อต้าน HNE [58] ยิ่งไปกว่านั้น GSTP1-1 ซึ่งเป็นเอนไซม์ที่สำคัญมากในการต้านทานเคมีของเนื้องอก ยังสามารถจับกันด้วยโควาเลนต์ด้วยลิพิดอิเล็กโทรฟิลิกหลายชนิด รวมถึง PGA1 และ PGA2 ทำให้เกิดการหยุดการทำงานของมัน [22,59,60] ดังนั้น lipoxidation ของ GSTP1-1 อาจช่วยในการเอาชนะความต้านทานของเซลล์มะเร็งบางชนิดต่อเคมีบำบัดหรือการฉายรังสี [55,61] ในทางกลับกัน พบ lipoxidation adducts ในไต [62] และเซลล์มะเร็งลำไส้ใหญ่ [63] เช่นเดียวกับในเนื้องอก glial astrocytic และ ependymal ซึ่งอุบัติการณ์ของเซลล์เนื้องอกที่เป็นบวกของ HNE เพิ่มขึ้นตามระดับความร้ายกาจที่เพิ่มขึ้น 42]. แม้ว่าปริมาณของผลิตภัณฑ์อิพอกซิเดชันในเซลล์มะเร็ง เช่น adducts โปรตีน HNE มักได้รับการประเมินว่าเป็นวิธีการประเมินระดับความเครียดจากปฏิกิริยาออกซิเดชัน แต่ในบางกรณีเท่านั้น การระบุและผลที่ตามมาของการสร้าง adduct โปรตีน HNE ต่อการเติบโตของเซลล์มะเร็งหรือ มีการรายงานพฤติกรรมแล้ว [14]

cistanche tubulosa-ปรับปรุงระบบภูมิคุ้มกัน
เราได้สรุปผลของ adducts HNE ในเซลล์มะเร็งที่แตกต่างกัน เช่น มะเร็งผิวหนังชั้นนอกของมนุษย์ เซลล์มะเร็งเม็ดเลือดขาว มะเร็งของต่อมในเยื่อบุผิวฐานถุงลมของมนุษย์ เซลล์มะเร็งเต้านม หรือเซลล์มะเร็งลำไส้ใหญ่ รายงานโดยการศึกษาที่แตกต่างกัน [64–71] ในรูปที่ 2 HNE ทั้งจากภายนอกและจากภายนอกทำให้เกิด lipoxidation adducts ที่มีโปรตีนหลากหลายชนิด เช่น epidermal Growth factor receptor (EGFR), -enolase, peptidylprolyl cis/trans-isomerase A1 (Pin1), kinase ของตับ B1 (LKB1), IĸB ไคเนส (IKK) หรือกลูตาเมต ซิสเตอีน ลิกาส (GCL) กระตุ้นให้เกิดผลที่แตกต่างกันซึ่งสำคัญมากในการหลีกเลี่ยงการลุกลามของมะเร็ง เช่น การยับยั้งการเจริญเติบโตของเซลล์ การลดความสามารถในการแพร่กระจายของเนื้อร้าย หรือฤทธิ์ต้านการเจริญของเนื้อร้าย แต่ยังรวมถึงในกรณีอื่นๆ ที่กระตุ้นให้เกิดผลที่สนับสนุนมะเร็งด้วย การลุกลามของเนื้องอก เช่น การปรับสภาวะแวดล้อมจุลภาคของเนื้องอกให้กลายเป็นโปรเนื้องอกหรือการตอบสนองของไซโตโปรเทคทีฟในเซลล์มะเร็งมากขึ้น (รูปที่ 2) นอกจากนี้ การศึกษาอื่นๆ แสดงให้เห็นว่าการก่อตัวของโปรตีน HNE ในเนื้อเยื่อมะเร็งไตและลำไส้ใหญ่มีความสัมพันธ์กับการเจริญเติบโตและการลุกลามของมะเร็งไตและมะเร็งลำไส้ใหญ่ [30] แม้ว่าการลุกลามของมะเร็งลำไส้ใหญ่จะส่งผลให้สูญเสียการเกิด lipoxidation adduct ใน เนื้อเยื่อเนื้อร้ายและการเพิ่มขึ้นของอัลดีไฮด์ที่เกิดปฏิกิริยาในพื้นที่โดยรอบ [31] ตามผลลัพธ์เหล่านี้ การศึกษาอื่นในมะเร็งต่อมลูกหมากแสดงให้เห็นว่า adducts โปรตีน ACR อาจเกี่ยวข้องกับการลุกลามและการกลับเป็นซ้ำของเนื้องอก [32] นอกจากนี้ เนื้อเยื่อเนื้องอกในมะเร็งปอดยังมีความสามารถในการต้านอนุมูลอิสระต่ำกว่าเนื้อเยื่อที่มีสุขภาพดี ซึ่งมาพร้อมกับระดับกรดไขมันที่ต่ำกว่าและอัลดีไฮด์ที่ทำปฏิกิริยาในระดับที่สูงกว่าที่ตรวจพบในเซลล์เนื้อตายและเซลล์สโตรมัลในเนื้องอกเหล่านี้ จึงนิยมสร้างผลิตภัณฑ์อิพอกซิเดชัน เช่น HNE- โปรตีนของเขา adducts พบในเนื้อเยื่อมะเร็งปอดเนื้อตาย [33]
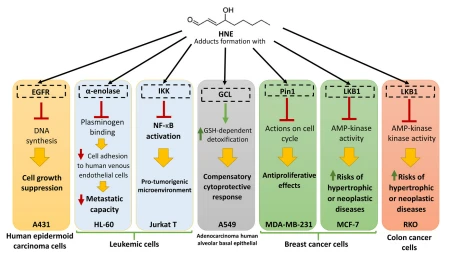
รูปที่ 2 สรุปผลที่เป็นไปได้ของการเสริมโปรตีน HNE ต่อโปรตีนและสายเซลล์มะเร็งต่างๆ
การเพิ่มโปรตีนยังเกี่ยวข้องกับการยับยั้งการทำงานของโปรตีโอโซม [72] ซึ่งมีหน้าที่ในการย่อยสลายโปรตีนภายในเซลล์ ไม่ว่าโปรตีนเหล่านั้นจะเสียหายหรือไม่จำเป็นอีกต่อไปสำหรับกระบวนการของเซลล์ [73] โปรตีโอโซมจึงจำเป็นต่อวิถีของเซลล์ต่างๆ รวมถึงวัฏจักรของเซลล์ การควบคุมการแสดงออกของยีน และการต้านทานต่อความเครียดจากปฏิกิริยาออกซิเดชัน ดังนั้น adducts ของโปรตีน lipoxidation อาจเปลี่ยนแปลงการก่อมะเร็งโดยผลกระทบต่อการยับยั้งการทำงานของ proteasome เนื่องจากโปรตีนที่เชื่อมโยงข้ามสามารถยับยั้ง proteasome และทำให้การหมุนเวียนของโปรตีนในเซลล์ลดลงอีก [74] ในความเป็นจริง มีการศึกษาบางชิ้นที่แสดงให้เห็นว่าสารยับยั้งโปรตีโอโซมทำให้เกิดการตายของเซลล์ในเซลล์มะเร็งเม็ดเลือดขาว ทำให้โปรตีโอโซมเป็นหนึ่งในเป้าหมายที่เป็นไปได้ด้วยสารที่มีศักยภาพในการรักษาโรคมะเร็ง [75–77] สิ่งสำคัญคือต้องสังเกตว่า ในหลายกรณี การลุกลามของเนื้อร้ายจะมาพร้อมกับการลดลงของความเครียดจากปฏิกิริยาออกซิเดชัน เนื่องจากการควบคุมความสามารถในการต้านอนุมูลอิสระ [78] และการเหนี่ยวนำของวิถี Nfr2/Keap1 ซึ่งควบคุม HNE ในเซลล์ในทางลบ ความเข้มข้น [79]. นอกจากนี้ยังสอดคล้องกับผลลัพธ์ที่แสดงให้เห็นว่าการปรับตัวต่อความเครียดจากปฏิกิริยาออกซิเดชั่นภายในเซลล์มะเร็งสามารถทำให้เกิดการดื้อยาได้ ดังนั้นยาต้านมะเร็งและรังสีบำบัดสามารถกระตุ้นให้เกิดความเครียดจากปฏิกิริยาออกซิเดชั่นและกระตุ้นให้เซลล์มะเร็งเกิดอะพอพโทซิส อย่างไรก็ตาม เซลล์มะเร็งบางชนิดจะหลบหนีจากกระบวนการนี้โดยการปรับตัวให้เข้ากับความเครียดจากปฏิกิริยาออกซิเดชันภายใน [34] ในทางกลับกัน แม้ว่าความเครียดจากปฏิกิริยาออกซิเดชันภายในจะลดลง แต่ระดับของผลิตภัณฑ์ lipoxidation ในเซลล์มะเร็งอาจเพิ่มขึ้น เนื่องจากการตอบสนองต่อการอักเสบในเนื้อเยื่อรอบรอยโรคมะเร็ง [14]
ปัจจัยการถอดรหัสของตระกูล peroxisome proliferator-activated receptors (PPARs) มีบทบาทสำคัญในชีววิทยาของเนื้องอกและในการทำงานของระบบภูมิคุ้มกัน [80] กลไกที่รายงานจนถึงขณะนี้ชี้ให้เห็นว่าไอโซไทป์ PPAR แต่ละตัวมีความเกี่ยวข้องกับวิถีทางที่เกี่ยวข้องกับการก่อมะเร็งเนื่องจากมีผลโดยตรงต่อเซลล์มะเร็งเนื่องจากพวกมันมีส่วนเกี่ยวข้องในการควบคุมการเพิ่มจำนวนเซลล์ การแยกเซลล์ และการตายของเซลล์ [81,82] แต่นอกเหนือจากการทำงานเหล่านี้แล้ว PPAR ยังอาจส่งผลต่อสภาพแวดล้อมของเนื้องอกด้วยการควบคุมกระบวนการอักเสบ [83–85] ตัวรับนิวเคลียร์ตระกูลนี้ก็เป็นเป้าหมายของกระบวนการลิพอกซิเดชันเช่นกัน ได้รับการพิสูจน์แล้วว่า 15-ดีออกซีΔ12–14 PGJ2 (15dPGJ2) จับโควาเลนต์กับเรซิดิวซิสเทอีนที่อยู่ในกระเปาะการจับลิแกนด์ PPAR [86–88] นอกจากนี้ ยังแสดงให้เห็นว่า 15d-PGJ2 กระตุ้นกิจกรรมการถอดรหัสของPPARδผ่านการก่อตัวของ adduct โควาเลนต์ระหว่าง endocyclic enone ที่ C9 และ Cys249 ในโดเมนที่มีผลผูกพันลิแกนด์ของตัวรับ [89] นอกจากนี้ HNE ได้รับการรายงานว่าเป็นลิแกนด์ภายนอกสำหรับ PPAR /δ ที่ทำให้เกิดการกระตุ้น [90] ผลลัพธ์ที่แตกต่างได้รับการบันทึกไว้ว่าการก่อตัวของ lipoxidation adduct สามารถมีฤทธิ์ต้านมะเร็งหรือก่อมะเร็งได้ ขึ้นอยู่กับชนิดของเซลล์ที่ได้รับผลกระทบและ adduct เฉพาะที่เกิดขึ้น [14] ความอุดมสมบูรณ์ของโปรตีน เช่นเดียวกับปฏิกิริยาที่สูงและความสามารถในการเข้าถึงของตำแหน่งนิวคลีโอฟิลิกบางแห่ง อาจเป็นตัวกำหนดว่าโปรตีนจะกลายเป็นเป้าหมายของการเกิดปฏิกิริยาออกซิเดชันหรือไม่ [91,92] นอกจากนี้ ขึ้นอยู่กับธรรมชาติ/โครงสร้างของผลิตภัณฑ์ออกซิเดชันของไขมัน ซึ่งอาจมีลักษณะทางโครงสร้างที่แตกต่างกันและรวมถึงปฏิกิริยาที่แตกต่างกัน อาจนำไปสู่การก่อตัวของ adducts ของไลปิด็อกซิเดชันที่แตกต่างกัน และด้วยเหตุนี้จึงส่งผลต่อผลการทำงานที่แตกต่างกันในโปรตีนเป้าหมาย [22,93,94]. ในความเป็นจริง ได้มีการแสดงให้เห็นว่า cyPG ที่ถูกเติมด้วยไบโอตินเลียนแบบผลกระทบหลายอย่างของ cyPG ในแบบจำลองเซลล์ ซึ่งรวมถึงการยับยั้งไนตริกออกไซด์ซินเทส (iNOS) และไซโคลออกซีเจเนสที่เหนี่ยวนำไม่ได้-2 (COX-2) และการเหนี่ยวนำของ การแสดงออกของ HO -1 และ Hsp70 แต่ไม่สามารถกระตุ้นการกระตุ้น PPAR ในหลอดทดลอง หรือในเซลล์ที่สมบูรณ์ได้ [95,96] ดังนั้น โดยการเติมมอยอิตีขนาดใหญ่ให้กับกลุ่มคาร์บอกซิลของ cyPG อาจเป็นไปได้ที่จะแยกการกระทำทางชีวภาพบางอย่างออกได้ [97] จำเป็นต้องมีการศึกษาเพิ่มเติมเพื่อเปิดเผยผลกระทบเหล่านี้ โดยขึ้นอยู่กับชนิดของมะเร็ง ระยะของมะเร็ง โปรตีนเป้าหมายที่เกี่ยวข้อง หรือสายพันธุ์ที่เกิดปฏิกิริยาที่เกี่ยวข้อง
3.2. ผลของอิพอกซิเดชันต่อเซลล์ภูมิคุ้มกันและความสัมพันธ์กับมะเร็ง
กระบวนการอักเสบเรื้อรังทำให้เกิดความเครียดจากปฏิกิริยาออกซิเดชั่น/ไนโตรเซทีฟ และเป็นผลให้เกิดผลิตภัณฑ์จากไลปิดเปอร์ออกซิเดชันและกระบวนการลิออกซิเดชัน นอกจากนี้ มีการอธิบายว่าสภาวะการอักเสบเรื้อรังต่างๆ จะทำให้เซลล์ที่ไวต่อการเปลี่ยนแปลงของมะเร็งและการลุกลามของมะเร็งล่วงหน้า [28] ดังนั้นจึงเป็นที่คาดกันว่าการติดเชื้อเรื้อรังและการอักเสบที่เกี่ยวข้องมีส่วนทำให้เกิดประมาณหนึ่งในสี่ของผู้ป่วยมะเร็งทั้งหมดทั่วโลก [ 98]. ROS, สายพันธุ์ไนโตรเจนที่เกิดปฏิกิริยา (RNS) และผลิตภัณฑ์ลิพิดเปอร์ออกซิเดชันสามารถปรับโมเลกุลการส่งสัญญาณ [99] และเปลี่ยนแปลงการทำงานของโปรตีนที่เกี่ยวข้องกับการอักเสบและการก่อมะเร็ง [100] เช่น ปัจจัยการถอดรหัสนิวเคลียร์ NFκB หรือเอนไซม์ตอบสนองต่อความเครียด ได้แก่ iNOS และ COX -2 [101,102]. นอกจากนี้ มีรายงานว่าการปรับเปลี่ยนโปรตีนแบบออกซิเดชั่นแบบไม่ใช้เอนไซม์ รวมถึงการลิโพออกซิเดชัน ทำให้โปรตีนสร้างภูมิคุ้มกันและนำไปสู่การสร้างแอนติบอดีต่อโปรตีนดัดแปลงแบบออกซิเดชัน [8,103] ในความเป็นจริง อัลดีไฮด์ออกฤทธิ์สองอย่างต่อการส่งสัญญาณการอักเสบ โดยส่วนใหญ่ขึ้นอยู่กับระดับความเข้มข้น ในด้านหนึ่ง ที่ความเข้มข้นต่ำ HNE จะกระตุ้นการส่งสัญญาณ PKC เพื่อกระตุ้นการผลิตและการหลั่งของ CCL2 (MCP-1) โดยมาโครฟาจ [104] ในทางกลับกัน อัลดีไฮด์ที่เกิดปฏิกิริยาที่มีความเข้มข้นสูง เช่น HNE หรือ ACR ยับยั้งการกระตุ้นของ NFκB ไม่ว่าจะโดยผลการยับยั้งโดยตรงต่อโปรตีโอโซม หรือผ่านการยับยั้งฟอสโฟรีเลชั่นของสารยับยั้งของคัปปา B (IκB) และต่อมา การสลายโปรตีน [105] หรือการดัดแปลงหน่วยย่อยของ IκB kinase (IKK) โดยอัลดีไฮด์ [106] ซึ่งพบว่าเป็นเป้าหมายของ cyPG (รูปที่ 3) [107] ยิ่งไปกว่านั้น 4-HHE กระตุ้น IKK ผ่านวิถีทางกระตุ้นไคเนส (NIK) ของ IKK/NFκB ผ่านการเพิ่มขึ้นในกิจกรรมของ p38 MAPK และ ERK1/2 ไคเนส ซึ่งส่งผลให้เกิดการกระตุ้น NFκB [108] ในทางตรงกันข้าม มีการอธิบายว่า cyPG สามารถปรับเปลี่ยนหน่วยย่อย NFκB p65 และ p50 ได้โดยตรง ซึ่งนำไปสู่การยับยั้ง NFκB โดยการปิดกั้นความสามารถในการผูก DNA ซึ่งศึกษาโดยอิมมูโนฮิสโตเคมีและการวิเคราะห์แบบ Western blot (รูปที่ 3) [109,110] ยิ่งไปกว่านั้น มีการเสนอบทบาทของ 15d-PGJ2 ในการควบคุมการแพร่กระจายและการกระตุ้นของเม็ดเลือดขาวลิมโฟไซต์ผ่านกลไกที่อาศัยการยับยั้ง NFκB ซึ่งศึกษาในหนูที่น่าพิศวงสำหรับเม็ดเลือด prostaglandin D2 synthase (hPGD2s) ซึ่งเผาผลาญไซโคลออกซีเจเนส (COX) -PGH2 ที่ได้มาจาก PGD2 และ 15d-PGJ2 [111] นอกจากนี้ แสดงให้เห็นว่า 15d-PGJ2 ควบคุมความสมดุลของไซโตไคน์ที่ต้านการอักเสบซึ่งควบคุมการไหลเข้าของเม็ดเลือดขาวและการไหลออกของมาโครฟาจผ่านการระบายน้ำเหลือง [112] นี่เป็นสิ่งสำคัญมากสำหรับการลุกลามของมะเร็งเนื่องจากการกระตุ้น NF-κBส่งเสริมการสะสมของไซโตไคน์ที่ทำให้เกิดการอักเสบที่บริเวณเนื้องอก ซึ่งมีส่วนทำให้เกิดสภาพแวดล้อมจุลภาคที่ทำให้เกิดเนื้องอก การกระตุ้นปัจจัยการถอดรหัสนี้สัมพันธ์กับการเพิ่มจำนวนเซลล์เนื้องอก การยับยั้งการตายของเซลล์ การสร้างเส้นเลือดใหม่ และการเปลี่ยนผ่านของเยื่อบุผิว-มีเซนไคม์ ซึ่งเอื้อต่อการแพร่กระจายของมะเร็งในระยะไกล [113]
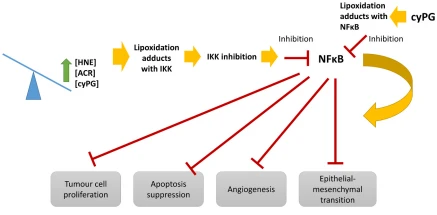
รูปที่ 3 ผลของการยับยั้ง NFκB ที่เกิดจาก lipoxidation adducts อัลดีไฮด์ที่มีความเข้มข้นสูง เช่น HNE หรืออะโครลีน หรือไซโคลเพนทีโนน พรอสตาแกลนดิน (cyPG) ที่มีความเข้มข้นสูง จะยับยั้งการทำงานของ IKK ผ่านการก่อตัวของผลิตภัณฑ์ลิโพซิเดชัน การยับยั้ง IKK ส่งผลให้เกิดการยับยั้งการทำงานของ NFκB ซึ่งเป็นอุปสรรคต่อผลกระทบที่ถูกกระตุ้นโดย NFkB เช่น การเพิ่มจำนวนเซลล์เนื้องอก การยับยั้งการตายของเซลล์ การสร้างเส้นเลือดใหม่ และการเปลี่ยนแปลงของเยื่อบุผิว-มีเซนไคม์ ซึ่งเอื้อต่อการแพร่กระจายของมะเร็งในระยะไกล ยิ่งไปกว่านั้น cyPG ยังสามารถแก้ไขหน่วยย่อย NFκB ได้โดยตรงซึ่งนำไปสู่การยับยั้ง NFκB และดังนั้นจึงเป็นการปราบปรามผลกระทบของ NFkB
นอกจากนี้ ได้รับการแสดงให้เห็นว่า PPAR-ลิแกนด์และ PPAR-ลิแกนด์ (15d-PGJ2) ยับยั้งการเจริญเติบโตของเซลล์และทำให้เกิดการเปลี่ยนแปลงโมโนไซติกในเซลล์มะเร็งเม็ดเลือดขาวกลุ่มโพรไมโลซิติกของมนุษย์ (เซลล์ HL-60) และ HNE ซึ่งเพียงลำพังเท่านั้นที่ชักนำให้เกิดลักษณะคล้ายแกรนูโลไซต์ การเปลี่ยนสภาพของเซลล์ HL- 60 ทำให้เกิดการเปลี่ยนแปลงแบบโมโนไซติกที่เกิดจาก 15dPGJ2 นอกจากนี้ การรักษาด้วย HNE ยังยับยั้งการเจริญเติบโตของเซลล์ U937 (human histiocytic lymphoma) ได้อย่างมีนัยสำคัญ และเพิ่มศักยภาพในการยับยั้งการเจริญเติบโตของเซลล์ในเซลล์ที่ได้รับ PPAR- ลิแกนด์ [68] นอกจากนี้ มีรายงานว่า HNE สามารถสร้าง adducts ด้วยซิสเตอีนที่ตกค้างในโดเมนนอกเซลล์ของเปปไทด์ TLR4 ซึ่งแสดงให้เห็นโดยการวิเคราะห์ LC – MS/MS ซึ่งยับยั้งการกระตุ้นของมัน [114] ดังนั้นการก่อตัวของ lipoxidation adducts ด้วย HNE สามารถควบคุมการกระตุ้นการทำงานของ TLR4 ได้แตกต่างกัน และต่อมากระตุ้นให้เกิดผลในการตอบสนองของระบบภูมิคุ้มกัน แสดงให้เห็นว่าทั้งซีรั่มอัลบูมิน (MSA) ของเมาส์ที่เติม MDA และ HNE–MSA สามารถส่งเสริมการเพิ่มจำนวนทีเซลล์ CD4+ ได้อย่างมีนัยสำคัญ ซึ่งนำไปสู่สมมติฐานที่ว่าการดูดซับไลโปซิเดชันสามารถทำหน้าที่เป็นตัวกระตุ้นทางภูมิคุ้มกันใน การกระตุ้นซีดี4+ ทีเซลล์ ยิ่งไปกว่านั้น มีการเสนอว่าอัลดีไฮด์ที่ได้มาจาก lipid peroxidation ส่งเสริมการสร้างความแตกต่างของ Th1 เป็นพิเศษ โดยวิเคราะห์โดย flow cytometry และ ELISA ในเซลล์เม็ดเลือดขาวในม้ามจากหนูที่ได้รับไตรคลอโรเอธีน [115] ในแง่นั้น เราอาจพิจารณาการนำปฏิกิริยาไลออกซิเดชันมาเป็นปัจจัยบวกเนื่องจากเซลล์ Th1 เกี่ยวข้องกับการส่งเสริมการตอบสนองต่อการต่อต้านเนื้องอก: เซลล์ Th1 ปรับปรุงการทำงานของพิษต่อเซลล์ของเซลล์ NK และ CD8+ เพิ่มการควบคุมการแสดงออกของ MHC คลาส I ใน เซลล์เนื้องอก และสนับสนุนการเพิ่มจำนวนเซลล์ CD8+ ผ่านการหลั่งของ IL-2 [116]
ในส่วนของการทำงานของโมโนไซต์ ได้รับการแนะนำว่า MDA-Lys สังเคราะห์ซึ่งใช้เป็นต้นแบบของผลิตภัณฑ์ขั้นสุดท้ายของการเกิดปฏิกิริยาออกซิเดชั่นขั้นสูง สามารถส่งเสริมการกระตุ้นการทำงานของโมโนไซต์และภาวะแทรกซ้อนของหลอดเลือดผ่านการเหนี่ยวนำของวิถีทางการอักเสบและเครือข่าย ในแนวทางการทำโปรไฟล์ยีนของผู้สมัคร MDA-Lys เพิ่มการแสดงออกของยีนที่ขึ้นอยู่กับ NFκB ที่สำคัญ เช่น MCP-1, iNOS, RAGE, IP-10, CCR-2, IL{{5} }, IL-8 และ COX-2 ที่เกี่ยวข้องกับการกระตุ้นโมโนไซต์ การทำโปรไฟล์อาเรย์แอนติบอดีเปิดเผยว่า MDA-Lys สามารถควบคุมเคมีบำบัด CCL11 (eotaxin), TNFSF14 และ CCL18 ได้ นอกจากนี้ ปัจจัยสำคัญที่ได้รับการสังเกตว่าเกิดจาก MDA-Lys เช่น MCP-1, eotaxin, IL-6, IL- 8, 1- และ {{17 }}อินทิกรินและ COX-2 สัมพันธ์กับการกระตุ้นโมโนไซต์ การยึดเกาะ และการย้ายถิ่น [117] นิวโทรฟิลเป็นสื่อกลางในองค์ประกอบสำคัญของการตอบสนองภูมิคุ้มกันของเซลล์ ซึ่งเกี่ยวข้องกับการยึดเกาะของเซลล์ การย้ายถิ่น การทำลายเซลล์ และการย่อยสลายและการหมุนเวียนของสารเมตาบอไลต์ที่เกิดจากเซลล์ฟาโกไซติก [118] โดยการวิเคราะห์แมสสเปกโตรเมทรีแสดงให้เห็น การมีอยู่ของ lipoxidation adducts ของ HNE กับโปรตีนที่เกี่ยวข้องในเส้นทางสำคัญของการระเบิดออกซิเดชันของนิวโทรฟิล, phagocytosis, ภาวะสมดุลของรีดอกซ์ และการเผาผลาญกลูโคส การศึกษาเดียวกันนี้ยังยืนยันการก่อตัวของโปรตีนนิวโทรฟิล-HNE adducts โดยใช้โปรตีนที่มีแนวโน้มว่าจะถูกดัดแปลงโดยแมสสเปกโตรเมตรี เมื่อนำมารวมกัน ข้อมูลเหล่านี้ชี้ให้เห็นว่า HNE กระตุ้นให้เกิดกลไก pleiotropic เพื่อยับยั้งการทำงานของนิวโทรฟิล [119] นอกจากนี้ยังมีรายงานว่า HNE ดูเหมือนจะเป็นปัจจัยควบคุมการเติบโตของเซลล์ที่สำคัญ โดยทำหน้าที่เป็นโมเลกุลส่งสัญญาณที่มีปฏิสัมพันธ์กับผลควบคุมการเจริญเติบโตของไซโตไคน์ต่างๆ [120–123] HNE ในฐานะผู้ส่งสารคนที่สองของ ROS กระตุ้นแอคติเวเตอร์โปรตีน 1 (AP{28}}) ที่ส่งเสริมการสังเคราะห์ TGF และการสร้างพังผืด ดังนั้น HNE จึงสามารถสนับสนุนการสร้าง fibrogenesis และยับยั้งการเติบโตของมะเร็งได้ในเวลาเดียวกัน การควบคุมระบบภูมิคุ้มกันมีความสำคัญมากในการระบุการลุกลามของมะเร็ง [10] ดังนั้นผลิตภัณฑ์ลิโพซิเดชันอาจส่งผลต่อการพัฒนาของมะเร็งโดยส่งผลต่อส่วนประกอบของภูมิคุ้มกันและปรับการตอบสนองของระบบภูมิคุ้มกัน

ประโยชน์ของ cistanche tubulosa-Antitumor
3.3. ภาพรวมของภูมิคุ้มกันวิทยาของเนื้องอกที่สภาพแวดล้อมจุลภาคของเนื้องอกและความสัมพันธ์กับอัลดีไฮด์ที่เกิดปฏิกิริยาและอิพอกซิเดชัน
มีการศึกษาเพียงเล็กน้อยเกี่ยวกับบทบาทของ lipoxidation adducts ที่เกี่ยวข้องกับภูมิคุ้มกันวิทยาของเนื้องอก แต่เมื่อพิจารณาถึงสิ่งที่ทราบเกี่ยวกับผลิตภัณฑ์ lipid peroxidation อิทธิพลของมันในด้านภูมิคุ้มกันวิทยา ตามที่อธิบายไว้ข้างต้น และอิทธิพลของสภาพแวดล้อมจุลภาคของภูมิคุ้มกันในการลุกลามของเนื้องอก [10 124–126] โดยรวมแล้วแสดงให้เห็นว่าการเกิด lipoxidation เป็นกระบวนการที่สำคัญมากในสาขานี้ นอกจากนี้ การศึกษาล่าสุดได้เผยให้เห็นว่าเซลล์ภูมิคุ้มกันมีลักษณะการเผาผลาญที่แตกต่างกันซึ่งมีอิทธิพลต่อการทำงานของระบบภูมิคุ้มกันของเซลล์ [127] ตัวอย่างเช่น โพลาไรเซชันของแมคโครฟาจมีความสัมพันธ์กับลักษณะการเผาผลาญที่แตกต่างกันของการเผาผลาญไขมัน และอื่นๆ [128] ในแง่นี้ พบว่ายีนที่เกี่ยวข้องกับไกลโคไลซิสและเมแทบอลิซึมของฟอสโฟลิพิด ซึ่งมีการแสดงออกที่แตกต่างกันระหว่างมาโครฟาจ M1 และ M2 เป็นลักษณะเด่นที่สำคัญของมาโครฟาจที่มีการอักเสบ (M1) [128] เนื้องอกที่แสดงออกทางคลินิกสามารถเกิดขึ้นได้เมื่อเซลล์เนื้องอกสามารถหลบหนีจากการตรวจภูมิคุ้มกันได้ [129,130] นอกจากนี้ ประสิทธิภาพของยาเคมีบำบัดและรังสีรักษาส่วนใหญ่ที่ใช้กันทั่วไปในคลินิกนั้นขึ้นอยู่กับการกระตุ้นหรือการกระตุ้นการตอบสนองทางภูมิคุ้มกันที่มุ่งเป้าไปที่เนื้องอกอีกครั้ง [131–133] ชุดย่อยของเม็ดเลือดขาวที่แทรกซึมเข้าไปในเนื้องอกสามารถเล่นหน้าที่เป็นปฏิปักษ์ได้อย่างยอดเยี่ยม คุณสมบัติที่สำคัญอย่างหนึ่งของการอักเสบคือฟีโนไทป์การทำงานของมาโครฟาจซึ่งขึ้นอยู่กับสิ่งเร้าที่กระตุ้นในสภาพแวดล้อมจุลภาค Macrophages เป็นเซลล์ต้นแบบ O2 .-, H2O2 และเซลล์ที่ผลิต NO และสารออกซิแดนท์เป็นหนึ่งในอาวุธที่ทรงพลังที่สุดของ Macrophages ที่กระตุ้นในการต่อสู้กับเซลล์มะเร็ง [134,135] นอกจากนี้ เป็นที่ทราบกันดีว่าการเพิ่มขึ้นของสารออกซิแดนท์นั้นสัมพันธ์กับการก่อตัวของผลิตภัณฑ์ lipid peroxidation ที่สูงขึ้น ดังนั้นจึงอาจนำไปสู่การปรากฏตัวของ adducts lipoxidation ที่สูงขึ้น [136] ยิ่งไปกว่านั้น มีรายงานว่าเมื่อถูกกระตุ้นมาโครฟาจจะสามารถสร้าง HNE ผ่านทาง COX-2 [124] การยับยั้ง COX-2 ในมาโครฟาจของหนูมีความสัมพันธ์กับการลดลงของการผลิต HNE หลังการติดเชื้อ E. faecalis (P < 0.001) ในการศึกษาเดียวกัน การใช้หนูน็อคเอาต์ IL-10- ที่ถูกตั้งอาณานิคมโดย E. faecalis พบว่าระดับการแสดงออกของ COX-2 เพิ่มขึ้นในมาโครฟาจของลำไส้ใหญ่โดยสัมพันธ์กับ adducts ไลโปออกซิเดชันของโปรตีน HNE [124]
เซลล์เพชฌฆาตตามธรรมชาติ (NK) และทีลิมโฟไซต์ที่เป็นพิษต่อเซลล์ CD8+ (CTL) จัดให้มีกลยุทธ์ต่อต้านเนื้องอกที่เสริมกันอย่างมาก สารออกซิแดนท์มีบทบาทสองประการในการควบคุมการทำงานของ CTL และ NK เซลล์ ได้รับการสังเกตว่าตัวยับยั้งแคสเปสที่มีศักยภาพมากที่สุด ซึ่งเป็นตัวยับยั้ง X-linked ของโปรตีนอะพอพโทซิส (XIAP) ให้ความต้านทานต่อความเป็นพิษต่อเซลล์ของเซลล์ที่ขึ้นกับแอนติบอดี (ADCC) ดังนั้น XIAP จึงเป็นโมดูเลเตอร์ที่สำคัญของการตอบสนองของ ADCC [137] ในแง่นี้ มีการเสนอกลยุทธ์เพื่อลดความเครียดจากปฏิกิริยาออกซิเดชั่นเพื่อเพิ่มความสามารถของ CTL ในการฆ่าเซลล์เนื้องอก อย่างไรก็ตาม CTL ที่ถูกกระตุ้นอาจปรับบางส่วนให้เข้ากับความเครียดจากปฏิกิริยาออกซิเดชันในสภาพแวดล้อมจุลภาคของเนื้องอกโดยการควบคุมโปรตีนต้านอนุมูลอิสระตามที่แสดงให้เห็นด้วยเซลล์ NK ที่ถูกกระตุ้นของ IL-2- [138] และตามที่อธิบายไว้ข้างต้น ในทางกลับกัน เซลล์ Th17 มีความเกี่ยวข้องกับการพยากรณ์โรคที่ไม่ดีในมะเร็งบางชนิด และการทำงานของเซลล์มะเร็งมีความเชื่อมโยงอย่างแน่นหนากับการสร้างเส้นเลือดใหม่และการส่งเสริมการสร้างหลอดเลือดของเนื้องอก อย่างไรก็ตาม บทบาทของเซลล์ Th17 ยังเป็นที่ถกเถียงกันอยู่มาก เนื่องจากมีความสัมพันธ์กับอัตราการรอดชีวิตโดยรวมที่ดีขึ้นในมะเร็งรังไข่ และในมะเร็งเซลล์สความัสของหลอดอาหาร [10] ในแง่นี้ ผลิตภัณฑ์ลิพิดเปอร์ออกซิเดชันอาจมีอิทธิพลเช่นกันเนื่องจากมีรายงานว่าอัลดีไฮด์ เช่น MDA ควบคุมการแสดงออกของ IL-17E ในลิมโฟไซต์อย่างถอดรหัส และเปลี่ยนแปลงความแตกต่างของลิมโฟไซต์ไปสู่เซตย่อย Th17 ที่ทำให้เกิดโรค [68] สุดท้ายนี้ การสะสมเซลล์ T (Treg) ตามกฎข้อบังคับของ Foxp ในสภาพแวดล้อมจุลภาคของเนื้องอกถือเป็นปัจจัยการพยากรณ์โรคที่ไม่ดี [10] ประชากรกลุ่มนี้ยังได้รับอิทธิพลจากผลกระทบของการเกิดปฏิกิริยาออกซิเดชั่น ดังที่พบในรอยโรคหลอดเลือดแข็งตัวของหนูทดลอง ซึ่งมีการยับยั้งการสร้างเซลล์ Treg ที่เกิดจาก adduct MDA-laminin [126]
โดยสรุป การปรับส่วนประกอบภูมิคุ้มกันในสภาพแวดล้อมจุลภาคของเนื้องอกมีผลกระทบที่เกี่ยวข้องอย่างมากต่อการพัฒนาของเนื้องอก เช่นเดียวกับประเภทของการตอบสนองของผู้ป่วยต่อการรักษาเฉพาะ และผลิตภัณฑ์อีพอกซิเดชันอาจมีบทบาทสำคัญในการปรับนี้ ในเรื่องนี้ การรวมกันของการรักษาแบบดั้งเดิมกับโมดูเลเตอร์ ROS อาจเพิ่มความเป็นพิษต่อเซลล์เนื้องอกโดยเฉพาะ
3.4. เป้าหมายระดับโมเลกุลและคุณสมบัติการส่งสัญญาณของอิพอกซิเดชัน
สาร lipoxidation adducts อาจเปลี่ยนแปลงโครงสร้างและหน้าที่ของการไหลเวียนของโปรตีนและเนื้อเยื่อไปเรื่อย ๆ โดยส่งผลต่อสถานะการอักเสบ การเพิ่มจำนวนเซลล์ และความมีชีวิต ซึ่งส่งผลต่อการพัฒนาของมะเร็ง [5] การศึกษาโปรตีนที่ดัดแปลงโดยรีแอกทีฟอัลดีไฮด์บ่งชี้เป้าหมายระดับโมเลกุลหลายร้อยเป้าหมาย [8,139,140] ดังนั้น เราจะเน้นในส่วนนี้เกี่ยวกับโปรตีนเป้าหมายที่เกี่ยวข้องกับการเพิ่มจำนวนเซลล์ การตายของเซลล์ และไคเนสของโปรตีนบางชนิด
3.4.1. การดัดแปลงตัวรับไทโรซีนไคเนส
ก่อนหน้านี้มีรายงานว่า HNE ที่มีอยู่ใน oxLDL หรือการเติมจากภายนอกทำให้เกิดทั้งการดัดแปลงและความผิดปกติของตัวรับไทโรซีนไคเนส (TKR) เช่น ตัวรับปัจจัยการเจริญเติบโตของผิวหนัง (EGFR) และตัวรับปัจจัยการเจริญเติบโตที่ได้มาจากเกล็ดเลือด (PDGFR) ที่เกี่ยวข้องกับ adducts ของไลโปซิเดชัน ซึ่งกระตุ้น TKR autophosphorylation และการกระตุ้นเส้นทางการส่งสัญญาณขั้นปลาย, ไคเนสที่ควบคุมสัญญาณนอกเซลล์ (ERK) 1/2 phosphorylation และความก้าวหน้าของวัฏจักรของเซลล์ [141,142] อย่างไรก็ตาม HNE ที่มีความเข้มข้นสูงจะยับยั้งการเพิ่มจำนวนเซลล์ที่เป็นสื่อกลางโดย EGFR และ PDGFR ซึ่งเกี่ยวข้องกับการก่อตัวของ HNE และ ACR adducts ด้วย PDGFR [64,143] ดังนั้นจึงแนะนำว่า HNE และไขมันอิเล็กโทรฟิลิกอื่น ๆ อาจรบกวนการตอบสนองที่เป็นสื่อกลางของ PDGFR เช่นการเพิ่มจำนวนและการย้ายเซลล์ [144]
3.4.2. การส่งสัญญาณอะพอพโทซิสและไคเนสโปรตีนอื่นๆ
ในเซลล์ HL แบบไมอีลอยด์ HL-60 ของมนุษย์ แอดดักต์ HNE แสดงให้เห็นว่าสัมพันธ์กับการเหนี่ยวนำของอะพอพโทซิส การกระตุ้นของไคเนสที่ปลาย N-c-Jun (JNK) และแคสเพส 3 และพวกมันสัมพันธ์กับการกระตุ้น ของแคสเปส 3, 8 และ 9 ในไฟโบรบลาสต์ของตัวอ่อนที่แยกได้จากหนู [145,146] ยิ่งไปกว่านั้น HNE ยังกระตุ้นการแสดงออกของยีนต้านอนุมูลอิสระ เช่น ฮีม-ออกซีจีเนสและไทโอรีดอกซิน-1 ผ่านการกระตุ้นวิถีโปรตีนไคเนสที่กระตุ้นการทำงานของไมโทเจน (MAPK) และปัจจัยการถอดรหัส Nrf2 [147,148] Thioredoxin และ thioredoxin reductase มีส่วนเกี่ยวข้องในการบำรุงรักษาโปรตีนต่างๆ ในสภาวะที่ลดลงซึ่งจำเป็นสำหรับการทำงานตามปกติ และพวกมันยังเป็นเป้าหมายของ epoxidation โดย 15d-PGJ2 ซึ่งส่งผลให้เกิดการปิดใช้งาน [149] ไทโอรีดอกซิน รีดักเตสที่ถูกดัดแปลงอาจเป็นสื่อกลางในการหยุดชะงักของโครงสร้างของ p53 และการตายของเซลล์ที่เกิดจาก PG โดยการกระตุ้นแคสเพส 3 [150] ยิ่งไปกว่านั้น ในเซลล์ Jurkat มีรายงานว่าทั้งโปรตีน Fas และ Daxx เป็นเป้าหมายของการเกิด lipoxidation โดย HNE Fas adducts ส่งเสริมการส่งสัญญาณ proapoptotic ผ่าน ASK1, JNK และ caspase 3 Daxx lipoxidation ส่งเสริมการส่งออกจากนิวเคลียสไปยัง cytosol โดยที่มันจะโต้ตอบกับ Fas เพื่อจำกัดขอบเขตของ apoptosis ด้วยตนเองโดยการยับยั้งการส่งสัญญาณ proapoptotic ปลายน้ำ [151] นอกจากนี้โปรตีน proapoptotic BAX ยังเป็นเป้าหมายโดยตรงของการเกิด lipoxidation โดย PGA2 ซึ่งกระตุ้นให้เกิดการเปลี่ยนแปลงโครงสร้างที่นำไปสู่การกระตุ้น BAX และการเหนี่ยวนำของ apoptosis [152] การศึกษาต่างๆ รายงานการเปลี่ยนแปลงโดยตรงและการหยุดการทำงานของฟอสฟาเตส-3-ฟอสฟาเตสและ PTEN ที่ยับยั้งเนื้องอกโดยอัลดีไฮด์และคีโตนที่ทำปฏิกิริยาหลายชนิด เช่น ACR, HNE และ , -อีโนน เช่น PGA2, Δ12-PGJ2 และ 15d -PGJ2 พร้อมการกระตุ้น PKB/Akt kinase ตามมา ฟอสโฟรีเลชั่นของสารตั้งต้น Akt เพิ่มการเพิ่มจำนวนเซลล์ และเพิ่มนิวเคลียร์ - catenisignalingng [153–155] การยับยั้งเนื้องอกที่รวมกันและยั่งยืนนี้อาจมีส่วนสำคัญต่อการเกิดเนื้องอกที่เกี่ยวข้องกับการอักเสบ [153] นอกจากนี้ยังพบว่าไอโซโพรสเตนของ cyPG และไซโคลเพนทีโนนมุ่งเป้าไปที่โปรตีน H-Ras ที่ก่อมะเร็ง ในขณะที่ 15d-PGJ2 และ Δ12-PGJ2 กำหนดเป้าหมายบริเวณปลาย thC เป็นพิเศษ PG, A1 และ 8-iso-PGA1 จับกับซิสเทอีน 118 เป็นหลัก ซึ่งอยู่ในรูปแบบการจับ GTP ซึ่งมีความสัมพันธ์กัน ด้วยการเปิดใช้งาน H-Ras [156] ในเซลล์สเตเลทตับของมนุษย์ ไอโซฟอร์ม p46 และ p54 ของ JNK ถูกระบุเป็นเป้าหมาย HNE และถูกกระตุ้นโดยอัลดีไฮด์นี้ สิ่งนี้นำไปสู่การโยกย้ายนิวเคลียร์ของ JNK เช่นเดียวกับการเหนี่ยวนำ c-jun และ AP-1 [157] นอกจากนี้ แสดงให้เห็นว่า 15d-PGJ2 สามารถดัดแปลง c-Jun แบบโควาเลนต์ที่ซิสเทอีน 269 ซึ่งอยู่ในโดเมนการจับ cJun DNA และยับยั้งโดยตรงต่อกิจกรรมการจับ DNA ของ AP-1 ทั้งภายนอกร่างกายและใน เซลล์ที่สมบูรณ์ [59,158].
4. ข้อสังเกตสรุปและความเห็นในอนาคตวิชาเลือก
การศึกษาที่อธิบายไว้ก่อนหน้านี้จำนวนมากให้หลักฐานระดับโมเลกุลที่เกิดขึ้นใหม่เกี่ยวกับความสำคัญของการเกิดปฏิกิริยาออกซิเดชันในการก่อมะเร็ง โดยที่การอักเสบแสดงถึงหนึ่งในการเชื่อมโยงพื้นฐาน มีความซับซ้อนอย่างมากในบทบาทที่เป็นไปได้ของผลิตภัณฑ์ lipoxidation ในพยาธิวิทยาของมะเร็ง มีรายงานผลลัพธ์ที่ขัดแย้งกันซึ่งผลิตภัณฑ์อีพอกซิเดชันดูเหมือนจะเป็นเซลล์เนื้องอกที่เป็นพิษ [159] แต่เช่นกัน แต่การศึกษาอื่น ๆ รายงานความเกี่ยวข้องกับการเพิ่มขึ้นของระดับความร้ายกาจในเนื้องอก [31] ดังนั้นผลิตภัณฑ์อิพอกซิเดชันจึงสามารถมีบทบาทสำคัญในไม่เพียงแต่ในการก่อมะเร็งเท่านั้น แต่ยังรวมถึงการป้องกันโฮสต์จากมะเร็งด้วย ผ่านผลกระทบต่อเซลล์เนื้องอก และผ่านการมีปฏิสัมพันธ์กับส่วนประกอบของระบบภูมิคุ้มกัน
การศึกษาในอนาคตมีความจำเป็นเพื่อแยกแยะบทบาททางสรีรวิทยาและพยาธิวิทยาของกระบวนการลิพอกซิเดชันที่เกิดขึ้นระหว่างการก่อมะเร็ง โดยให้ความสนใจเป็นพิเศษต่อสารต้านมะเร็งที่มีสารโปรออกซิแดนท์และกลไกการดื้อยา ซึ่งสามารถปรับเปลี่ยนเพื่อให้ได้รับการตอบสนองที่ดีขึ้นต่อการรักษาโรคมะเร็ง [34 ]
อ้างอิง
[1] H. Esterbauer, RJ Schaur, H. Zollner, เคมีและชีวเคมีของ 4-hydroxynonenal, malonaldehyde และอัลดีไฮด์ที่เกี่ยวข้อง, อนุมูลอิสระ ไบโอล ยา 11 (1991) 81–128.
(2) K. Zarkovic, A. Jakovcevic, N. Zarkovic, การมีส่วนร่วมของอิมมูโนฮิสโตเคมีของ HNE-im ต่อแนวคิดทางพยาธิวิทยาสมัยใหม่ของโรคที่สำคัญในมนุษย์, Free Radic ไบโอล ยา 111 (2017) 110–126, https://doi.org/10.1016/j. ฟรีราดไบโอเมด.2016.12.009.
(3) G. Aldini, MR Domingues, CM Spickett, P. Domingues, A. Altomare, FJ Sánchez-Gómez, CL Oeste, D. Pérez-Sala, โปรตีน lipoxidation: กลยุทธ์การตรวจจับและความท้าทาย, Redox Biol 5 (2015) 253–266, https://doi.org/10 1016/j.รีดอกซ์.2015.05.003.
[4] ซี. เฮเก็ดซ, เค. โควาคส์, ซ. โพลการ์, ซ. เร็กดอน, É. Szabó, A. Robaszkiewicz, HJ Forman, A. Martner, L. Virág, การควบคุมรีดอกซ์ของการทำลายเซลล์มะเร็ง, Redox Biol 16 (2018) 59–74, https://doi.org/10.1016/J.REDOX.2018.01.015
[5] ดร. ปีเตอร์เซน, JA Doorn, ปฏิกิริยาของ 4-ไฮดรอกซีโนนีนัลกับโปรตีนและเป้าหมายของเซลล์, อนุมูลอิสระ ไบโอล ยา 37 (2004) 937–945, https://doi.org/10.1016/ J.FREERADBIOMED.2004.06.012
[6] JD Chavez, J. Wu, W. Bisson, CS Maier, การวิเคราะห์โปรตีโอมิกเฉพาะไซต์ epoxidation adducts ในไมโตคอนเดรียหัวใจเผยให้เห็นความหลากหลายทางเคมีของ 2-alkenyl adduction, J. Proteome 74 (2011) 2417–2429, https://doi.org/10.1016/j.jprot 2011.03.031.
[7] M. Karin, T. Lawrence, V. Nizet, ภูมิคุ้มกันโดยธรรมชาติหายไป: การเชื่อมโยงการติดเชื้อจุลินทรีย์กับการอักเสบเรื้อรังและมะเร็ง, เซลล์ 124 (2549) 823–835, https:// doi.org/10.1016/J เซลล์.2006.02.016.
[8] BT Kurien, K. Hensley, M. Bachmann, RH Scofield, autoantigens ดัดแปลงออกซิเดชันในโรคภูมิต้านตนเอง, Radic ฟรี ไบโอล ยา 41 (2549) 549–556, https://doi.org/10.1016/j.freeradbiomed.2006.05.020
[9] JP Castro, T. Jung, T. Grune, W. Siems, 4-โปรตีนดัดแปลงไฮดรอกซีโนเนนัล (HNE) ในโรคทางเมตาบอลิซึม, อนุมูลอิสระ ไบโอล ยา 111 (2017) 309–315, https://doi.org/10.1016/j.freeradbiomed.2016.10.497
[10] T. Lança, B. Silva-Santos, ลักษณะการแยกตัวของเม็ดเลือดขาวที่แทรกซึมเข้าไปในเนื้องอก: ผลกระทบต่อการเฝ้าระวังมะเร็งและการบำบัดด้วยภูมิคุ้มกัน, Oncoimmunology 1 (2012) 717–725, https://doi.org/10.4161/onci 20068.
(11) A. Reis, Oxidative Phospholipidomics ในสุขภาพและโรค: ความสำเร็จ, ความท้าทายและความหวัง, Radic อิสระ ไบโอล ยา 111 (2017) 25–37, https://doi.org/10 1016/j.freeradbiomed.2017.01.014.
[12] G. Barrera, ความเครียดจากปฏิกิริยาออกซิเดชันและผลิตภัณฑ์การเกิดออกซิเดชันของไขมันในการลุกลามและการรักษามะเร็ง, ISRN Oncol 2012 (2012) 137289, https://doi.org/10.5402/2012/ 137289.
[13] S. Pizzimenti, C. Toaldo, P. Pettazzoni, MU Dianzani, G. Barrera, ผลกระทบ "สองหน้า" ของสายพันธุ์ออกซิเจนที่เกิดปฏิกิริยาและผลิตภัณฑ์ lipid peroxidation 4-ไฮดรอกซีโนเนนัลในจุดเด่นของมะเร็ง มะเร็ง 2 (2010) 338–363, https://doi.org/ 10.3390/cancers2020338
[14] G. Barrera, S. Pizzimenti, ES Ciamporcero, M. Daga, C. Ullio, A. Arcaro, GP Cetrangolo, C. Ferretti, C. Dianzani, A. Lepore, F. Gentile, บทบาทของ {{1 }}สารไฮดรอกซีโนเนนัล-โปรตีนในโรคของมนุษย์ สารต้านอนุมูลอิสระ สัญญาณรีดอกซ์ 22 (2015) 1681–1702, https://doi.org/10.1089/ars.2014.6166
(15) JP Thomas, M. Maiorino, F. Ursini, AW Girotti, การป้องกันของฟอสโฟไลปิดไฮโดรเปอร์ออกไซด์กลูตาไธโอนเปอร์ออกซิเดสต่อการเกิด lipid peroxidation ที่ทำลายเยื่อหุ้มเซลล์ การลดฟอสโฟไลปิดและโคเลสเตอรอลไฮโดรเปอร์ออกไซด์ในแหล่งกำเนิด, J. Biol เคมี. 265 (1990) 454–461.
[16] SS Singhal, SP Singh, P. Singhal, D. Horne, J. Singhal, S. Awasthi, บทบาทของสารต้านอนุมูลอิสระของกลูตาไธโอน S-transferases: 4-ไฮดรอกซีโนนีนัล ซึ่งเป็นโมเลกุลสำคัญในการส่งสัญญาณที่อาศัยความเครียด, Toxicol . ใบสมัคร เภสัช 289 (2015) 361–370, https://doi. org/10.1016/j.taap.2015.10.006.
(17) M. Spite, SP Baba, Y. Ahmed, OA Barski, K. Nijhawan, JM Petrash, A. Bhatnagar, S. Srivastava, ความจำเพาะของสารตั้งต้นและประสิทธิภาพการเร่งปฏิกิริยาของ aldoketo reductases ด้วย phospholipid aldehydes, Biochem เจ. 405 (2007) 95–105, https://doi.org/10.1042/BJ20061743
[18] D. Méndez, ML Hernáez, A. Diez, A. Puyet, JM Bautista, แนวทางโปรตีโอมิกแบบรวมสำหรับการจำแนกกรดอะมิโนที่จำเพาะซึ่งดัดแปลงโดย 4- ไฮดรอกซี-2-เล็กน้อยภายใต้สภาวะทางสรีรวิทยา เจ. โปรตีโอมเรส. 9 (2010) 5770–5781, https://doi.org/10.1021/pr100555v
(19) AG Madian, FE Regnier, การจำแนกโปรตีโอมิกของโปรตีนคาร์บอนิลเลตและตำแหน่งออกซิเดชัน, J. Proteome Res 9 (2010) 3766–3780, https://doi.org/10 1021/pr1002609.
[20] อ.-ล. Levonen, A. Landar, A. Ramachandran, EK Ceaser, DA Dickinson, G. Zanoni, JD Morrow, VM Darley-Usmar, กลไกเซลลูล่าร์ของการส่งสัญญาณเซลล์รีดอกซ์: บทบาทของการดัดแปลงซิสเตอีนในการควบคุมการป้องกันสารต้านอนุมูลอิสระในการตอบสนองต่อผลิตภัณฑ์ออกซิเดชันของไขมันด้วยไฟฟ้า ,ไบโอเคม. เจ. 378 (2004) 373–382, https://doi.org/10.1042/BJ20031049 [21] J. Prakash, R. Bansal, E. Post, A. de Jager-Krikken, MN Lub-de Hooge, K. Poelstra, การจับกับอัลบูมินและหลอดเลือดของเนื้องอกเป็นตัวกำหนดฤทธิ์ต้านมะเร็งของ 15- deoxy- Δ12,14-พรอสตาแกลนดิน-J2in vivo, Neoplasia 11 (2009) 1348–1358, https:// doi.org/10.1593/neo.91188
[22] FJ Sánchez-Gómez, B. Díez-Dacal, MA Pajares, O. Llorca, D. Pérez-Sala, Cyclopentenone prostaglandins ที่มีโครงสร้าง dienone ส่งเสริมการเชื่อมโยงข้ามของเอนไซม์กลูตาไธโอนที่กระตุ้นให้เกิดปฏิกิริยาทางเคมี P1-1 , โมล. เภสัช 78 (2010) 723–733, https://doi.org/10.1124/mol.110.065391
(23) SE Lee, YS Park, บทบาทของอัลดีไฮด์ที่ได้มาจาก lipid peroxidation, -aldehydes ไม่อิ่มตัวในความผิดปกติของหลอดเลือด, ออกซิด ยา เซลล์ ลองเกฟ. 2013 (2013) 629028, https:// doi.org/10.1155/2013/629028.
(24) RE McDowell, JG McGeown, AW Stitt, TM Curtis, ศักยภาพในการรักษาของการกำหนดเป้าหมายอัลดีไฮด์ของไขมันและผลิตภัณฑ์ขั้นสุดท้ายของ lipoxidation ในการรักษาโรคตา, Future Med เคมี. 5 (2013) 189–211, https://doi.org/10.4155/fmc.12 202.
(25) G. Aldini, M. Orioli, M. Carini, การดัดแปลงโปรตีนโดยอะโครลีน: ความเกี่ยวข้องกับสภาวะทางพยาธิวิทยาและการยับยั้งโดยสารแยกตัวของอัลดีไฮด์, โมล นูทริ อาหาร Res. 55 (2011) 1301–1319, https://doi.org/10.1002/mnfr.201100182
(26) R. Pamplona, ผลิตภัณฑ์ขั้นสุดท้ายของการเกิด lipoxidation ขั้นสูง, เคมี ไบโอล มีปฏิสัมพันธ์. 192 (2011) 14–20, https://doi.org/10.1016/j.cbi.2011.01.007
[27] F. Guéraud, 4-สารไฮดรอกซีโนเนนัล และสาร adducts ในสภาวะก่อนเกิดมะเร็งและมะเร็ง อนุมูลอิสระ ไบโอล ยา 111 (2017) 196–208, https://doi.org/ 10.1016/J.FREERADBIOMED.2016.12.025.
(28) เอ. เนเกร-ซัลเวย์, เอ็น. ออจ, วี. อายาล่า, เอช. บาซากา, เจ. โบอาดา, อาร์. เบรนเก้, เอส. แชปเปิ้ล, จี. โคเฮน, เจ. เฟเฮอร์, ที. กรูน, จี. เลงเยล, จีอี มานน์, ร. ปัมโปลนา, จี. โปลิ, เอ็ม. ปอร์เตโร-โอติน, วาย. ริอาฮี, ร. ซัลเวย์, เอส. แซสสัน, เจ. เซอร์ราโน, โอ. ชามนี่, ดับเบิลยู. ซีมส์, อาร์ซีเอ็ม เซียว, ไอ. วิสวีเดล, เค. ซาร์โควิช , N. Zarkovic ลักษณะทางพยาธิวิทยาของการเกิดออกซิเดชันของไขมัน อนุมูลอิสระ ความละเอียด 44 (2010) 1125–1171, https://doi.org/10.3109/ 10715762.2010.498478
(29) E. Niki, เปอร์ออกซิเดชันของไขมัน: ระดับทางสรีรวิทยาและผลกระทบทางชีวภาพแบบคู่, อนุมูลอิสระ ไบโอล ยา 47 (2009) 469–484, https://doi.org/10.1016/J. ฟรีRADBIOMED.2009.05.032.
[30] M. Shoeb, NH Ansari, SK Srivastava, KV Ramana, 4-Hydroxynonenal ในการเกิดโรคและการลุกลามของโรคในมนุษย์, Curr ยา เคมี. 21 (2014) 230–237.
(31) K. Zarkovic, K. Uchida, D. Kolenc, L. Hlupic, N. Zarkovic, การกระจายเนื้อเยื่อของผลิตภัณฑ์ lipid peroxidation acrolein ในการก่อมะเร็งลำไส้ใหญ่ของมนุษย์, Free Radic ความละเอียด 40 (2549) 543–552, https://doi.org/10.1080/10715760500370048
(32) Z. Custovic, K. Zarkovic, M. Cindric, A. Cipak, I. Jurkovic, Z. Sonicki, K. Uchida, N. Zarkovic, ผลิตภัณฑ์ lipid peroxidation acrolein เป็น biomarker ที่คาดการณ์ได้ของมะเร็งต่อมลูกหมากกำเริบหลังการผ่าตัดที่รุนแรง ,ฟรีเรดิค. ความละเอียด 44 (2010) 497–504, https://doi.org/10.3109/10715761003636831
(33) A. Gęgotek, J. Nikliński, N. Žarković, K. Žarković, G. Waeg, W. Łuczaj, R. Charkiewicz, E. Skrzydlewska, ผู้ไกล่เกลี่ยไขมันที่เกี่ยวข้องกับความเครียดจากปฏิกิริยาออกซิเดชันและการป้องกันสารต้านอนุมูลอิสระของเซลล์มะเร็งปอดของมนุษย์ ,รีดอกซ์ไบโอล. 9 (2016) 210–219, https://doi.org/10.1016/j.redox.2016.08.010
[34] เอ็ม. ซีซาลา, ต. คาร์ดอน, บี. เลเกซา, บี. ลิซาค, เจ. แมนเดิล, É. Margittai, F. Puskás, P. Száraz, P. Szelényi, G. Bánhegyi, เกี่ยวกับบทบาทของ 4-ไฮดรอกซีโนเนนัลต่อสุขภาพและโรค, Biochim ชีวฟิสิกส์ แอคต้า - โมล โรคพื้นฐาน 1852 (2015) 826–838, https:// doi.org/10.1016/J.BBADIS.2015.01.015
(35) G. Barrera, S. Pizzimenti, MU Dianzani, การเกิดออกซิเดชันของไขมัน: การควบคุมการเพิ่มจำนวนเซลล์, การแยกเซลล์ และการตายของเซลล์, โมล งูเห่า. ยา 29 (2008) 1–8, https://doi.org/10.1016/j.mam.2007.09.012
[36] เอช. เบอร์, ก.-เอ็ม. Haapasaari, T. Turpeenniemi-Hujanen, O. Kuittinen, P. Auvinen, K. Marin, P. Koivunen, R. Sormunen, Y. Soini, P. Karihtala, เครื่องหมายความเครียดออกซิเดชัน และการแสดงออกของเอนไซม์ต้านอนุมูลอิสระในไมโตคอนเดรียเพิ่มขึ้นใน Hodgkin ที่ก้าวร้าว มะเร็งต่อมน้ำเหลือง, จุลพยาธิวิทยา 65 (2014) 319–327, https://doi. org/10.1111/his.12389.
[37] P. Karihtala, S. Kauppila, U. Puistola, A. Jukkola-Vuorinen, พฤติกรรมที่แตกต่างของเครื่องหมายความเครียดออกซิเดชัน 8-hydroxydeoxyguanosine (8-OHdG) และ 4-hydroxy{{ 5}} nominal (HNE) ในการก่อมะเร็งเต้านม, จุลพยาธิวิทยา 58 (2011) 854–862, https://doi.org/10.1111/j.1365-2559.2011.03835.x.
(38) O. Young, T. Crotty, R. O'Connell, J. O'Sullivan, AJ Curran, ระดับของความเสียหายจากออกซิเดชันและการเกิดออกซิเดชันของไขมันในเนื้องอกของต่อมไทรอยด์, คอศีรษะ (2009), https:// doi.org /10.1002/hed.21247.
(39) E. Skrzydlewska, A. Stankiewicz, M. Sulkowska, S. Sulkowski, I. Kasacka, สถานะสารต้านอนุมูลอิสระและการเกิดออกซิเดชันของไขมันในมะเร็งลำไส้ใหญ่, J. Toxicol สภาพแวดล้อม รักษา. ส่วนที่ ก 64 (2001) 213–222, https://doi.org/10.1080/15287390152543690
[40] L. Milkovic, A. Cipak Gasparovic, N. Zarkovic, ภาพรวมเกี่ยวกับปัจจัยที่ออกฤทธิ์ทางชีวภาพของการเกิดออกซิเดชันของไขมันที่สำคัญ 4-ไฮดรอกซีโนเนนอลในฐานะปัจจัยควบคุมการเจริญเติบโตที่หลากหลาย, อนุมูลอิสระ ความละเอียด 49 (2015) 850–860, https://doi.org/10.3109/10715762.2014 999056.
[41] RB Tjalkens, LW Cook, DR Petersen, การก่อตัวและการส่งออกคอนจูเกตกลูตาไธโอนของ 4-ไฮดรอกซี-2,3-e-nonenal (4-HNE) ในตับ เซลล์อาร์ค ไบโอเคม ชีวฟิสิกส์ 361 (1999) 113–119, https://doi.org/10.1006/ABBI.1998.0946
[42] G. Juric-Sekhar, K. Zarkovic, G. Waeg, A. Cipak, N. Zarkovic, การกระจายของ 4- คอนจูเกตไฮดรอกซีโนเนนัล-โปรตีนเป็นเครื่องหมายของการเกิดออกซิเดชันของไขมันและพารามิเตอร์ของความร้ายกาจใน astrocytic และ ependymal เนื้องอกในสมอง เนื้องอก 95 (ที่) 762–8.
(43) MU Dianzani, เปอร์ออกซิเดชันของไขมันและมะเร็ง: การพิจารณาใหม่ที่สำคัญ, เนื้องอก เจ. 75 (1989) 351–357, https://doi.org/10.1177/030089168907500410
(44) จีเอ็ม เดนิโคลา, FA คาร์เรธ, ทีเจ ฮัมป์ตัน, เอ. โกปินาธาน, ซี. เหว่ย, เค. เฟรเซ่, ดี. มังกัล, เคเอช ยู, ซีเจ โย, ES คัลฮูน, เอฟ. สคริมิเอรี, เจเอ็ม วินเทอร์, RH ฮรูบาน, ซี. ไออาโคบูซิโอ -Donahue, SE Kern, IA Blair, DA Tuveson, การถอดรหัส Nrf2 ที่เกิดจาก Oncogene ส่งเสริมการล้างพิษ ROS และการสร้างเนื้องอก, ธรรมชาติ 475 (2011) 106–109, https://doi.org/10.1038/nature10189
(45) HM Leinonen, E. Kansanen, P. Pölönen, M. Heinäniemi, A.-L. Levonen, บทบาทของวิถี Keap1 – Nrf2 ในมะเร็ง, Adv. มะเร็ง Res 122 (2014) 281–320, https://doi.org/10.1016/B978-0-12-420117-0.00008-6
[46] ย. หวาง, ว. ว. ลี่, A.-N. Kong ปัจจัยที่เกี่ยวข้องกับสารควบคุมความเครียดต่อต้านอนุมูลอิสระ NF-E2- 2 เป็นสื่อกลางในการกระตุ้นการปรับตัวของสารต้านอนุมูลอิสระและเอนไซม์ล้างพิษโดยเมตาบอไลต์ของไลปิดเปอร์ออกซิเดชัน 4-ไฮดรอกซีโนนีนัล, Cell Biosci 2 (2555) 40, https://doi. org/10.1186/2045-3701-2-40
[47] ม. ทานิโต ม.-ป. Aggaga, RE Anderson, การควบคุมระบบไทโอรีดอกซินผ่านวิถีธาตุที่ตอบสนองต่อสารต้านอนุมูลอิสระ Nrf2- ในการป้องกันระบบประสาทที่จอประสาทตาแบบปรับตัว ในร่างกาย และในหลอดทดลอง, อนุมูลอิสระ ไบโอล ยา 42 (2007) 1838–1850, https://doi.org/ 10.1016/J.FREERADBIOMED.2007.03.018
(48) เครื่องเล่น TJ, DJ Mills, AA Horton, การเกิดออกซิเดชันของไขมันของเศษส่วนไมโครโซม และไขมันไมโครโซมอลที่สกัดจากตับที่เกิดจาก DAB, Br. เจ. มะเร็ง 39 (1979) 773–778
[49] A. Hammer, M. Ferro, HM Tillian, F. Tatzber, H. Zollner, E. Schauenstein, RJ Schaur, ผลกระทบของความเครียดจากปฏิกิริยาออกซิเดชันโดยธาตุเหล็กต่อ 4-การก่อตัวไฮดรอกซีโนนีนัลและฤทธิ์การงอกขยายในเซลล์ตับชนิดต่างๆ องศาของความแตกต่าง Free Radic ไบโอล ยา 23 (1997) 26–33.
(50) RA Canuto, G. Muzio, M. Maggiora, ME Biocca, MU Dianzani, กลูตาไธโอน-Stransferase, แอลกอฮอล์ดีไฮโดรจีเนสและอัลดีไฮด์รีดักเตสกิจกรรมระหว่างการเกิดมะเร็งไดเอทิลไนโตรซามีนในตับหนู, มะเร็ง Lett 68 (1993) 177–183.
[51] JM Petrash ทั้งหมดในครอบครัว: aldose reductase และ aldo-keto reductases ที่เกี่ยวข้องอย่างใกล้ชิด, เซลล์ โมล วิทยาศาสตร์ชีวิต 61 (2004) 737–749, https://doi.org/10.1007/ s00018-003-3402-3
(52) R. Yan, X. Zu, J. Ma, Z. Liu, M. Adeyanju, D. Cao, ตระกูล Aldo – keto reductase 1 การปิดเสียงของยีน B10 ส่งผลให้เกิดการยับยั้งการเจริญเติบโตของเซลล์มะเร็งลำไส้ใหญ่: นัยสำหรับการแทรกแซงของมะเร็ง, นานาชาติ เจ. มะเร็ง 121 (2007) 2301–2306, https:// doi.org/10.1002/ijc.22933
[53] ฮ.-เจ. Martin, U. Breyer-Pfaff, V. Wsol, S. Venz, S. Block, E. Maser, การทำให้บริสุทธิ์และการกำหนดลักษณะเฉพาะของ AKR1B10 จากตับของมนุษย์: บทบาทในการลดคาร์บอนิลของซีโนไบโอติก, ยา Metab การกำจัด 34 (2549) 464–470, https://doi.org/10.1124/ dmd.105.007971
(54) B. Díez-Dacal, J. Gayarre, S. Gharbi, JF Timms, C. Coderch, F. Gago, D. PérezSala, การระบุ aldo-keto reductase AKR1B10 เป็นเป้าหมายที่เลือกสำหรับการปรับเปลี่ยนและการยับยั้งโดย prostaglandin A1 : ผลกระทบต่อฤทธิ์ต้านเนื้องอก, การต้านมะเร็ง 71 (2011) 4161–4171, https://doi.org/10.1158/0008-5472 สามารถ-10-3816
(55) B. Díez-Dacal, D. Pérez-Sala, พรอสตาแกลนดินระดับ A: การค้นพบในช่วงแรกและมุมมองใหม่ ๆ สำหรับการเอาชนะการรักษาด้วยเคมีบำบัดของเนื้องอก, Cancer Lett 320 (2012) 150–157, https://doi.org/10.1016/J.CANLET.2012.03.003
[56] LM Cagen, JJ Pisano, JN Ketley, WH Habig, WB Jakoby, การผันของพรอสตาแกลนดิน A1 และกลูตาไธโอนเร่งปฏิกิริยาโดยการถ่ายโอนกลูตาไธโอนที่เป็นเนื้อเดียวกันจากตับมนุษย์และหนู, Biochim ชีวฟิสิกส์ แอกตา 398 (1975) 205–208
(57) ML van Iersel, NH Cnubben, N. Smink, JH Koeman, PJ van Bladeren, ปฏิกิริยาของ prostaglandin A2 กับระบบการเปลี่ยนรูปทางชีวภาพที่ใช้กลูตาไธโอน, Biochem เภสัช 57 (1999) 1383–1390.
(58) R. Sultana, DA Butterfield, GST และ MRP1 ที่ได้รับการดัดแปลงออกซิเดชั่นในสมองโรคอัลไซเมอร์: ผลกระทบต่อการสะสมของผลิตภัณฑ์ lipid peroxidation ที่มีปฏิกิริยา, Neurochem ความละเอียด 29 (2004) 2215–2220.
[59] J. Gayarre, M. Isabel Avellano, FJ Sanchez-Gomez, MJ Carrasco, FJ Canada, D. Perez-Sala, การดัดแปลงโปรตีนโดย cyclopentenone prostaglandins ได้รับการปรับต่างกันโดย GSH ในหลอดทดลอง, Ann นิวยอร์ก อคาด. วิทยาศาสตร์ 1,096 (2007) 78–85, https://doi.org/10.1196/annals.1397.072
(60) FJ Sánchez-Gómez, J. Gayarre, MI Avellano, D. Pérez-Sala, หลักฐานโดยตรงสำหรับการดัดแปลงโควาเลนต์ของกลูตาไธโอน-S-transferase P1-1 โดยอิเล็กโทรฟิลิกพรอสตาแกลนดิน: ผลกระทบต่อการยับยั้งการทำงานของเอนไซม์และการอยู่รอดของเซลล์ , อาร์ค. ไบโอเคม ชีวฟิสิกส์ 457 (2007) 150–159, https://doi.org/10.1016/j.abb.2006.10.032
[61] F. Su, X. Hu, W. Jia, C. Gong, E. Song, P. Hamar, Glutathione S Transferase pi บ่งชี้ถึงการดื้อต่อเคมีบำบัดในมะเร็งเต้านม, J. Surg ความละเอียด 113 (2546) 102–108.
(62) TD Oberley, S. Toyokuni, LI Szweda, การแปล adducts ของโปรตีน hydroxynonenal ในไตของมนุษย์ปกติและมะเร็งไตของมนุษย์ที่เลือก, Free Radic ไบโอล ยา 27 (1999) 695–703.
[63] ก.-เอ. จุง, เอ็ม.-เค. Kwak การต้านทานไฮดรอกซีโนนีนอล 4-ที่ได้รับการปรับปรุงใน KEAP1 ยับยั้งเซลล์มะเร็งลำไส้ใหญ่ของมนุษย์อย่างออกซิด ยา เซลล์ ลองเกฟ. 2013 (2013) 423965, https:// doi.org/10.1155/2013/423965.
[64] W. Liu, AA Akhand, M. Kato, I. Yokoyama, T. Miyata, K. Kurokawa, K. Uchida, I. Nakashima, 4-ไฮดรอกซีโนเนนัลกระตุ้นปัจจัยการเจริญเติบโตของผิวหนังชั้นนอก วิถีทางสัญญาณที่เชื่อมโยงกับตัวรับสำหรับการเจริญเติบโต ยับยั้ง เจ. เซลล์ วิทย์. 112 (พอยต์ 14) (1999) 2409–2417
(65) NM Andronicos, M. Ranson, J. Bognacki, MS Baker, ผลิตภัณฑ์ยีน ENO1 ของมนุษย์ (recombinant human alpha-enolase) แสดงลักษณะที่จำเป็นสำหรับโปรตีนที่มีผลผูกพันกับ plasminogen, Biochim ชีวฟิสิกส์ แอคตา 1337 (1997) 27–39
[66] CD Aluise, K. Rose, M. Boiani, ML Reyzer, JD Manna, K. Tallman, NA Porter, LJ Marnett, Peptidyl-prolyl cis/trans -isomerase A1 (Pin1) เป็นเป้าหมายสำหรับการดัดแปลงโดย lipid electrophiles , เคม. ความละเอียด สารพิษ 26 (2013) 270–279, https://doi.org/10.1021/tx300449g.