ในการออกแบบซิลิโกของวัคซีนหลายอีพิโทปแบบไคเมอริกสำส่อนเพื่อต่อต้านเชื้อวัณโรค ตอนที่ 2
Jul 13, 2023
2.15. ภาพรวมของการออกแบบวัคซีนหลายอีพิโทป
รูปที่ 1 สรุปแนวคิดโดยรวมของการออกแบบวัคซีนหลายอีพิโทปนี้ โดยสังเขป เราวิเคราะห์แอนติเจนของโปรตีน M. tuberculosis ที่ได้รับจาก IEDB และเลือกแอนติเจนแปดตัวสำหรับการสร้างวัคซีนหลายอีพิโทป โดยพิจารณาจากการจำแนกประเภทหน้าที่และการแปลเซลล์ย่อย จากนั้น เราคาดการณ์แอนติเจนเอพิโทปของโปรตีนแปดชนิดนี้และเลือกเอพิโทป CTL 15 ตัว เอพิโทป HTL 16 ตัว และอีพิโทปเซลล์บี 10 ตัว ซึ่งเชื่อมโยงเพิ่มเติมกับ HBHA adjuvant และ PADRE ผ่านตัวเชื่อมโยงที่เหมาะสม นอกจากนี้ เราคาดการณ์แอนติเจน การก่อภูมิแพ้ คุณสมบัติทางเคมีกายภาพ และโปรไฟล์ภูมิคุ้มกันของวัคซีนหลายอีพิโทปที่ออกแบบ ในขณะเดียวกัน เรายังทำนายโครงสร้างทุติยภูมิและตติยภูมิของวัคซีนและวิเคราะห์ปฏิกิริยาที่อาจเกิดขึ้นกับตัวรับภูมิคุ้มกัน TLR4
Mycobacterium tuberculosis เป็นเชื้อโรคทั่วไปที่ทำให้เกิดวัณโรค โปรตีน Mycobacterium tuberculosis เป็นหนึ่งในองค์ประกอบหลักของ Mycobacterium tuberculosis ซึ่งมีความสำคัญอย่างยิ่งต่อการทำงานของระบบภูมิคุ้มกันของมนุษย์
โปรตีน Mycobacterium tuberculosis สามารถกระตุ้นระบบภูมิคุ้มกันของมนุษย์และเพิ่มภูมิคุ้มกันของร่างกาย เมื่อร่างกายติดเชื้อจากเชื้อมัยโคแบคทีเรียม ทูเบอร์คูโลซิส ระบบภูมิคุ้มกันของมนุษย์จะสร้างชุดของการตอบสนองทางภูมิคุ้มกัน รวมทั้งการกระตุ้นและเพิ่มจำนวนของทีเซลล์และบีเซลล์ที่เฉพาะเจาะจง เซลล์เหล่านี้สามารถปล่อยปัจจัยภูมิคุ้มกันได้หลายชนิด เช่น อินเตอร์ฟีรอน อินเตอร์ลิวคิน เป็นต้น รวมทั้งแอนติบอดีที่จะช่วยให้ร่างกายต้านทานเชื้อวัณโรคที่บุกรุกเข้ามาได้
นอกจากนี้โปรตีน Mycobacterium tuberculosis ยังสามารถควบคุมสมดุลของระบบภูมิคุ้มกันและหลีกเลี่ยงความเสียหายของภูมิคุ้มกันที่เกิดจากการกระตุ้นการตอบสนองของภูมิคุ้มกันของร่างกายมากเกินไป ในช่วงไม่กี่ปีที่ผ่านมา การวิจัยและพัฒนาวัคซีนวัณโรคได้เน้นไปที่การประยุกต์ใช้โปรตีนจากเชื้อวัณโรคเป็นหลัก ซึ่งสามารถเสริมภูมิคุ้มกันของระบบภูมิคุ้มกันของมนุษย์ผ่านการฉีดวัคซีน และป้องกันการเกิดและการแพร่กระจายของวัณโรคได้อย่างมีประสิทธิภาพ
ดังนั้นโปรตีน Mycobacterium tuberculosis จึงมีความสำคัญอย่างมากต่อผลกระทบของภูมิคุ้มกันของมนุษย์ ด้วยการเสริมสร้างระบบภูมิคุ้มกันอย่างแข็งขัน โดยการออกกำลังกายที่เหมาะสมและโภชนาการที่เหมาะสม คุณจะสามารถป้องกันวัณโรคและโรคติดเชื้ออื่นๆ ได้ดีขึ้น และรักษาสุขภาพให้แข็งแรง จากมุมมองนี้ เราจำเป็นต้องปรับปรุงภูมิคุ้มกันของเรา Cistanche สามารถปรับปรุงภูมิคุ้มกันได้อย่างมีนัยสำคัญเนื่องจากโพลีแซคคาไรด์ในเนื้อสัตว์สามารถควบคุมการตอบสนองทางภูมิคุ้มกันของระบบภูมิคุ้มกันของมนุษย์ ปรับปรุงความสามารถในการรับความเครียดของเซลล์ภูมิคุ้มกัน และเพิ่มภูมิคุ้มกันของเซลล์ภูมิคุ้มกัน ฤทธิ์ฆ่าเชื้อแบคทีเรีย

คลิกอาหารเสริม cistanche Deserticola
3. ผลลัพธ์
3.1. การดึงเอาโปรตีน M. tuberculosis มาใช้ในการสร้างวัคซีนหลายอีพิโทป
ในการสร้างวัคซีนหลายอีพิโทปเพื่อต่อต้านวัณโรค ขั้นแรก เราวิเคราะห์แอนติเจนของโปรตีนในเชื้อ M. tuberculosis H37Rv โปรตีนทั้งหมด 492 ชนิดที่มีคุณสมบัติทางภูมิคุ้มกันที่ผ่านการตรวจสอบได้รับจากฐานข้อมูล IEDB ซึ่งโปรตีน 402 ชนิด (ร้อยละ 81.70) ถูกคาดการณ์ว่าเป็นแอนติเจน สำหรับลักษณะการทำงานของโปรตีน 492 ชนิดเหล่านี้ 353 ชนิดได้รับการเสริมประสิทธิภาพในฐานข้อมูลของ DAVID ในขณะที่ 139 ชนิดไม่ได้เสริมประสิทธิภาพ การวิเคราะห์โลคัลไลเซชันแสดงให้เห็นว่า 97 จาก 353 โปรตีนที่ได้รับการเสริมประสิทธิภาพถูกโลคัลไลเซชันในช่องนอกเซลล์ ซึ่งเป็นช่องว่างนอกผิวเซลล์ โปรตีนที่อยู่ในช่องนอกเซลล์รวมถึงโปรตีนเยื่อหุ้มชั้นนอกและโปรตีนที่หลั่งออกมา
ในบรรดาโปรตีน 97 ชนิด 49 ชนิดเป็นโปรตีนที่หลั่งออกมา การเพิ่มปริมาณโปรตีนที่หลั่งออกมาอีก 49 ชนิดเผยให้เห็นว่าโปรตีน 5 ชนิดถูกหลั่งไปยังพื้นที่นอกเซลล์ และอีก 5 ชนิดที่จำเป็นต่อการเกิดโรค (ตรวจสอบโดยการทดลองโดย BioCyc) [48] ยิ่งไปกว่านั้น เมื่อโปรตีนทั้งสิบนี้สอดคล้องกับโปรตีนทั้งหมดของ H. sapiens โปรตีนสองตัว (Mpt83 และ Mpt70) มีความคล้ายคลึงกับโปรตีน H. sapiens อย่างมาก ดังนั้น โปรตีนที่เหลืออีกแปดชนิดที่ไม่เหมือนกับโปรตีน H. sapiens (ตารางที่ 1) จึงถือเป็นตัวเลือกสุดท้ายสำหรับการสร้างวัคซีนหลายอีพิโทป
3.2. การทำนายของ T-cell และ B-cell epitopes ของโปรตีนที่เป็นตัวเลือก
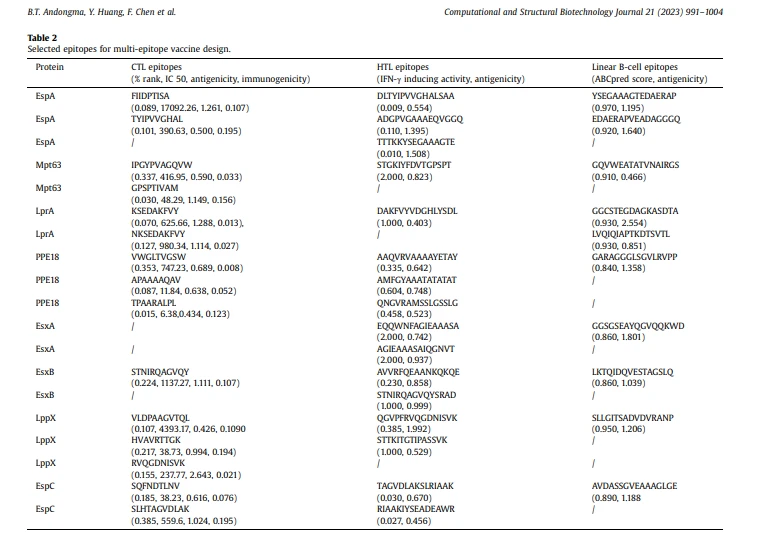
ก่อนการทำนายเอพิโทป สัญญาณเปปไทด์ถูกระบุและลบออกจากโปรตีนที่เป็นตัวเลือก NetMHCpan ทำนายผล CTL ทั้งหมด 623 epitopes จากโปรตีนที่มีตัวเลือก 8 ชนิดที่มีตัวประสานที่แข็งแกร่ง 135 ชนิด (16 จาก A1, 40 จาก A2, 22 จาก A3, 19 จาก A24, และ 38 จาก B7 supertypes ของ MHC class I) ได้รับการทำนายโดย NetMHCpan{{12} }.1 เซิร์ฟเวอร์ (รูปที่ 2A, B) ในบรรดาสารยึดเกาะที่แข็งแรง 135 ชนิด มี 36 ชนิดที่เป็นทั้งแอนติเจนและภูมิคุ้มกัน ในที่สุด เราเลือก epitopes ของ CTL 15 จาก 36 รายการตามเกณฑ์ต่อไปนี้: สาม epitopes ต่อ supertype และอย่างน้อยหนึ่งรายการต่อโปรตีนผู้สมัคร (หมายเหตุ: EsxA ไม่มีสารยึดเกาะที่แข็งแกร่งที่เป็นทั้งแอนติเจนและภูมิคุ้มกัน) (ตารางที่ 2)
ยิ่งไปกว่านั้น เราคาดการณ์ epitopes ของ HTL ( epitopes ของ MHC class II) {{0}}mer epitopes จากสี่อัลลีล (HLA_DRB, HLA_DP, HLA_DQ และ H-2-I) ที่มี การจัดอันดับเปอร์เซ็นต์ น้อยกว่าหรือเท่ากับ 20 ถือเป็นตัวประสานที่แข็งแกร่งและจัดอันดับจากคะแนนต่ำสุดไปยังคะแนนสูงสุด อัลลีล HLA-DR มีจำนวนตัวประสาน MHC II สูงสุด (2990) ในขณะที่ HLA-DP มีจำนวนน้อยที่สุด (601) (รูปที่ 2C, D) ควรสังเกตว่าการตอบสนองของภูมิคุ้มกันในความผิดปกติของแกรนูโลมาตัส เช่น วัณโรค โรคเรื้อน และโรคซาร์คอยโดซิสถูกควบคุมโดยเซลล์ T-helper-1 (Th1) ที่ผลิต IFN [97] นอกจากนี้ รายงานก่อนหน้านี้พบว่าการแสดงออกของไซโตไคน์ของ Th1 (IFN- และ IL2) ลดลงในผู้ป่วยวัณโรค [98] ดังนั้น ในการกระตุ้นเซลล์ Th1 เราจึงคาดการณ์ 15-mer IFN- -ที่กระตุ้นเปปไทด์ของโปรตีนเหล่านี้ อีพิโทปทั้งหมด 534 อีพิโทปที่มีฤทธิ์เหนี่ยวนำ IFN ถูกทำนายไว้โดยใช้ NetMHCIIpan 4.0 ซึ่งอีพิโทป 315 อีพิโทปเป็นแอนติเจน จากอีพิโทป 315 รายการเหล่านี้ 103 รายการแสดงการมีฤทธิ์ในการจับที่แข็งแกร่งกับอัลลีล HLA อย่างน้อยหนึ่งอัลลีล
นอกจากนี้ ความหลากหลายในอัลลีลของ HLA ยังส่งผลให้เกิดการแปรผันของอัลลีล ซึ่งนำไปสู่ความจำเพาะในการจับเปปไทด์ที่แตกต่างกันอย่างมาก [55] เป็นผลให้เราเลือกหนึ่งอีพิโทปที่มีการออกฤทธิ์การจับที่แข็งแกร่งที่สุด (อีพิโทปที่สำส่อนที่สุด) จากแต่ละโปรตีนที่เป็นตัวเลือกแปดตัว นอกจากนี้ อีพิโทปที่เหลืออีก 95 อีพิโทปถูกจัดลำดับตามความแข็งแรงในการจับ และจากนั้นอีพิโทปเพิ่มเติมอีกแปดอีพิโทปถูกเลือก โดยมีอีพิโทปสูงสุดสองอีพิโทปต่อโปรตีนที่เป็นตัวเลือก ในที่สุด เราเลือก 16 จาก 103 เอพิโทป HTL ตามเกณฑ์ต่อไปนี้: อย่างน้อยหนึ่งเอพิโทปและสูงสุดสามเอพิโทปต่อโปรตีนที่เป็นตัวเลือก กิจกรรมการจับที่แข็งแกร่งที่สุดต่อโปรตีนที่คัดเลือก และแอนติเจนและ IFN- เหนี่ยวนำมากที่สุด จากนั้นเราใช้พวกมันเพื่อสร้างวัคซีนหลายอีพิโทปนี้ (ตารางที่ 2)
สำหรับการทำนายอีพิโทป B-เซลล์เชิงเส้น เซิร์ฟเวอร์สองตัว (BepiPred2.0 และ ABCpred) ถูกใช้และได้รับ 166 อีพิโทป เราคาดการณ์แอนติเจนของอีพิโทปห้าอันดับแรกสำหรับโปรตีนแต่ละชนิด จากนั้นเลือกแอนติเจนอีพิโทปสิบรายการ (16-เมอร์ อย่างน้อยหนึ่งรายการจากแต่ละโปรตีนที่เป็นตัวเลือก) (ตารางที่ 2)

3.3. การสร้างวัคซีนหลายอีพิโทป
สำหรับการสร้างวัคซีนหลายอีพิโทป HBHA, PADRE, 16 HTL (15-เมอร์), 15 CTL และ 10 เอพิโทปบีเซลล์เชิงเส้น (16-เมอร์) ถูกเชื่อมต่อผ่านตัวเชื่อมโยงที่เหมาะสมและหางโดยฮิส × 6 แท็ก (รูปที่ 3) สารเสริมเป็นองค์ประกอบสำคัญของวัคซีนที่สามารถกระตุ้นการตอบสนองทางภูมิคุ้มกันโดยธรรมชาติและแบบปรับตัวได้ [99] โปรตีนจำนวนมากจาก M. tuberculosis มีคุณสมบัติเสริมและถูกนำมาใช้ในการออกแบบวัคซีน [17,27,87,100–105] หนึ่งในสิ่งที่ใช้กันอย่างแพร่หลายคือ HBHA [100–105] ซึ่งเป็นสารกระตุ้นภูมิคุ้มกันที่มีศักยภาพที่กระตุ้นการเจริญเติบโตของเซลล์ dendritic (DCs) ผ่านการประมวลผล TLR4 [105,106] พบว่า DCs ที่ได้รับการรักษาด้วย HBHA สามารถกระตุ้น T เซลล์ที่ไร้เดียงสา, โพลาไรซ์ CD4 บวกและ CD8 บวก T เซลล์เพื่อหลั่ง IFN- และกระตุ้นความเป็นพิษต่อเซลล์ของ T-cell-mediated [47]
ในการศึกษานี้ เราวาง HBHA เป็นโปรตีนเสริมที่ปลาย N เนื่องจากเหมาะสมที่จะเริ่มการสังเคราะห์โครงสร้างวัคซีนจาก HBHA ซึ่งเป็นโปรตีนที่เกิดขึ้นตามธรรมชาติ ก่อนหน้านี้ HBHA ถูกวางไว้ที่ปลาย N ของวัคซีน multiepitope บางตัวในฐานะตัวเสริม [105,107] นอกจากสารเสริมแล้ว PADRE ซึ่งปลอดภัยสำหรับมนุษย์ ยังสามารถเพิ่มการสร้างภูมิคุ้มกันของวัคซีนได้อย่างมีนัยสำคัญ เนื่องจากจับกับอัลลีล MHC-II ของมนุษย์และเมาส์หลายตัวที่มีสัมพรรคภาพสูงเพื่อกระตุ้นการตอบสนองที่อาศัยเซลล์ Th [47,62] HBHA และ PADRE เชื่อมต่อกันด้วยตัวเชื่อมโยง PEAK แบบเกลียว ซึ่งให้ความแข็งแกร่งในขณะที่แยกส่วนประกอบโปรตีนทั้งสองเพื่อเพิ่มประสิทธิภาพและลดการรบกวน ยิ่งไปกว่านั้น สะพานเกลือ Glu-Lys ที่ก่อตัวขึ้นภายในส่วนนั้นทำให้ตัวเชื่อมโยงมีความเสถียร

เนื่องจาก PADRE สามารถเพิ่มประสิทธิภาพการทำงานของ HTL epitopes ของวัคซีนได้ [54] เราจึงวาง HTL epitopes 16 ตัวต่อจาก PADRE ตัวเชื่อมโยง GPGPG ถูกใช้เพื่อเชื่อมโยง epitopes ของ HTL เข้าด้วยกันและกับ PADRE เนื่องจากช่วยอำนวยความสะดวกในการลุกลามของเซลล์ภูมิคุ้มกันและการนำเสนอ epitope [108,109] ยิ่งไปกว่านั้น GPGPG ยังกระตุ้นการตอบสนองทางภูมิคุ้มกันของ HTL ซึ่งสามารถทำลายภูมิคุ้มกันของชุมทางและฟื้นฟูภูมิคุ้มกันของ epitopes แต่ละตัวหลังจากการประมวลผล [108]
สำหรับ 15 CTL epitope แต่ละ epitope ถูกเชื่อมเข้าด้วยกันโดยตัวเชื่อมโยง AAY ซึ่งช่วยให้ epitope สร้างตำแหน่งที่เหมาะสมในการจับกับ TAP transporter และเพิ่มการนำเสนอ epitope [47] นอกจากนี้ หน่วยย่อยอีพิโทป CTL ทั้งหมดเชื่อมโยงกับอีพิโทป HTL ต้นทางผ่านตัวเชื่อมโยง HEYGAEALERAG ที่มีตำแหน่งสำหรับการตัดแยกที่เหมาะสมห้าตำแหน่ง (A7-L8, A5-E6, Y3-G4, R 10-A11 และ L8-E9) จำเป็นสำหรับระบบการย่อยสลายยูคาริโอตโปรตีโอโซมและไลโซโซม ในยูคาริโอต โปรตีโอโซมและไลโซโซมเป็นกลไกการสลายโปรตีนที่สำคัญที่สุด ซึ่งใช้ระบบ ubiquitin-proteasome (UPS) และทางเดินอาหารอัตโนมัติตามลำดับ [110]
ตัวเชื่อมโยง HEYGAEALERAG ยังถูกใช้เพื่อเชื่อมโยงหน่วยย่อยอีพิโทป CTL กับอีพิโทปบีเซลล์เชิงเส้นดาวน์สตรีม 10 ตัวที่เชื่อมต่อเข้าด้วยกันโดยตัวเชื่อมโยง KK จากการศึกษาก่อนหน้านี้ KK linker ป้องกันการเหนี่ยวนำของแอนติบอดีในลำดับกรดอะมิโนซึ่งเป็นผลมาจากการรวมกันของเปปไทด์ทั้งสอง จึงช่วยอำนวยความสะดวกในการแสดงเฉพาะของเปปไทด์แต่ละตัวต่อแอนติบอดี [111] ในที่สุด แท็ก His× 6 ถูกแนบเข้ากับปลาย C ของ epitope B-cell เชิงเส้นสุดท้ายสำหรับการทำให้บริสุทธิ์และลักษณะของวัคซีนในภายหลัง (รูปที่ 3)
โปรตีนไคเมอริกขั้นสุดท้ายประกอบด้วยกรดอะมิโน 933 ตัว โดยเริ่มจาก HBHA แบบเสริม ตามด้วย 41 epitopes และลงท้ายด้วยแท็ก His× 6 (รูปที่ 3) เนื่องจากโปรตีนไคเมอริกนี้ประกอบด้วยแอนติเจนหลายอีพิโทปจากโปรตีน 8 ชนิด เราจึงตั้งชื่อมันว่า MTBV8 ซึ่งเป็นวัคซีนป้องกันวัณโรคหลายอีพิโทปที่ได้มาจากโปรตีนที่เป็นตัวเลือก 8 ชนิด
3.4. การวิเคราะห์ค่าแอนติเจน ความเป็นภูมิแพ้ และพารามิเตอร์ทางฟิสิกส์เคมีของ MTBV8
การศึกษาก่อนหน้านี้แสดงให้เห็นว่าวัคซีนของมนุษย์จำเป็นต้องมีแอนติเจนเพื่อกระตุ้นการตอบสนองทางภูมิคุ้มกันของร่างกาย ซึ่งนำไปสู่การสร้างเซลล์ความจำที่มุ่งต่อต้าน epitopes ของเชื้อที่ติดเชื้อ [112] ดังนั้นเราจึงคาดการณ์แอนติเจนของวัคซีนหลายอีพิโทป MTBV8 โดยใช้เซิร์ฟเวอร์ VaxiJen 2.0 และได้รับแอนติเจนที่ 0.97 ซึ่งสูงกว่าค่าเกณฑ์อย่างมีนัยสำคัญ ({{7} }.4) [45,46] สำหรับโปรตีนจากแบคทีเรียที่จะถือว่าเป็นแอนติเจน โดยเฉพาะอย่างยิ่ง MTBV8 มีแอนติเจนมากกว่าโปรตีนที่เป็นส่วนประกอบทั้งหมด (รูปที่ 4) ซึ่งบ่งชี้ว่าสามารถกระตุ้นการตอบสนองของภูมิคุ้มกันโฮสต์ได้อย่างมีประสิทธิภาพ
ยิ่งไปกว่านั้น มีรายงานว่าโมเลกุลขนาดใหญ่ของจุลินทรีย์จำนวนมากมีศักยภาพในการกระตุ้นให้เกิดปฏิกิริยาภูมิไวเกินในมนุษย์ [113] ในการวิเคราะห์ปัญหาภูมิไวเกินของ MTBV8 และโปรตีนที่เป็นส่วนประกอบทั้ง 8 ชนิด เราคาดการณ์การแพ้โดยใช้เซิร์ฟเวอร์ AllerTOP 20 โปรตีนสองในแปดองค์ประกอบ (LprA และ EspC) ถูกคาดการณ์ว่าจะเป็นสารก่อภูมิแพ้ (ตารางที่ 1) ควรสังเกตว่าแม้ว่าวัคซีนหลายอีพิโทปที่ออกแบบ (MTBV8) จะมีอีพิโทป 10 ชนิดที่ได้จากโปรตีนทั้งสองนี้ แต่คาดการณ์ว่าจะไม่ก่อให้เกิดการแพ้ ซึ่งบ่งชี้ว่าวัคซีนนี้ปลอดภัย
เพื่อระบุลักษณะเฉพาะของ MTBV8 เพิ่มเติม เราได้วิเคราะห์คุณสมบัติทางเคมีฟิสิกส์ผ่านเซิร์ฟเวอร์ ExPASy ProtParam โปรตีนรีคอมบิแนนท์มีน้ำหนักโมเลกุล 94.84 kDa และจุดไอโซอิเล็กทริก 8.91 นอกจากนี้ โปรตีนยังถือว่าเสถียรด้วยดัชนีความไม่เสถียรที่คำนวณได้ (II) ที่ 26.44 (โปรตีนที่มีดัชนีความไม่เสถียร > 40 ถือว่าไม่เสถียร) [64] ค่าครึ่งชีวิตในหลอดทดลองโดยประมาณคือ 30 ชั่วโมงในเซลล์เรติคูโลไซต์ของสัตว์เลี้ยงลูกด้วยนม นานกว่าในยีสต์ในสัตว์ทดลอง 20 ชั่วโมง และในร่างกาย 10 ชั่วโมงในเชื้อ E. coli นอกจากนี้ ดัชนีอะลิฟาติกของ MTBV8 คือ 71.91 และค่าเฉลี่ยโดยรวมของความชอบน้ำ (GRAVY) คือ −0.32 ซึ่งบ่งชี้ว่าโปรตีนรีคอมบิแนนท์นั้นชอบน้ำ ในที่สุด ค่าความสามารถในการละลายตามสัดส่วนของ MTBV8 (0.54) นั้นมากกว่าค่าเฉลี่ยสำหรับชุดข้อมูลประชากร (0.45) ซึ่งบ่งชี้ว่าวัคซีนที่ทดสอบสามารถละลายได้มากกว่าครึ่งหนึ่งของโปรตีน E. coli [114] ผลลัพธ์ข้างต้นบ่งชี้ว่า MTBV8 มีคุณสมบัติทางกายภาพและทางเคมีที่ดีและเหมาะสำหรับใช้เป็นวัคซีน

3.5. ข้อมูลภูมิคุ้มกันของ MTBV8
ในการประเมินโปรไฟล์ภูมิคุ้มกันของ MTBV8 เราได้วิเคราะห์การตอบสนองของภูมิคุ้มกันในซิลิโกผ่านเซิร์ฟเวอร์ภูมิคุ้มกัน C-IMMSIM ดังที่แสดงในรูปที่ 5A ระดับ IgM และ IgG1 เพิ่มขึ้นอย่างมากหลังจากการกระตุ้นภูมิคุ้มกันทุติยภูมิโดย MTBV8 ยิ่งไปกว่านั้น ระดับของ B-cells ที่ใช้งานเพิ่มขึ้นและยังคงอยู่ในระดับสูงหลังจากการสร้างภูมิคุ้มกันแต่ละครั้ง (รูปที่ 5B) แม้แต่เซลล์ B ในพลาสมา B isotypes IgM และ IgG1 ยังคงสูงหลังจากสร้างภูมิคุ้มกัน (รูปที่ 1A, B เพิ่มเติม) สำหรับผลกระทบต่อเซลล์ T ระดับของเซลล์หน่วยความจำ Th (y2) (รูปที่ 1C เสริม) และเซลล์ Th ที่ใช้งานอยู่ (รูปที่ 5C) เพิ่มขึ้นอย่างรวดเร็วหลังจากการสร้างภูมิคุ้มกันหลักและเพิ่มขึ้นอย่างมีนัยสำคัญหลังจากการสร้างภูมิคุ้มกันทุติยภูมิ เรกูเลเตอร์ ที เซลล์ (เซลล์ที่ออกฤทธิ์เป็นหลัก) ถูกกระตุ้นเมื่อสร้างภูมิคุ้มกันครั้งแรกและจากนั้นลดลงอย่างรวดเร็ว (รูปที่ 1D เพิ่มเติม) ที่น่าสนใจคือระดับของเซลล์ T (Tc) ที่เป็นพิษต่อเซลล์ที่แอคทีฟเพิ่มขึ้นอย่างรวดเร็วหลังจากการสร้างภูมิคุ้มกันขั้นต้น ยังคงอยู่ในระดับสูงในการสร้างภูมิคุ้มกันครั้งที่สอง และจากนั้นก็ลดลงอย่างต่อเนื่อง ในขณะที่เซลล์ Tc ที่วางอยู่แสดงแนวโน้มย้อนกลับกับเซลล์ Tc ที่ใช้งานอยู่ (รูปที่ 5D) ในทางตรงกันข้าม ระดับของ anergic (y2) Tc เซลล์ (รูปที่ 5D) และหน่วยความจำ Tc เซลล์ (รูปที่ 1E เสริม) ยังคงไม่เปลี่ยนแปลงเมื่อสร้างภูมิคุ้มกัน นอกจากนี้ ควรสังเกตว่าระดับของปัจจัยภูมิคุ้มกัน IFN- และ IL-2 ที่หลั่งโดยทีเซลล์ที่มีความสำคัญต่อการตอบสนองทางภูมิคุ้มกันต่อเชื้อ M. tuberculosis [115] เพิ่มขึ้นอย่างมีนัยสำคัญเช่นกันหลังจากการสร้างภูมิคุ้มกันโรค MTBV8 (รูปที่ 5E).
นอกจากนี้ เราคาดการณ์ผลของการฉีดวัคซีน MTBV8 ต่อประชากรเซลล์ภูมิคุ้มกันโดยกำเนิด (รูปที่ 5F และรูปที่ 1FH เพิ่มเติม) การนำเสนอ-2 เซลล์ใน DCs และแมคโครฟาจเพิ่มขึ้นอย่างรวดเร็วเมื่อการสร้างภูมิคุ้มกันครั้งแรก ในขณะที่มีการเพิ่มขึ้นเพียงเล็กน้อยเท่านั้นที่สังเกตเห็นหลังจากการสร้างภูมิคุ้มกันครั้งที่สอง (รูปที่ 5F และรูปที่ 1G เพิ่มเติม) นอกจากนี้ ในแมคโครฟาจ การสร้างภูมิคุ้มกันครั้งแรกส่งผลให้มาโครฟาจทั้งที่ทำงานอยู่และพักผ่อนเพิ่มขึ้นหรือลดลงพร้อมกัน ไม่กี่สัปดาห์หลังการฉีดวัคซีนครั้งที่สอง แมคโครฟาจที่แอคทีฟลดลงอย่างรวดเร็วในขณะที่มาโครฟาจขณะพักเพิ่มขึ้นอย่างรวดเร็ว (รูปที่ 1G เพิ่มเติม) โดยเฉพาะอย่างยิ่ง เซลล์นักฆ่าตามธรรมชาติและประชากรเซลล์เยื่อบุผิวที่แอคทีฟแสดงรูปแบบที่ค่อนข้างคงที่เมื่อสร้างภูมิคุ้มกัน (รูปที่ 1F, H เพิ่มเติม) เมื่อนำมารวมกัน การคาดการณ์เหล่านี้บ่งชี้ว่า MTBV8 สามารถกระตุ้นการตอบสนองทางภูมิคุ้มกันทั้งโดยกำเนิดและแบบปรับตัวได้ ทำให้เป็นวัคซีนตัวเลือกที่มีประสิทธิภาพ
3.6. ทำนายโครงสร้างทุติยภูมิและตติยภูมิของ MTBV8
เพื่อกำหนดลักษณะเฉพาะของ MTBV8 ให้ดียิ่งขึ้น เราได้คาดการณ์โครงสร้างทุติยภูมิและตติยภูมิ ตามด้วยการปรับแต่งโครงสร้างตติยภูมิ โครงสร้างทุติยภูมิของ MTBV8 ประกอบด้วยเอนริเก้ 42.12 เปอร์เซ็นต์ เส้นเกลียว 11.79 เปอร์เซ็นต์ และขดลวด 46.09 เปอร์เซ็นต์ (รูปที่ 2 เพิ่มเติม) ตามการคาดการณ์ของ DISOPRED3 พบว่า 27.11 เปอร์เซ็นต์ของกรดอะมิโนตกค้างไม่เป็นระเบียบ
โครงสร้างระดับอุดมศึกษาของ MTBV8 คาดการณ์โดยเซิร์ฟเวอร์ I-TASSER และได้รับ 5 โมเดลที่มีคะแนน C ที่ดี คะแนน C อยู่ระหว่าง −5.0 ถึง 2.0 และเป็นสัดส่วนกับความน่าเชื่อถือของการคาดคะเน โมเดลเหล่านี้อยู่ภายใต้การวิเคราะห์ ProSA-web และโมเดล 4 ถูกเลือกเนื่องจากคุณลักษณะดังต่อไปนี้ C คะแนน=−3.8, Z คะแนน=−4.4 การวิเคราะห์แผนภาพรามจันทรันของโครงสร้างตติยภูมินี้แสดงให้เห็นว่าน้อยกว่า 70.0 เปอร์เซ็นต์ของสารตกค้างอยู่ในบริเวณที่ต้องการ ดังนั้นจึงจำเป็นต้องมีการปรับแต่งเพิ่มเติมของโครงสร้างตติยภูมิ
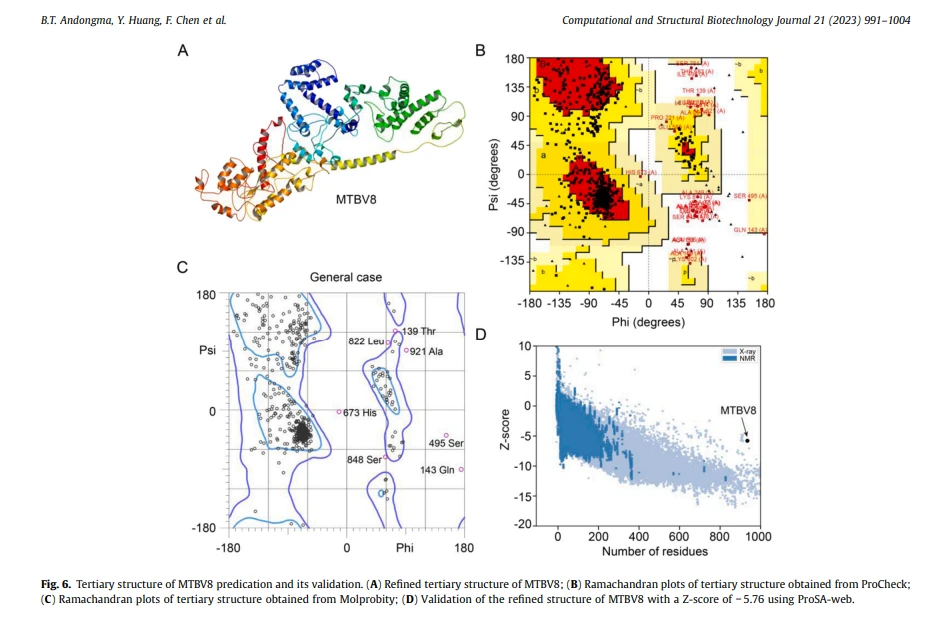
โครงสร้างระดับอุดมศึกษาที่ได้รับจาก I-TASSER ได้รับการปรับปรุงโดยเซิร์ฟเวอร์ ModRefiner ตามด้วยเซิร์ฟเวอร์ GalaxyRefine เพื่อสร้างแบบจำลองห้าแบบ ในบรรดาโมเดลที่ได้รับการปรับปรุงทั้งห้า โมเดลที่ 2 มีโครงสร้างที่ดีที่สุดเมื่อพิจารณาจากพารามิเตอร์ต่อไปนี้: การทดสอบระยะทางทั่วโลกความแม่นยำสูง (0.89), RMSD (0.58), MolProbity (2.31), การปะทะกัน คะแนน (14.8), คะแนนคนจน ({{10}}}.80) และคะแนนแผนรามจันทรัน (86.5 เปอร์เซ็นต์ ) (รูปที่ 6A) การวิเคราะห์โครงเรื่องรามจันทรันของโครงสร้างนี้โดยใช้ PROCHECK เปิดเผยว่าจาก 753 non-glycine, non-proline และ non-terminal residences 78.9 เปอร์เซ็นต์อยู่ในบริเวณที่ดีที่สุด [A, B, L] และ 17.3 เปอร์เซ็นต์อยู่ใน ขอบเขตที่อนุญาตเพิ่มเติม [a, b, l, p] และ 1.5 เปอร์เซ็นต์ในพื้นที่ที่อนุญาตโดยทั่วไป [∼a, ∼b, ∼l, ∼p] โดยมีเพียง 2.4 เปอร์เซ็นต์ในพื้นที่ที่ไม่อนุญาต (รูปที่ 6B) เมื่อวิเคราะห์โครงเรื่องรามจันทรันของโครงสร้างที่ปรับปรุงแล้วโดยใช้ Molprobity เราพบว่า 86.5 เปอร์เซ็นต์ของกรดอะมิโนตกค้างอยู่ในบริเวณที่เหมาะสม ซึ่งเหมือนกับที่ได้รับจากเซิร์ฟเวอร์ GalaxyRefine (รูปที่ 6C) . นอกจากนี้ 98.0 เปอร์เซ็นต์ของสิ่งตกค้างอยู่ในพื้นที่ที่อนุญาต ในขณะที่ 19 สิ่งตกค้างเป็นค่าผิดปกติ (phi, psi) (รูปที่ 6C) แม้ว่าแบบจำลองที่ได้รับการปรับปรุงจะมีสิ่งตกค้างในภูมิภาคที่โปรดปรานมากกว่าเมื่อเทียบกับแบบจำลองที่สร้างโดย I-TASSER แต่ก็จำเป็นต้องได้รับการตรวจสอบเพิ่มเติม
การตรวจสอบแบบจำลองเป็นขั้นตอนสำคัญในกระบวนการสร้างแบบจำลอง เนื่องจากสามารถระบุข้อผิดพลาดที่อาจเกิดขึ้นในแบบจำลอง 3 มิติที่คาดการณ์ไว้ [116] เพื่อตรวจสอบความถูกต้องของแบบจำลองที่ปรับปรุงแล้วของการวิเคราะห์ MTBV8, ProSA-web และ ERRAT การวิเคราะห์เว็บ ProSA แสดงคะแนน Z ที่ − 5.76 สำหรับ MTBV8 (รูปที่ 6D) ซึ่งอยู่นอกช่วงคะแนนที่กำหนดโดยการทดลองเล็กน้อยสำหรับโปรตีนที่มีขนาดใกล้เคียงกัน อย่างไรก็ตาม การวิเคราะห์ ERRAT แสดงปัจจัยคุณภาพโดยรวมที่ 70.94 สำหรับ MTBV8 ที่ปรับปรุงแล้ว เนื่องจากคะแนน ERRAT มากกว่า 50 แสดงถึงแบบจำลองที่มีคุณภาพดี [117] คะแนน 70.94 บ่งชี้ว่าเรามีความมั่นใจสูงในโครงสร้างแบบจำลองสำหรับการวิเคราะห์ในภายหลัง
3.7. การเชื่อมต่อระดับโมเลกุลของ MTBV8 กับตัวรับเซลล์ภูมิคุ้มกัน
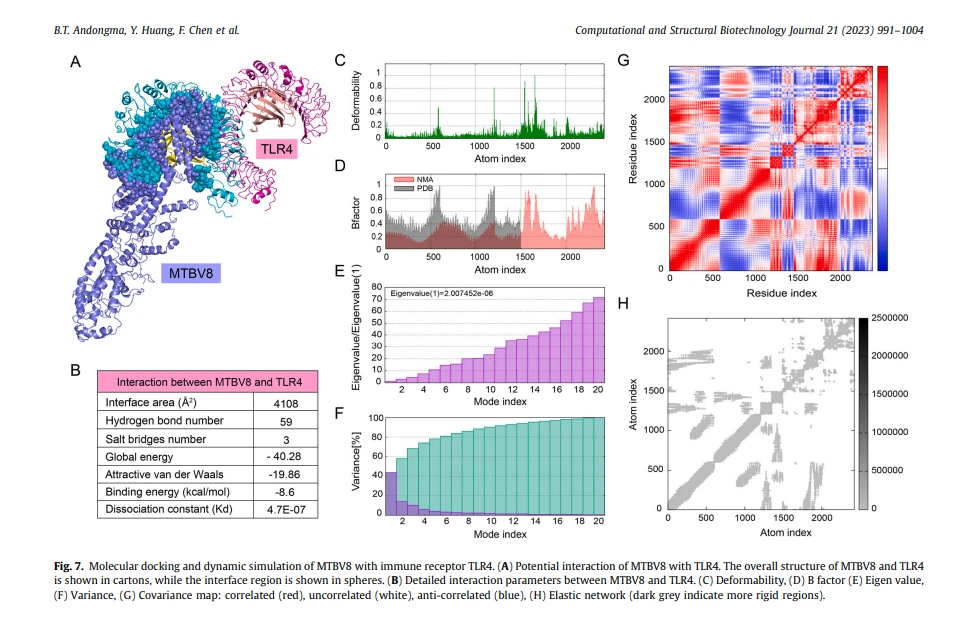
ความสัมพันธ์ที่แน่นแฟ้นของวัคซีนกับตัวรับเซลล์ภูมิคุ้มกันทำให้เกิดการตอบสนองทางภูมิคุ้มกันที่คงที่ [118] เพื่อให้เข้าใจถึงปฏิสัมพันธ์ที่เป็นไปได้ระหว่าง MTBV8 และตัวรับเซลล์ภูมิคุ้มกัน เราได้ทำการเชื่อมต่อระดับโมเลกุลระหว่าง MTBV8 และตัวรับภูมิคุ้มกัน TLR4 (รูปที่ 7A และ B) การศึกษาก่อนหน้านี้แสดงให้เห็นว่าลิแกนด์ TLR4 สามารถเปิดใช้งาน DCs ซึ่งจะกระตุ้นทีเซลล์ไร้เดียงสา โพลาไรซ์ทีเซลล์อย่างมีประสิทธิภาพ (เซลล์ CD4 บวกและเซลล์ CD8 บวก) เพื่อหลั่ง IFN- และกระตุ้นความเป็นพิษต่อเซลล์ที่พึ่งเซลล์ T เซลล์ [106] กระบวนการเหล่านี้จะนำไปสู่การเพิ่มจำนวนของเซลล์หน่วยความจำเอฟเฟกต์ [119] เนื่องจากการทำงานร่วมกันของ TLR4 กับแอนติเจนเปปไทด์นำไปสู่การตอบสนองต่อการติดเชื้อวัณโรค เราจึงมุ่งเน้นไปที่ปฏิสัมพันธ์ระหว่าง MTBV8 และ TLR4 (รูปที่ 7A) ผลการเทียบท่าระดับโมเลกุลจาก Firedock แสดงให้เห็นว่าแบบจำลองที่ได้รับการปรับปรุงแล้วที่ได้รับความนิยมมากที่สุดมีพลังงานทั่วโลกเท่ากับ −40.28, พลังงานแวนเดอร์วาลส์ที่น่าสนใจ (aVdW) ที่ −19.86, พลังงานขับไล่ (สีแดง) ที่ 2.19, พลังงานสัมผัสปรมาณู เท่ากับ 4.70 และพันธะไฮโดรเจน (HB) เท่ากับ −1.03 (รูปที่ 7B) นอกจากนี้ Prodigy ยังทำนายพลังงานยึดเหนี่ยวระหว่าง TLR4 และ MTBV8 ที่ −8.6 กิโลแคลอรี/โมล ผลลัพธ์ข้างต้นบ่งชี้ว่า MTBV8 มีความสัมพันธ์อย่างมากกับ TLR4 ทำให้สามารถสร้างการตอบสนองทางภูมิคุ้มกันที่เสถียรได้

3.8. การจำลองพลวัตของโมเลกุล
การจำลองไดนามิกของโมเลกุลถูกนำมาใช้เพื่อวิเคราะห์การเคลื่อนที่ของอะตอมในวัคซีน [120] ความสามารถในการเปลี่ยนรูปของสายโซ่หลักเผยให้เห็นถึงขอบเขตที่โมเลกุลสามารถเปลี่ยนรูปได้ที่สารตกค้างที่เป็นส่วนประกอบแต่ละชนิด บริเวณที่มีการเสียรูปสูงระบุตำแหน่งของโซ่ "บานพับ" (รูปที่ 7C) และปัจจัย B ทดลองได้มาจากธนาคารข้อมูล PDB ที่สอดคล้องกัน ในขณะที่การคำนวณดำเนินการโดยการคูณการเคลื่อนที่ของ NMA ด้วย 8pi^2 (รูปที่ 7D ). ค่าลักษณะเฉพาะที่กำหนดให้กับโหมดปกติแต่ละโหมดเป็นการวัดความฝืดของการเคลื่อนไหว ซึ่งสัมพันธ์โดยตรงกับพลังงานการเสียรูปของโครงสร้างทั้งหมด ค่าลักษณะเฉพาะเป็นสัดส่วนโดยตรงกับความง่ายในการเปลี่ยนรูป (รูปที่ 7E) ความแปรปรวนของโหมดปกติแต่ละโหมดจะแปรผกผันกับค่าลักษณะเฉพาะ ความแปรปรวนแต่ละรายการจะแสดงเป็นสีน้ำตาลในขณะที่ความแปรปรวนสะสมจะแสดงเป็นสีเขียว) (รูปที่ 7F) ในเมทริกซ์ความแปรปรวนร่วม มีการมีเพศสัมพันธ์ระหว่างคู่ของสิ่งตกค้าง และแสดงการเคลื่อนไหวที่สัมพันธ์กัน (สีแดง) ไม่สัมพันธ์กัน (สีขาว) และต่อต้านความสัมพันธ์ (สีน้ำเงิน) (รูปที่ 7G) เครือข่ายความยืดหยุ่นเป็นตัวแทนของคู่ของอะตอมที่เชื่อมต่อกันด้วยสปริง และแต่ละจุดแทนสปริงระหว่างคู่ของอะตอมที่สอดคล้องกัน สีของจุดบ่งบอกถึงความแข็ง จุดสีเทาเข้มแสดงถึงสปริงที่แข็งขึ้นและในทางกลับกัน (รูปที่ 7H) การจำลองไดนามิกระดับโมเลกุลโดยใช้เซิร์ฟเวอร์ iMODS แนะนำว่าด็อกกิ้งคอมเพล็กซ์ระหว่าง MTBV8 และ TLR4 นั้นเสถียร
3.9. ในการเพิ่มประสิทธิภาพ silico และการโคลนของ MTBV8
การสังเคราะห์โปรตีนเป็นสิ่งที่จำเป็นสำหรับกิจกรรมของมัน [121] เพื่อให้สอดคล้องกับสิ่งนี้ ประสิทธิภาพการถอดความและการแปลที่เพิ่มขึ้นของวัคซีนมีความจำเป็นสำหรับการแสดงออกที่มากเกินไปในเซลล์ E. coli ผ่านทางพลาสมิด pET28a พลาสมิดที่จำลองตัวเองได้ (บวก ) [103] การปรับให้เหมาะสมนั้นทำได้โดย Codon Adaptation Index (CAI) ที่ 0.99 และเนื้อหา GC (54.81 เปอร์เซ็นต์) ระหว่าง 30 เปอร์เซ็นต์ถึง 70 เปอร์เซ็นต์ ซึ่งโดยทั่วไปถือว่าดีสำหรับการแสดงออกของโปรตีนในโฮสต์ ชิ้นส่วน DNA ของ mtbv8 สามารถโคลนเป็นเวกเตอร์ pET-28a( plus ) ระหว่างไซต์จำกัด NcoI และ XhoI โดยใช้ SnapGene เพื่อสร้าง pET-28a ( plus )-mtbv8 recombinant plasmid (รูปที่เสริม .3).
4. การอภิปราย
4.1. การเกิดขึ้นของวัคซีนหลายอีพิโทปเพื่อต่อต้านวัณโรค
การฉีดวัคซีนเป็นวิธีที่น่าเชื่อถือที่สุดในการต่อสู้กับการติดเชื้อวัณโรค เป็นเวลาหลายปีที่นักวิทยาศาสตร์ได้ระบุวัคซีนที่มีความเป็นไปได้จำนวนมากที่สามารถแทนที่ BCG ซึ่งเป็นวัคซีนป้องกันวัณโรคเพียงชนิดเดียวที่ได้รับการอนุมัติ [8100,122–125] เมื่อเร็ว ๆ นี้ วัคซีนป้องกันวัณโรคชนิดรีคอมบิแนนท์ได้รับความสนใจเพิ่มขึ้น วัคซีนรีคอมบิแนนท์หลายตัวได้แสดงให้เห็นถึงประสิทธิภาพในการทดลองทางคลินิกและพรีคลินิก รวมถึง ID93/GLA-SE ซึ่งประกอบด้วยวัคซีนตัวเลือก 4 ชนิด ได้แก่ Rv2608 (กลุ่ม PE/PPE), Rv1813 (แสดงออกภายใต้ความเครียด/ภาวะขาดออกซิเจน), ESXV และ ESXW ซึ่งมีแนวโน้มว่าจะประสบความสำเร็จใน การทดลองก่อนการทดลองทางคลินิกของหนู [122] สำหรับการทดลองทางคลินิก GamTBvac ที่ได้จากการหลอมรวม Ag85a และ ESAT6-CFP10 ประสบความสำเร็จในการทดลองระยะที่ 1 [125] ในขณะที่ M72 ซึ่งประกอบด้วยผู้สมัคร 2 คน [Mtb39A (PPE18) และ Mtb32A] ให้ศักยภาพที่สำคัญในเฟส การทดลองครั้งที่สอง [123].
การทดลองที่ประสบความสำเร็จของวัคซีนรีคอมบิแนนท์เหล่านี้บ่งชี้ถึงศักยภาพที่สูงกว่าของวัคซีนที่มีอีพิโทปเป็นพื้นฐาน ซึ่งเพียงแค่รวมเอาคุณสมบัติทางภูมิคุ้มกันของโปรตีนที่เป็นตัวเลือกต่างๆ เข้าไว้ในโปรตีนสังเคราะห์ [124] โดยเฉพาะอย่างยิ่ง วัคซีน TB subunit หลายตัวได้มาจากตัวเลือกวัคซีนจำนวนมาก และกลายเป็นตัวเลือกที่น่าสนใจในการศึกษาแบบจำลองสัตว์ [100] ตัวอย่างเช่น MP3RT ซึ่งเป็นวัคซีนป้องกันวัณโรคชนิด multiepitope peptide ซึ่งประกอบด้วยเปปไทด์ HTL ที่สร้างภูมิคุ้มกัน 6 ชนิด เหนี่ยวนำระดับ IFN- และ CD3 บวก IFN- บวก T ลิมโฟไซต์และหน่วยสร้างโคโลนีล่าง (CFU) ในปอดและม้ามของหนูเมาส์ที่ทำให้มีลักษณะของมนุษย์สูงขึ้นอย่างมีนัยสำคัญ หนูป่า [8]. จากนี้ไป การวิจัยเพื่อศักยภาพที่สูงขึ้นของวัคซีนเหล่านี้ได้นำไปสู่การเสริมศักยภาพของผู้สมัครที่เป็นโปรตีน
นอกจากนี้ โปรตีนที่หลั่งออกมาจาก M. tuberculosis ยังได้รับการพิจารณาในการออกแบบ MTBV8 (ตารางที่ 1) เนื่องจากโปรตีนเหล่านี้มีความสำคัญต่อการเกิดโรคและความรุนแรงของเชื้อวัณโรค [126] นอกจากนี้โปรตีนที่หลั่งออกมาจากชั้นนอกของเซลล์ M. tuberculosis สามารถทำหน้าที่เป็นแอนติเจนที่มีประโยชน์ ตัวอย่างเช่น EsxA และ EsxB ได้รับการทำให้บริสุทธิ์จากแคปซูลของ M. tuberculosis [127] และการเก็บ EsxA ไว้ในแคปซูลนั้นเกี่ยวข้องกับความเป็นพิษต่อเซลล์ [128] นอกจากนี้ EsxA ยังจำเป็นสำหรับความสมบูรณ์ของผนังเซลล์แบคทีเรีย [129] โดยรวมแล้ว โปรตีนที่หลั่งออกมามีพื้นผิวที่สัมผัสเพียงพอ ซึ่งเป็นเป้าหมายของการตอบสนองทางภูมิคุ้มกันของโฮสต์ [130,131]
4.2. ศักยภาพในการกระตุ้นระบบภูมิคุ้มกันโดยธรรมชาติโดย MTBV8
การตรวจหา epitope ในโปรตีนของผู้สมัครนั้นเกี่ยวข้องกับการกระตุ้นระบบภูมิคุ้มกันโดยธรรมชาติ ตามด้วยการจดจำแอนติเจนโดยเซลล์เม็ดเลือดขาว เนื่องจากทั้งสองปัจจัยจำเป็นสำหรับการกระตุ้นระบบภูมิคุ้มกันแบบปรับตัวในภายหลัง [50] สำหรับการตอบสนองโดยกำเนิด การก่อตัวของคอมเพล็กซ์ที่เสถียรระหว่าง MTBV8 (ได้รับความช่วยเหลือจากตัวกระตุ้น TLR4 HBHA เป็นตัวเสริม) และ TLR4 ของ DCs (รูปที่ 5F) มีความสำคัญเนื่องจากลิแกนด์ TLR4 สามารถเปิดใช้งาน DC และ DC ที่เปิดใช้งานสามารถเปิดใช้งานได้ ทีเซลล์ไร้เดียงสา โพลาไรซ์เซลล์ CD4 บวกและ CD8 บวกทีอย่างมีประสิทธิภาพเพื่อหลั่ง IFN- และกระตุ้นความเป็นพิษต่อเซลล์ที่อาศัยทีเซลล์ [106] และเพิ่มพูลของเซลล์หน่วยความจำเอฟเฟกเตอร์ในเวลาต่อมา [119]
คอมเพล็กซ์นี้มีส่วนทำให้จำนวนเซลล์หน่วยความจำ (y2) เพิ่มขึ้นในเซลล์เม็ดเลือดขาว B (รูปที่ 1A เสริม) และเซลล์เม็ดเลือดขาว Th (รูปที่ 1C เสริม) เมื่อเปรียบเทียบกับเซลล์ที่ไม่ใช่หน่วยความจำ การกระตุ้นภูมิคุ้มกันโดย MTBV8 เทียบได้กับที่ได้รับจากวัคซีนหลายเชื้อเพื่อต่อต้านวัณโรค [33,37,39] และโรคอื่น ๆ [27,62,107,124,132] สิ่งนี้บ่งบอกถึงความสอดคล้องของกลไกของวัคซีนหลายอีพิโทป
4.3. ศักยภาพในการกระตุ้นระบบภูมิคุ้มกันแบบปรับตัวโดย MTBV8
เซลล์เม็ดเลือดขาว B และ T เป็นเซลล์เอฟเฟกเตอร์หลักที่ประสานงานการตอบสนองของภูมิคุ้มกันแบบปรับตัวผ่านภูมิคุ้มกันของร่างกายหรือภูมิคุ้มกันที่อาศัยเซลล์โดยการจดจำส่วนของเชื้อโรคที่บุกรุกซึ่งเรียกว่าแอนติเจน [50] เพื่อกระตุ้นการตอบสนองของระบบภูมิคุ้มกันแบบปรับตัวของร่างกาย เราได้รวมเอา epitopes B-cell ที่มีคะแนนสูง (ตารางที่ 2) สำหรับการจดจำและการทำลายโดยแอนติบอดีที่แสดงออกและหลั่งโดยเซลล์เม็ดเลือดขาว B [50,133] การกระตุ้นด้วยวัคซีนของเซลล์เม็ดเลือดขาว B ที่ใช้งานอยู่ (รูปที่ 5B) ซึ่งส่วนใหญ่เป็น IgM- และ IgG1-ที่หลั่งเซลล์ B (รูปที่ 1A เพิ่มเติม) อาจส่งผลให้เกิดการหลั่ง IgM และ IgG1 มากเกินไป (รูปที่ 5A)
แอนติเจนสูงของวัคซีน (รูปที่ 4) อาจมีนัยสำคัญสำหรับการเพิ่มการตอบสนองของแอนติบอดี (รูปที่ 5A) แท้จริงแล้ว การตอบสนองทางภูมิคุ้มกันของเซลล์ขึ้นอยู่กับความสามารถของทีเซลล์ในการจดจำแอนติเจน [134] เพื่อให้บรรลุเป้าหมายนี้ เราได้เลือก epitopes ของ CTL และ HTL ที่จับกับแอนติเจนและ MHC ที่แข็งแกร่ง (ตารางที่ 2) ซึ่งปรับปรุงเปปไทด์: ความเสถียรของ MHC คอมเพล็กซ์ (pMHC) ซึ่งเป็นปัจจัยสำคัญที่ควบคุมการสร้างภูมิคุ้มกันของเปปไทด์ MHC [135] และมีบทบาทใน การเตรียมเซลล์ CD8 plus และ CD4 plus T โดย DCs ซึ่งนำไปสู่การตอบสนองของ T lymphocyte (รูปที่ 5C, รูปที่ 1C เพิ่มเติม) [136]
การรวมตัวกันของตัวเชื่อมโยงที่เหมาะสมและโอลิโกเปปไทด์สังเคราะห์ (PADRE และ HEYGAEALERAG) และการวางตำแหน่งที่แม่นยำของแต่ละองค์ประกอบสามารถอำนวยความสะดวกในการประมวลผลและการนำเสนออีพิโทป (รูปที่ 3) เนื่องจากความแปรปรวนของอัลลีลในมนุษย์ เราจึงเลือก epitopes ของ CTL ตามการรับรู้ของอัลลีล MHC-I ของเผ่าพันธุ์มนุษย์ที่สำคัญในตารางเสริมที่ 1 (ตารางที่ 2) และ epitopes HTL ที่สำส่อนได้รับการคัดเลือกหลังจากการคัดกรองคุณสมบัติที่กระตุ้น IFN และแอนติเจน
4.4. โอกาสในการพัฒนาของ MTBV8
ในการออกแบบวัคซีนซิลิโกนี้เป็นตัวบ่งชี้ที่เกี่ยวข้องในขั้นตอนการคัดกรองในแง่ของการสังเคราะห์และประสิทธิภาพของวัคซีนตัวเลือก สำหรับการสังเคราะห์ การคาดการณ์ของเราเปิดเผยว่าสามารถสังเคราะห์ได้ในระบบ E. coli อย่างไรก็ตาม ระบบอื่นๆ เช่น แมลงและเซลล์ของสัตว์เลี้ยงลูกด้วยนมก็อาจได้รับการพิจารณาเช่นกันหากระบบที่มี E. coli มีปัญหา การตรวจสอบในห้องปฏิบัติการแบบเปียกเป็นขั้นตอนต่อไปในการยืนยันผู้สมัครรับวัคซีนหลังจากการศึกษาในซิลิโก วิธีนี้ถูกนำมาใช้อย่างได้ผลในวัคซีนทดลองบางตัว ซึ่งได้รับการออกแบบครั้งแรกในซิลิโก และต่อมาได้รับการพิสูจน์ว่าได้ผลในระยะทดลอง [137]
5. สรุป
การสนับสนุนที่สำคัญของเป้าหมายการพัฒนาที่ยั่งยืนขององค์การอนามัยโลกในการกำจัดวัณโรคอย่างสมบูรณ์คือการเข้าถึงวัคซีนที่มีศักยภาพเพื่อป้องกันการติดเชื้อ M. tuberculosis การศึกษาก่อนหน้านี้แสดงให้เห็นว่าวัคซีน chimeric multi-epitope สามารถใช้ประโยชน์จากคุณสมบัติภูมิคุ้มกัน/แอนติเจนของโปรตีนบางชนิดเพื่อเพิ่มประสิทธิภาพภูมิคุ้มกัน ในการศึกษานี้ เราใช้วิธี in silico ในการออกแบบวัคซีน chimeric (MTBV8) โดยการรวม epitopes สำส่อน 41 ชนิดที่ได้จากโปรตีนแอนติเจนแปดชนิดที่หลั่งโดย M. tuberculosis H37Rv มีการทำนายว่า MTBV8 จะเสถียร ละลายได้ ปลอดภัย แอนติเจนสูง และภูมิคุ้มกัน
การวิเคราะห์ข้อมูลทางภูมิคุ้มกันแสดงให้เห็นว่า MTBV8 แสดงความสัมพันธ์ที่ดีกับตัวรับเซลล์ภูมิคุ้มกันหลัก TLR4 ที่สำคัญ การกระตุ้นด้วยวัคซีนของ MTBV8 สามารถเพิ่มระดับของ B เซลล์, T เซลล์ และจำนวนเซลล์ภูมิคุ้มกันโดยกำเนิดได้อย่างมีนัยสำคัญ และกระตุ้นการผลิตอิมมูโนโกลบูลิน (IgG1, IgM ฯลฯ) รวมทั้งปัจจัยภูมิคุ้มกัน (IFN-, IL{{6 }} ฯลฯ) เมื่อนำมารวมกัน วัคซีน MTBV8 แบบหลายอีพิโทปเป็นตัวบ่งชี้ที่เกี่ยวข้องในขั้นตอนการออกแบบวัคซีนต้านวัณโรค และอาจกลายเป็นรากฐานที่สำคัญในการทำให้ 'กลยุทธ์ยุติวัณโรค' เป็นจริง
คำชี้แจงผลงานผู้เขียนเครดิต
Binda T. Andongma: การสร้างแนวคิด วิธีการ ซอฟต์แวร์ การเขียน – ร่างต้นฉบับ Yazheng Huang: การจัดการข้อมูล ซอฟต์แวร์ Fang Chen: ซอฟต์แวร์ การสร้างภาพ Qing Tang: การจัดการข้อมูล, การวิเคราะห์อย่างเป็นทางการ Min Yang: ซอฟต์แวร์, การสร้างภาพ. Shan-Ho Chou: การเขียน – ตรวจสอบและแก้ไข. Xinfeng Li: การสร้างแนวคิด วิธีการ ซอฟต์แวร์ การจัดหาเงินทุน Jin He: การกำกับดูแล, การเขียน – ตรวจสอบและแก้ไข, การได้มาซึ่งเงินทุน
การประกาศความสนใจในการแข่งขัน
ผู้เขียนประกาศว่าพวกเขาไม่มีผลประโยชน์ทางการเงินที่แข่งขันกันหรือความสัมพันธ์ส่วนตัวที่อาจดูเหมือนจะมีอิทธิพลต่องานที่รายงานในบทความนี้

กิตติกรรมประกาศ
งานนี้ได้รับการสนับสนุนโดย National Natural Science Foundation of China (32200026, 31900057) กองทุนเปิดของ State Key Laboratory of Agricultural Microbiology (AMLKF202108) และ China Postdoctoral Science Foundation (2019M662654)
ภาคผนวก ก. ข้อมูลสนับสนุน
ดูข้อมูลเพิ่มเติมที่เกี่ยวข้องกับบทความนี้ได้ในเวอร์ชันออนไลน์ที่ doi:10.1016/j.csbj.2023.01.019
อ้างอิง
[1] Boineau R, Domanski M, Troutman C, Anderson J, Johnson G, Mcnulty SE, Clappchanning N, Davidson-ray LD, Fraulo ES, Fishbein DP และอื่นๆ Amiodarone หรือเครื่องกระตุ้นหัวใจด้วยไฟฟ้าแบบฝังสำหรับภาวะหัวใจล้มเหลว ใหม่ Engl J Med 2005;352(3):225–37.
[2] Khoshnood S, Heidary M, Haeili M, Drancourt M, Darban-sarokhalil D, Nasiri MJ, Lohrasbi V. ผู้ที่ได้รับวัคซีนป้องกันเชื้อวัณโรค Int J Biol Macromol 2018;120(Pt A):180–8.
[3] Kyu HH, Maddison ER, Henry NJ, Ledesma JR, Wiens KE, Reiner R และอื่นๆ ภาระของวัณโรคในระดับโลก ระดับภูมิภาค และระดับชาติ 1990-2016: ผลจากการศึกษาภาระโรค การบาดเจ็บ และปัจจัยเสี่ยงทั่วโลกในปี 2559 Lancet Infect Dis 2018;18(12):1329–49.
[4] องค์การอนามัยโลก (2565). รายงานวัณโรคทั่วโลก 〈https://www. WHO. int/publications/i/item/9789240061729〉
[5] Mirzayev F, Viney K, Linh NN, Gonzalez-Angulo L, Gegia M, Jaramillo E, Zignol M, Kasaeva T. คำแนะนำขององค์การอนามัยโลกเกี่ยวกับการรักษาวัณโรคดื้อยา อัปเดตปี 2020 Eur Respir J 2021;57(6):2003300.
[6] Ahmad Khan F, Fox G, Menzies D. วัณโรคดื้อยา นิวยอร์ก: คู่มือสปริงเกอร์ดื้อยาต้านจุลชีพ; 2560 น. 263–86.
[7] Mitchison D, Davies G. เคมีบำบัดของวัณโรค: อดีต ปัจจุบัน และอนาคต Int J Tube โรคปอด 2012;16(6):724–32.
[8] Gong W, Liang Y, Mi J, Jia Z, Xue Y, Wang J, Wang L, Zhou Y, Sun S, Wu X วัคซีน MP3RT ที่มีเปปไทด์เป็นพื้นฐานทำให้เกิดภูมิคุ้มกันป้องกันการติดเชื้อ Mycobacterium tuberculosis ในรูปแบบเมาส์มนุษย์ . อิมมูนอลแนวหน้า 2021;12:1–19.
[9] Lange C, Aaby P, Behr MA, Donald PR, Kaufmann SHE, Netea MG, Mandalakas AM 100 ปีของ Mycobacterium bovis bacille Calmette-Guérin Lancet Infect Dis 2022;22(1):e2–12.
[10] Glaziou P, Floyd K, Raviglione MC ระบาดวิทยาทั่วโลกของวัณโรค Semin Respir Crit Care Med 2018;39(3):271–85.
[11] เอิร์นส์ เจดี. กลไกการหลีกเลี่ยงภูมิคุ้มกันของ M. tuberculosis เป็นความท้าทายในการออกแบบวัคซีนป้องกันวัณโรค Cell Host Microbe 2018;24(1):34–42.
[12] Li X, Chen F, Liu X, Xiao J, Andongma BT, Tang Q, Cao X, Chou SH, Galperin MY, He J. Clp protease และ antisense RNA ร่วมกันควบคุมตัวควบคุมระดับโลก CarD เพื่อไกล่เกลี่ยการตอบสนองความอดอยากของเชื้อมัยโคแบคทีเรีย อีไลฟ์ 2022;11:1–22.
[13] Liu CH, Liu H, Ge B. ภูมิคุ้มกันโดยธรรมชาติในวัณโรค: การป้องกันโฮสต์และการหลีกเลี่ยงเชื้อโรค Cell Mol Immunol 2017;14(12):963–75.
[14] Elvang T, Christensen JP, Billeskov R, Hoang TTKT, Holst P, Thomsen AR, Andersen P, Dietrich J. CD4 และ CD8 T เซลล์ตอบสนองต่อ M. tuberculosis Ag85B-TB10.4 ที่ส่งเสริมโดย adjuvanted subunit, adenovector หรือการฉีดวัคซีนเสริมภูมิคุ้มกันแบบ heterologous กรุณาหนึ่ง 2009;4(4):e5139.
[15] Rossjohn J, Gras S, Miles JJ, Turner SJ, Godfrey DI, McCluskey J. T การรับรู้ตัวรับแอนติเจนของเซลล์ของโมเลกุลที่สร้างแอนติเจน อันนู เรฟ อิมมูนอล 2015;33:169–200.
For more information:1950477648nn@gmail.com