การตอบสนองทางภูมิคุ้มกันในโควิด-19: อะไรต่อไป?
Sep 12, 2023
โรคติดเชื้อไวรัสโคโรนา 2019 (โควิด-19) เป็นโรคระบาดใหญ่ไปทั่วโลกมานานกว่า 2 ปีแล้ว และยังคงส่งผลกระทบต่อวิถีชีวิตและคุณภาพในแต่ละวันของเราในรูปแบบที่ไม่เคยเกิดขึ้นมาก่อน จำเป็นต้องมีความเข้าใจที่ดีขึ้นเกี่ยวกับภูมิคุ้มกันและกฎระเบียบในการตอบสนองต่อการติดเชื้อ SARS-CoV-2 อย่างเร่งด่วน จากวรรณกรรมในปัจจุบัน เราตรวจสอบการกลายพันธุ์ของไวรัสต่างๆ และอาการของโรคที่กำลังพัฒนาที่นี่ พร้อมกับการเปลี่ยนแปลงของการตอบสนองของภูมิคุ้มกันโดยเน้นไปที่การตอบสนองของภูมิคุ้มกันโดยธรรมชาติ กับดักนิวโทรฟิลนอกเซลล์ ภูมิคุ้มกันของร่างกาย และภูมิคุ้มกันของเซลล์ วัคซีนประเภทต่างๆ ได้รับการเปรียบเทียบและวิเคราะห์ตามคุณสมบัติเฉพาะเพื่อกระตุ้นภูมิคุ้มกันจำเพาะ มีการอภิปรายถึงกลยุทธ์การรักษาต่างๆ เช่น แอนติบอดี ยาต้านไวรัส และการควบคุมการอักเสบ เราคาดการณ์ว่าด้วยเทคโนโลยีใหม่ที่มีอยู่และเกิดขึ้นอย่างต่อเนื่อง วัคซีนที่มีประสิทธิภาพมากขึ้น และกำหนดการบริหารยา ยาที่มีประสิทธิภาพมากขึ้น และมาตรการด้านสาธารณสุขที่ดีขึ้น การระบาดใหญ่ของโควิด-19 จะถูกควบคุมได้ในไม่ช้า

ประโยชน์ของอาหารเสริม Cistanche-วิธีเสริมสร้างระบบภูมิคุ้มกัน
ข้อเท็จจริง
1. การตอบสนองทางภูมิคุ้มกันที่เกี่ยวข้องกับการติดเชื้อ SARS-CoV-2 เป็นส่วนสำคัญของการเกิดโรคของ COVID-19
2. ระบบภูมิคุ้มกันโดยกำเนิดจะรับรู้ RNA ของไวรัสผ่าน TLR3, TLR7 และ RIG-1 และกระตุ้นการตอบสนองของระบบภูมิคุ้มกันโดยธรรมชาติมากเกินไป
3. การก่อตัวของกับดักนิวโทรฟิลนอกเซลล์ (NET) ที่ไม่ได้รับการควบคุมทำให้เกิดภาวะภูมิคุ้มกันบกพร่องและทำให้การอักเสบในปอดของผู้ป่วยโรคโควิดรุนแรงขึ้น-19
4. ภาวะเม็ดเลือดขาวลิมโฟไซโตพีเนียที่เกิดจากการตายของเซลล์และการก่อตัวของซินไซเทียส่งเสริมการลุกลามของโควิด-19 5. วัคซีน SARS-CoV-2 มักไม่สามารถป้องกันการติดเชื้อได้ แต่ให้ภูมิคุ้มกันเพื่อลดความรุนแรงของโรค
เปิดคำถาม
1. จะทราบความสำคัญของ CD8+ ทีเซลล์ในภูมิคุ้มกันต่อ SARS-CoV-2 ได้อย่างไร
2. การระบาดใหญ่ของโควิด-19 จะจบลงอย่างไร โควิด-19 จะกลายเป็นโรคประจำถิ่นหรือไม่
3. ตัวแปร Omicron จะมีวิวัฒนาการอย่างไร ตัวแปรต่อไปจะมีคุณสมบัติภูมิคุ้มกันอะไรบ้าง?
4. ภูมิคุ้มกันหมู่ที่สร้างขึ้นจากการฉีดวัคซีนและการติดเชื้อตามธรรมชาติจะยุติการแพร่เชื้อไวรัส SARS-CoV-2 หรือไม่
โรคติดเชื้อที่เกิดจากโรคระบาดได้สร้างความหายนะให้กับสังคมมนุษย์หลายครั้ง รวมถึงช่วงเวลาของ "โรคระบาดแห่งเอเธนส์" (ผู้เสียชีวิตมากกว่า 100 ราย,000 รายใน 430 ปีก่อนคริสตกาล), เยอร์ซิเนีย เพสติส (ผู้เสียชีวิต 50 ล้านคนในปี 1340) หรือ "ไข้หวัดใหญ่สเปน " (เสียชีวิต 50 ล้านคนในปี พ.ศ. 2461) นอกจากนี้ยังรวมถึงโรคไวรัสหลายชนิด เช่น เอชไอวี (ผู้เสียชีวิต 40 ล้านคนในปี 1980–2000), H1N1 "ไข้หวัดสุกร" (เสียชีวิต 300,000 รายในปี 2552) ไข้เหลือง ซิกา อีโบลา โรคซาร์ส เมอร์ส และไวรัสโคโรนาในปัจจุบัน โรค 2019 (โควิด-19) ที่เกิดจากโรคทางเดินหายใจเฉียบพลันรุนแรง CoronaVirus 2 (SARS-CoV-2) อย่างไรก็ตาม เวลาผ่านไปกว่าสองปีแล้วนับตั้งแต่การปรากฏตัวครั้งแรกของโควิด-19 และวิถีชีวิต กิจกรรมทางเศรษฐกิจ และพฤติกรรมทางสังคมของโลกของเรายังคงได้รับผลกระทบจากโรคระบาดนี้ [1] ด้วยจำนวนผู้ป่วยโรคโควิดที่ได้รับการยืนยันแล้ว-19 มากกว่า 500 ล้านราย (มากกว่า 6% ของประชากรโลก) และมีผู้เสียชีวิตประมาณ 6.5 ล้านรายทั่วโลก ไวรัสที่ก่อให้เกิดโรค SARS-CoV-2 [2–6] แสดงให้เห็นการขยายตัวอย่างรวดเร็ว ลำดับวงศ์ตระกูลที่รับประกันการจำแนกประเภทอย่างน้อย 13 สายพันธุ์และดูเหมือนว่าจะเป็นโรคเฉพาะถิ่น โดยมีการกลายพันธุ์ที่ปลาย N และบริเวณที่มีผลผูกพันกับตัวรับ รวมถึง p.Glu484Lys ที่พบในสายพันธุ์ที่อันตรายที่สุด [7] รูปที่ 1 สายพันธุ์ ที่น่ากังวล (VoC) ได้แก่ Alpha, Beta (B.1.351), Gamma (P.1), Delta (B.1.617.2) และ Omicron (B.1.1.529) โดย Delta และ Omicron เป็นกลุ่มที่น่าตกใจที่สุด อัน [8]. น่าเศร้าที่ตัวแปรใหม่ที่มีเดลต้าแบ็คโบนและสไปค์โอไมครอนได้เกิดขึ้นแล้ว [9] มีความก้าวหน้าอย่างมากในการควบคุมการแพร่ระบาดของโควิด-19 อย่างไรก็ตาม ความพยายามส่วนใหญ่ยังคงมุ่งเน้นไปที่การลดการติดเชื้อและความรุนแรงของโรคด้วยการฉีดวัคซีน (ฉีดวัคซีนมากกว่า 11 พันล้านโดส) [10–12] ซึ่งในบางครั้งอาจทำให้ ผลข้างเคียง [13] ในระหว่างนี้ ไวรัสมีแนวโน้มที่จะพัฒนาไปสู่รูปแบบที่มีการแพร่เชื้อสูงและอัตราการก่อโรคต่ำ [14] น่าเสียดายที่เกือบจะแน่ใจว่าไวรัสจะมีการกลายพันธุ์ใหม่ อาจมีความสามารถในการก่อโรคสูงกว่า ที่นี่ เราจะตรวจสอบหยินและหยางของภูมิคุ้มกันโดยกำเนิดและภูมิคุ้มกันที่ปรับตัวได้ของการติดเชื้อเฉียบพลันแบบ SARS-CoV-2 และเน้นย้ำคำถามปลายเปิดที่โดดเด่น
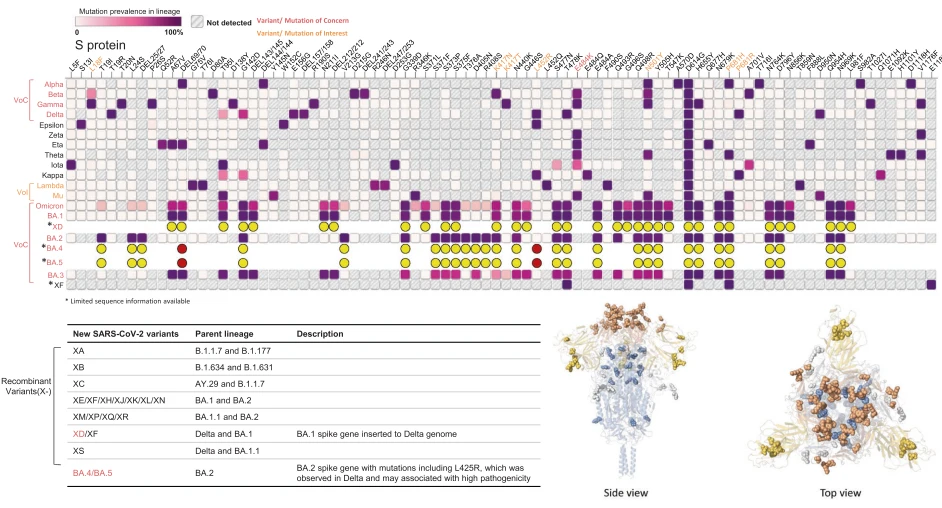
รูปที่ 1 ภาพรวมการกลายพันธุ์ของสไปค์โปรตีนของสายพันธุ์ SARS-CoV-2 ที่เลือก แผงด้านบนแสดงโปรไฟล์การกลายพันธุ์และความชุกของสไปค์โปรตีนในเชื้อ SARS-CoV-2 13 สายพันธุ์ที่ได้รับการระบุชื่อในภาษากรีก และ 7 สายพันธุ์ที่เพิ่งเกิดขึ้นของ SARS-CoV-2 ที่ได้รับความสนใจจากสาธารณชน เชื้อสายต้นกำเนิดของสายพันธุ์ SARS-CoV-2 ใหม่แสดงไว้ในตาราง ภาพด้านล่างแสดงมุมมองด้านข้างและด้านบนของ 3-โครงสร้างมิติสำหรับโปรตีนสไปค์ของโอไมครอนที่มีกรดอะมิโนกลายพันธุ์ที่แมปไว้ [170] หมายเหตุ: การกลายพันธุ์ของการแทรกจะไม่ถูกจัดทำโปรไฟล์
ภายใต้สภาวะการอักเสบและความรุนแรงของการติดเชื้อ
คนส่วนใหญ่ที่ติดเชื้อ SARS-CoV-2 จะมีอาการป่วยระบบทางเดินหายใจเล็กน้อยถึงปานกลาง รวมถึงมีไข้ ไอ หายใจลำบาก ปวดกล้ามเนื้อ ปวดศีรษะ สูญเสียการรับรสและกลิ่น เจ็บคอ คัดจมูก หรือน้ำมูกไหล ในขณะที่บางรายป่วยหนักและต้องได้รับการดูแลจากแพทย์ โดยเฉพาะผู้สูงอายุและผู้ที่มีโรคประจำตัว เช่น โรคหลอดเลือดหัวใจ เบาหวาน โรคระบบทางเดินหายใจเรื้อรัง หรือมะเร็ง [15] เห็นได้ชัดว่าสภาวะการอักเสบตลอดจนสถานะภูมิคุ้มกันของผู้ป่วยมีความสำคัญอย่างยิ่งในการกำหนดแนวทางการลุกลามของโรค [12] ผู้เสียชีวิตในกลุ่มผู้ป่วยโควิด-19 มีความสัมพันธ์กับอายุ [1] อย่างมาก กลุ่มที่อายุ 30 ปีหรือน้อยกว่ามีอัตราการเสียชีวิตน้อยกว่า ในขณะที่กลุ่มที่อายุ 65 ปีขึ้นไปมีอัตราการเสียชีวิตสูงอย่างมาก (Data.CDC.gov) ในประเทศส่วนใหญ่ พบการเสียชีวิตในผู้ชายที่ติดเชื้อมากกว่าผู้หญิงที่ติดเชื้อ [16] อัตราการเสียชีวิตจากโรคโควิด-19 ที่สูงขึ้นยังพบได้ในผู้สูบบุหรี่ คนอ้วน และผู้ป่วยที่เป็นโรคไตเรื้อรัง โรคหลอดเลือดหัวใจ หรือมะเร็ง [17] การเปลี่ยนแปลงที่ใหญ่ที่สุดของอัตราการเสียชีวิตนั้นสัมพันธ์กับการปรากฏตัวของตัวแปร Omicron เมื่อเร็ว ๆ นี้ ซึ่งสามารถถ่ายทอดได้สูงโดยมีอัตราการเสียชีวิตต่ำกว่า VoC อื่น ๆ [18, 19] แน่นอนว่าการเปลี่ยนแปลงอัตราการเสียชีวิตนี้อาจเนื่องมาจากความสำเร็จของการฉีดวัคซีน มีรายงานว่าในบรรดาผู้ที่ไม่ได้รับการฉีดวัคซีน โดยเฉพาะผู้ที่มีอายุมากกว่า 75 ปี อัตราการเสียชีวิตยังคงมีนัยสำคัญมาก [20] เนื่องจากเป็นสัตว์เลี้ยงลูกด้วยนมที่บินได้ ค้างคาวเป็นแหล่งกักเก็บไวรัสระดับซูเปอร์นักษัตร โดยเฉพาะโคโรนาไวรัส อย่างไรก็ตาม ค้างคาวมีระบบภูมิคุ้มกันที่เป็นเอกลักษณ์ซึ่งมีความสมดุลระหว่างการป้องกันและความทนทานของระบบภูมิคุ้มกัน ซึ่งป้องกันไม่ให้พวกมันพัฒนาการเปลี่ยนแปลงทางพยาธิสภาพหลังการติดเชื้อไวรัส พวกมันได้ปรับปรุงการแสดงออกที่เป็นส่วนประกอบของ Interferons (IFNs), ยีนที่กระตุ้นด้วย interferon และโปรตีนช็อกความร้อนหลายชนิด ในทางกลับกัน ค้างคาวได้ลดตัวกระตุ้นของยีนอินเตอร์เฟอรอน (STING) และยับยั้งโดเมนไพรินของตระกูล NLR ที่มี 3 (NLRP3) ที่ทำให้อักเสบ [21] ตรงกันข้ามกับค้างคาว มนุษย์ไม่สามารถต้านทานการติดเชื้อโคโรนาไวรัสบางชนิดได้อย่างสมบูรณ์ [21] เป็นที่น่าสนใจที่จะทราบว่า การสัมผัสกับ SARS-CoV-2 ต่างจากการติดเชื้อไวรัสอื่นๆ เช่น ไข้ทรพิษ หัด หรือโรคพิษสุนัขบ้า โดยเฉพาะอย่างยิ่งกับตัวแปร Omicron ของบุคคลที่ได้รับวัคซีนหรือหายจากการติดเชื้อครั้งก่อน กับตัวแปรอื่น ๆ อาจส่งผลให้เกิดโรคได้ แต่มีอาการน้อยลงหรือไม่มีอาการเลย [22] การหลีกเลี่ยงระบบภูมิคุ้มกันดังกล่าวทำให้การกำจัดไวรัสทำได้ยากขึ้น ความแปรผันทางพันธุกรรมของไวรัส SARS-CoV-2 ถือเป็นปัจจัยสำคัญที่ทำให้การป้องกันระบบภูมิคุ้มกันไม่สมบูรณ์อย่างแน่นอน งานส่วนใหญ่จนถึงขณะนี้สนับสนุนแนวคิดที่ว่า SARS-CoV-2 ไม่ได้แพร่เชื้อไปยังเม็ดเลือดขาวที่หมุนเวียนอยู่ในเลือด เนื่องจากพวกมันไม่ได้แสดงออกถึงตัวรับ SARS-CoV-2 ซึ่งเป็นเอนไซม์ที่ทำให้เกิดแอนจิโอเทนซิน 2 (ACE2) การศึกษาล่าสุด [23] ชี้ให้เห็นว่าโมโนไซต์ในเลือดมากถึง 6% สามารถติดเชื้อไวรัสได้ อย่างไรก็ตาม จำเป็นต้องมีการยืนยันเพิ่มเติม ปัจจัยที่สำคัญอีกประการหนึ่งคือ IgM และ IgA เฉพาะของ SARSCoV-2 ในเยื่อเมือกสลายตัวอย่างรวดเร็วมาก [24] อาจเป็นไปได้ว่าการวางตัวเป็นกลางของไวรัสสามารถทำได้โดยแอนติบอดีจำเพาะโดเมนการจับตัวรับ (RBD) เท่านั้น และ RBD จะถูกซ่อนไว้โดยการพับโปรตีนจนกว่าจะจับกับ ACE2 [25]

cistanche tubulosa-ปรับปรุงระบบภูมิคุ้มกัน
ภูมิคุ้มกัน
การศึกษาจำนวนมากตลอดสองปีที่ผ่านมาได้สร้างระบบภูมิคุ้มกันโดยธรรมชาติให้เป็นเครื่องป้องกันที่สำคัญต่อโรค SARSCoV-2 ในกรณีที่ดีที่สุด ภูมิคุ้มกันโดยธรรมชาติจะกำจัด SARS-CoV-2 โดยไม่ต้องกระตุ้นระบบภูมิคุ้มกันแบบปรับตัว จึงทำให้เกิดกลุ่มที่เรียกว่า "ไม่เกิดโควิด" แนวคิดนี้ได้รับการสนับสนุนอย่างมากจากการศึกษาความท้าทายเกี่ยวกับ SARS-CoV{6}} ของมนุษย์ที่เพิ่งเปิดตัวเมื่อเร็วๆ นี้ (NCT04865237) ซึ่งอาสาสมัครด้านสุขภาพรุ่นเยาว์ 36 คนได้รับการฉีดเข้าจมูกด้วย 10 TCID50 ของ SARS-CoV-2/ human/GBR/ 484861/2020 (D614G ที่มีไวรัสไวลด์ไทป์พรีอัลฟา หมายเลขภาคยานุวัติของ Genbank OM294022) น่าประหลาดใจที่อาสาสมัคร 16 คน (~44.4%) ยังคงไม่ติดเชื้อจากการสัมผัส SARS-CoV-2 โดยเจตนา โปรตีน C-reactive (CRP), SARS-CoV-2 แอนติบอดีที่ทำให้เป็นกลางและ IgG ที่จำเพาะต่อหนามของพวกมันยังคงเป็นลบ ไม่รวมการมีส่วนร่วมของเซลล์ภูมิคุ้มกันที่ปรับตัวได้ในการป้องกันดังกล่าว [26] อย่างไรก็ตาม สารปกป้องภูมิคุ้มกันโดยกำเนิดยังสามารถเป็นอันตรายได้เมื่อถูกกระตุ้นอย่างไม่เหมาะสมระหว่างการติดเชื้อ SARSCoV-2 [27]
ภูมิคุ้มกันโดยธรรมชาติของเซลล์
หลักฐานทางพันธุกรรมบ่งชี้ว่าภูมิคุ้มกันโดยกำเนิดที่ใช้เซลล์เป็นสื่อกลางมีบทบาทสำคัญในการต้านทานโรคโควิด-19 และในการเกิดโรคที่รุนแรง [28–30] ยีนที่มีบทบาทสำคัญ ได้แก่ คีโมไคน์และตัวรับเชื้อสายของพวกมัน และสมาชิกของวิถี IFN ตัวรับภูมิคุ้มกันระดับเซลล์และโดยธรรมชาติที่จดจำ SARS-CoV-2 อยู่ในประเภทที่แตกต่างกัน [31] ข้อมูลทางพันธุกรรมของเมาส์และมนุษย์พิสูจน์ได้อย่างชัดเจนว่าลำดับ RNA ที่อุดมด้วย GU ได้รับการยอมรับโดย Toll-like receptor 7 (TLR7) ในเซลล์ plasmacytoid dendritic (pDC) และ TLR8 ในเซลล์ DC และเซลล์ myeloid ทั่วไป [32] ตัวรับ TLR เหล่านี้อยู่ในช่องเอนโดโซมและกระตุ้นการผลิต IFN (pDC) การนำเสนอแอนติเจน และการอักเสบที่ไม่สามารถควบคุมได้ในระยะต่อมา สอดคล้องกับข้อมูลเมาส์ ในหลอดทดลอง และ ในสัตว์ทดลอง การขาดยีน TLR7 มีความสัมพันธ์กับโรคร้ายแรง [33] ตัวรับไซโตโซลิกซึ่งรวมถึงยีนที่เหนี่ยวนำให้เกิดกรดเรติโนอิก-1 (RIG-1) ได้รับการแนะนำให้รู้จักกับการรับรู้กรดนิวคลีอิกของ SARS-CoV-2 ด้วย ในที่สุด หลักฐานล่าสุดชี้ให้เห็นว่าเลคตินชนิด C บนพื้นผิวมีปฏิกิริยากับส่วนประกอบไกลโคซิดิกของสไปค์และมีบทบาทสำคัญในการเข้าของไวรัส [34–37] Macrophages ที่ทำให้เกิดการอักเสบเป็นเซลล์ภูมิคุ้มกันชนิดสำคัญที่แสดงระดับ ACE2 ในระดับสูง [38] เมื่อติดเชื้อ SARS-CoV-2 มาโครฟาจเหล่านี้จะปล่อยไซโตไคน์และคีโมไคน์ที่มีการอักเสบ รวมถึง CC motif chemokine ligand 7 (CCL7), CCL8 และ CCL13 เพื่อรับสมัครและกระตุ้นทีเซลล์ ในทางกลับกัน ทีเซลล์จะผลิต IFN- และไซโตไคน์อื่นๆ เพื่อกระตุ้นแมคโครฟาจเพิ่มเติม [39] วงจรตอบรับเชิงบวกนี้ผลักดันการยกระดับและความต่อเนื่องของการอักเสบทางพยาธิวิทยา ข้อมูลทางระบาดวิทยาแสดงให้เห็นว่าผู้สูงอายุและผู้ที่มีภาวะสุขภาพประจำตัวมีอัตราการเจ็บป่วยและเสียชีวิตที่รุนแรงสูงอย่างมาก [17] นอกจากอายุที่มากขึ้นแล้ว ยังมีแนวโน้มที่จะเพิ่มมาโครฟาจอักเสบ [40] สิ่งนี้ไม่เพียงแต่อธิบายว่าทำไมการเกิดโรคอักเสบเรื้อรังจึงแพร่หลายมากขึ้น แต่ยังให้ความเป็นไปได้ที่ทำให้เกิดอุบัติการณ์ของผู้ป่วยโรคโควิดขั้นรุนแรง-19 ในผู้สูงอายุสูงอีกด้วย นอกจากสถานการณ์นี้แล้ว ก็สมเหตุสมผลที่จะเข้าใจว่าเหตุใดการติดเชื้อ SARS-CoV-2 ในผู้ที่มีโรคประจำตัวจึงมีความชุกของโรคร้ายแรงและการเสียชีวิตสูงกว่า [12] การจัดลำดับเซลล์เดี่ยวร่วมกับไซโตเมทรีตามเวลาของการบิน (CyTOF) การจัดลำดับการอ้างอิง หรือไซโตเมทรีแบบหลายสีเป็นข้อมูลที่เป็นประโยชน์อย่างยิ่งในการอธิบายความเบี่ยงเบนของเซลล์ภูมิคุ้มกันโดยธรรมชาติในผู้ป่วยโควิด-19 ในช่วงแรกๆ มีการแสดงให้เห็นว่าแกรนูโลไซต์และมอนอไซต์มีการเปลี่ยนแปลงอย่างมากในผู้ป่วยที่เป็นโรคร้ายแรง ในขณะที่โรคในระดับปานกลางและไม่รุนแรงแสดงให้เห็นโปรแกรมการกระตุ้นเซลล์ที่มีการอักเสบค่อนข้างปกติด้วยการแสดงออกของแอนติเจน-DR ของเม็ดเลือดขาวของมนุษย์ในระดับสูง (HLA-DR) และการแสดงออกของ CD11c 27]. ในโรคโควิดที่ร้ายแรง-19 มอนอไซต์มีลักษณะเฉพาะด้วยการแสดงออกในระดับสูงของความตื่นตระหนกและ CD163 ในขณะที่โมเลกุลเชิงซ้อนเชิงฮิสโตคอมแพตติบิตี (MHC) หลักจะลดลง ภายในช่องนิวโทรฟิล สถานะของเซลล์ที่ชวนให้นึกถึงเซลล์ที่มีลักษณะคล้ายเซลล์ระงับที่ได้มาจากไมอีลอยด์จะสังเกตพบในภาวะโควิดที่รุนแรง-19 และในขณะเดียวกัน โปรแกรมเซลล์ที่จำเป็นสำหรับกับดักนิวโทรฟิลนอกเซลล์ (NET) - การก่อตัวของมีการแสดงออกมากเกินไป นอกจากนี้ การปรากฏตัวของสารตั้งต้นของนิวโทรฟิลในเลือดยังปรากฏชัดสำหรับภาวะไขกระดูกฉุกเฉินในผู้ป่วยที่เป็นโรคโควิดขั้นรุนแรง-19 phagocytes โมโนนิวเคลียร์เป็นพลาสติกมากและมีความหลากหลายและผ่านการกระตุ้นและความทนทานในรูปแบบที่แตกต่างกัน [41, 42] ฟังก์ชั่นของมาโครฟาจมีองค์ประกอบแบบปรับตัวซึ่งเรียกว่า "การฝึก" ภูมิคุ้มกันโดยธรรมชาติที่ได้รับการฝึกอบรมรองรับการป้องกันโดยไม่เชื่อเรื่องเชื้อโรคที่เกี่ยวข้องกับวัคซีน การติดเชื้อ และไซโตไคน์บางประเภท เช่น อินเตอร์ลิวคิน-1 (IL-1) [43] มีหลักฐานว่าภูมิคุ้มกันโดยธรรมชาติที่ได้รับการฝึกอบรมสามารถมีส่วนช่วยในการต้านทานโรคโควิดได้-19 ตัวอย่างเช่น หากมารดาสัมผัสวัคซีนโปลิโอชนิดเป็นเป็นโดยอ้อมเนื่องจากการฉีดวัคซีน จะพบว่าทารกของมารดามีการติดเชื้อโควิดตามอาการลดลง-19 [44] ยังคงต้องให้คำจำกัดความระหว่างความเกี่ยวข้องของภูมิคุ้มกันโดยธรรมชาติที่ได้รับการฝึกอบรมกับโควิด-19 และวัคซีนที่ใช้อยู่ในปัจจุบัน ปัญหาทางคลินิกที่สำคัญของโรคโควิดขั้นรุนแรง-19 คือการพัฒนาของ "กลุ่มอาการหายใจลำบากเฉียบพลัน" (ARDS) ที่เกี่ยวข้องกับการหายใจล้มเหลวเป็นเวลานานและมีอัตราการเสียชีวิตสูง นอกจากนี้ เซลล์ภูมิคุ้มกันโดยกำเนิดในที่นี้เกี่ยวข้องกับปฏิกิริยาทางพยาธิสรีรวิทยาในโรคโควิดที่รุนแรง-19 [45] ในผู้ป่วย ARDS ซีดี163-ซึ่งแสดงออกมาโครฟาจที่ได้มาจากโมโนไซต์ที่ได้รับฟีโนไทป์ของการถอดรหัส profibrotic จะสะสม [45] โปรแกรมโปรไฟโบรติกของปอดมาโครฟาจในโรคโควิด-19 ชวนให้นึกถึงโปรแกรมเซลล์ใหม่ที่ระบุก่อนหน้านี้ในโรคพังผืดในปอดโดยไม่ทราบสาเหตุ น่าประหลาดใจที่การสัมผัสโมโนไซต์ภายนอกร่างกายกับ SARS-CoV-2 กระตุ้นให้เกิดฟีโนไทป์ของ profifibrotic ดังกล่าวอย่างเพียงพอ [45] เซลล์ภูมิคุ้มกันโดยกำเนิดอื่นๆ ก็มีการเปลี่ยนแปลงในโรคโควิดเช่นกัน-19 [46] ตัวอย่างเช่น ในผู้ป่วยโรคโควิด-19 ระดับรุนแรง เซลล์เนเจอร์คิลเลอร์ (NK) แสดงการแสดงออกของยีนที่กระตุ้นด้วย IFN (ISGs) เป็นเวลานาน ในขณะที่ยีนที่เกิดจากปัจจัยเนื้อร้ายของเนื้องอก (TNF) ถูกตรวจพบในโรคที่ไม่รุนแรงและปานกลาง นอกจากนี้ เซลล์ NK ในโรคโควิดขั้นรุนแรง-19 ยังแสดงการทำงานที่บกพร่องต่อเซลล์ที่ติดเชื้อ SARS-CoV-2 และกิจกรรมต่อต้านการเกิดพังผืดที่บกพร่อง [46] การศึกษาอื่นๆ ชี้ให้เห็นว่าการตอบสนองของปัจจัยการเจริญเติบโตที่เปลี่ยนแปลงไม่ทันเวลา (TFG) จำกัดการทำงานของไวรัสของเซลล์ NK ในโรคร้ายแรง [47] น่าประหลาดใจที่เซลล์ที่ได้มาจากเลือดอื่นๆ รวมถึงเมกะคาริโอไซต์และเซลล์เม็ดเลือดแดงมีลักษณะพิเศษด้วยการแสดงออกของ ISG ที่เพิ่มขึ้นในโรคโควิดที่รุนแรงแต่ไม่รุนแรง{-19 ยังสนับสนุนการตอบสนองของ IFN ที่ยืดเยื้อต่อไป ซึ่งเกี่ยวข้องโดยตรงกับความรุนแรงของโรค [48] นอกจากนี้ ดูเหมือนว่า SARS-CoV-2 จะกระตุ้นให้เกิดการทำงานโดยธรรมชาติในส่วนย่อยของทีเซลล์ ซึ่งได้แก่ ทีเซลล์ CD16+ ที่มีการกระตุ้นสูง ซึ่งส่วนใหญ่เกิดขึ้นในโรคโควิดที่รุนแรง-19 ใน CD4 ช่องใส่เซลล์ CD8 และ δ T [49] แสดงให้เห็นว่าการสร้าง C3a ที่เพิ่มขึ้นในภาวะโควิดขั้นรุนแรง{101}} ทำให้เกิดฟีโนไทป์ของทีเซลล์ที่แปลกประหลาดนี้ ในทางหน้าที่แล้ว CD16 ช่วยให้ภูมิคุ้มกันคอมเพล็กซ์เป็นสื่อกลาง T เซลล์รีเซพเตอร์ (TCR) เกิดการเสื่อมสลายอย่างอิสระและความเป็นพิษต่อเซลล์ ซึ่งจนถึงขณะนี้ดูเหมือนว่าจะจำเพาะต่อ SARS-CoV-2
การทำงานเหล่านี้ยังเชื่อมโยงเพิ่มเติมกับการปล่อยเคมีดึงดูดของนิวโทรฟิลและโมโนไซต์ และการบาดเจ็บของเซลล์บุผนังหลอดเลือดขนาดเล็ก ซึ่งส่วนหลังนี้มีหน้าที่รับผิดชอบต่ออาการทางคลินิกที่มีความหลากหลายและหลากหลายที่เกี่ยวข้องกับอวัยวะต่างๆ มากมายในโรคโควิดที่รุนแรง-19 สิ่งที่น่าเป็นห่วงคือการคงอยู่ของฟีโนไทป์ที่เป็นพิษต่อเซลล์ของโคลนทีเซลล์ CD16+ นอกเหนือจากโรคเฉียบพลัน ซึ่งอาจเกี่ยวข้องกับกลไกทางพยาธิสรีรวิทยาที่เกี่ยวข้องกับโรคโควิดที่ยาวนาน อย่างไรก็ตาม เรื่องนี้จำเป็นต้องมีการสอบสวนเพิ่มเติมอย่างชัดเจน การทำงานโดยกำเนิดของทีเซลล์ CD16+ ไม่เพียงแต่ดูเหมือนว่าจะมีบทบาททางพยาธิสรีรวิทยาที่สำคัญเท่านั้น แต่สัดส่วนของเซลล์เหล่านี้ร่วมกับระดับพลาสมาของโปรตีนเสริมที่อยู่ต้นทางของ C3a ก็แสดงให้เห็นว่าเกี่ยวข้องกับผลลัพธ์ที่ร้ายแรง

คุณประโยชน์อาหารเสริม cistanche - เพิ่มภูมิคุ้มกัน
คลิกที่นี่เพื่อดูผลิตภัณฑ์ Cistanche Enhance Immunity
【สอบถามเพิ่มเติม】 อีเมล:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
การตอบสนองทางภูมิคุ้มกันโดยกำเนิดต่อการติดเชื้อ SARS-COV-2
ภูมิคุ้มกันโดยกำเนิดประกอบด้วยเซลล์และแขนของร่างกาย [50] ส่วนประกอบของแขนข้างลำตัวของภูมิคุ้มกันโดยธรรมชาติคือชุดของโมเลกุลที่หลากหลาย เช่น ส่วนประกอบเสริม คอลเลกชัน (เช่น เลกตินที่จับกับแมนโนส, MBL), ไฟโคลิน และเพนทราซิน (เช่น โปรตีนปฏิกิริยา C, CRP และ PTX3) [50 , 51]. โมเลกุลการจดจำรูปแบบของเฟสของไหลเหล่านี้มีหน้าที่คล้ายกับแอนติบอดี (ออโตแอนติบอดี) ในบรรดาแอนติ-แอนติบอดีเหล่านี้ พบว่า MBL จับขัดขวางโดยการจดจำมอยอิตีไกลโคซิดิกของมัน และยับยั้ง SARSCoV-2 [36] VoC ทั้งหมดรวมถึง Omicron ได้รับการยอมรับจาก MBL พบว่า haplotypes ของ MBL มีความสัมพันธ์กับความรุนแรงของโรค [36] Pentraxin 3 (PTX3) แต่ไม่ใช่ CRP สัมพัทธ์ที่ห่างไกลจับกับนิวคลีโอโปรตีนของ SARS-CoV-2 แต่ก็ยังต้องได้รับการอธิบายว่าการจดจำจะขยายการอักเสบหรือไม่ [36] แท้จริงแล้ว PTX3 ได้กลายเป็นตัวบ่งชี้ทางชีวภาพที่สำคัญของความรุนแรงของโรค โดยมีการตายเป็นจุดสิ้นสุด [52–56] ผลลัพธ์ได้ขยายไปสู่โรคโควิดที่ยาวนาน [57] โดย PTX3 เป็นส่วนหนึ่งของลายเซ็นความรุนแรงของโรค ส่วนประกอบได้กลายเป็นช่องทางในการขยายการอักเสบและความเสียหายของเนื้อเยื่อ [58] วิถีเลคตินอาจมีบทบาทในการกระตุ้นส่วนเสริม การศึกษานำร่องขนาดเล็กแนะนำว่าการเสริมการกำหนดเป้าหมายโดยการยับยั้งคอนเวอร์เตส C3 หรือโดยการปิดกั้นซีรีนโปรตีเอสที่เกี่ยวข้องกับมานโนส (MASP) และวิถีเลคตินอาจเป็นประโยชน์ในโรคโควิด-19 [49, 59–63] วิธีการรักษาเหล่านี้อาจส่งผลกระทบต่อการทำงานของซีดี16+ ทีเซลล์ที่มีการกระตุ้นสูงซึ่งมีการทำงานของระบบภูมิคุ้มกันโดยธรรมชาติหรือไม่นั้น จำเป็นต้องได้รับการตรวจสอบเพิ่มเติม [49] ดังนั้นภูมิคุ้มกันโดยกำเนิดจากร่างกาย (แอนที-แอนติบอดี) จึงมีบทบาทสำคัญในโรคโควิด-19 MBL แสดงถึงวิถีการต่อต้าน SARS-CoV-2 VoC ที่ไม่ซ้ำซ้อน Pentraxins CRP และ PTX3 ให้ตัวบ่งชี้การพยากรณ์โรคที่สำคัญ โดย PTX3 จะรวมเซลล์ไมอีลอยด์และการกระตุ้นเซลล์บุผนังหลอดเลือด การสำรวจคุณค่าและความสำคัญของแอนเต้แอนติบอดีเพิ่มเติมในฐานะตัวชี้วัดทางชีวภาพ (PTX3) แนวทางการรักษา (MBL) และเป้าหมายในการรักษา (ส่วนเสริม) เพิ่มเติมจะเป็นสิ่งสำคัญ มาโครฟาจและโมโนไซต์แสดงตัวรับการจดจำรูปแบบ (PRRs) ที่หลากหลาย รวมถึง TLRs, (NOD) - เหมือนโปรตีนในตระกูลตัวรับ (NLRs) ที่ไม่มีอยู่ในมะเร็งผิวหนัง 2 (AIM2) และทางเดิน GMP-AMP synthase (cGAS) -STING แบบไซคลิก สิ่งเหล่านี้สามารถกระตุ้นการตอบสนองทางภูมิคุ้มกันโดยธรรมชาติต่อการติดเชื้อไวรัสผ่านการติดเชื้อโดยตรงและการตรวจจับ SARS-CoV-2 หรือโดยการตรวจจับรูปแบบโมเลกุลที่เกี่ยวข้องกับความเสียหาย (DAMP) หรือรูปแบบโมเลกุลที่เกี่ยวข้องกับเชื้อโรค (PAMP) ที่ปล่อยออกมาจากเซลล์ที่ติดเชื้อซึ่งทำหน้าที่เป็น กลไกการป้อนไปข้างหน้าที่แพร่กระจายการตอบสนองต่อการอักเสบอย่างเป็นระบบ การหาลำดับเซลล์เดี่ยวและการวิเคราะห์ไซโตเมทริกอื่นๆ ทำให้เกิด SARS-CoV-2 RNA ในมาโครฟาจของปอดมนุษย์ [30, 39] และโมโนไซต์ในเลือด [64] ทั้งแมคโครฟาจและโมโนไซต์ในปอดของมนุษย์ไม่ได้แสดงตัวรับการทำให้เป็นภายในของ SARS-CoV{-2- 2 หลัก ACE2 และด้วยเหตุนี้ กลไกทางเลือกอื่นสำหรับการทำให้เป็นภายในของไวรัสจึงไม่ได้รับการเสนอ รวมถึงการดูดซึมที่ใช้สื่อกลางของตัวรับ Fcreceptor [23, 65] เซลล์ปอดชนิดมัยอีลอยด์ที่ติดเชื้อ SARS-CoV-2 จะกระตุ้นให้เกิดโปรแกรมการถอดรหัสและส่งสัญญาณการตอบสนองของระบบภูมิคุ้มกันโดยธรรมชาติ เซลล์ที่ติดเชื้อ SARS-CoV-2-จะควบคุมคีโมไคน์ ไซโตไคน์ วิถีทาง IFN และยีนที่เกี่ยวข้องกับ TNF [30, 39] สิ่งเหล่านี้ทำหน้าที่ยับยั้งการขยายตัวของไวรัสและนำโมโนไซต์และทีเซลล์ไปยังบริเวณที่ติดเชื้อ อย่างไรก็ตาม มีการระบุการปล่อยไซโตไคน์ที่ทำให้เกิดการอักเสบมากเกินไปตั้งแต่เนิ่นๆ ในผู้ป่วยโรคโควิดที่ร้ายแรง-19 [66] การตรวจหา RNA ของไวรัสอาจกระตุ้นการกระตุ้นการตอบสนองของการถอดรหัสนี้โดย TLR3 และ TLR7 ของเอนโดโซม เช่นเดียวกับการตรวจหาโปรตีน E ของ SARS-CoV-2 บนเยื่อหุ้มเซลล์โดย TLR2 [67] รายงานล่าสุดแสดงให้เห็นว่ามีโปรตีนคล้ายจุดที่เกี่ยวข้องกับการตายของเซลล์โอลิโกเมอร์ไรซ์ ซึ่งมีโดเมนการเปิดใช้งานและการสรรหาแคสเปส (CARD) ควบคู่ไปกับ NLRP3 ในโมโนไซต์และแมคโครฟาจในปอดจากผู้ป่วยโควิด-19 [68] มอนอไซต์แสดงการกระตุ้นแคสเปส-1 ที่เกิดขึ้นพร้อมกัน และความแตกแยกและการย้ายตำแหน่งของรูพรุนแกสทริน D ไปยังพลาสมาเมมเบรน ซึ่งเป็นเหตุการณ์ขั้นปลายของการกระตุ้นการอักเสบที่ช่วยให้ปล่อยไซโตไคน์ได้สะดวกและเกิดขึ้นก่อนกระบวนการการตายของเซลล์ไลติกที่มีการอักเสบที่เรียกว่าไพโรโทซิส . แท้จริงแล้ว ซีรั่มจากผู้ป่วยโควิด-19 ได้รับการเสริมคุณค่าสำหรับ IL-1 , IL-18 และแลคเตตดีไฮโดรจีเนส (LDH) ซึ่งบ่งบอกถึงภาวะไพโรโทซิสที่กำลังดำเนินอยู่ [68] ในปอดของผู้ป่วยโรคโควิด-19 การกระตุ้นให้เกิดการอักเสบไม่ได้จำกัดเฉพาะเซลล์ที่ติดเชื้อ SARS-CoV-2- เท่านั้น ซึ่งบ่งชี้ว่าสัญญาณพาราครินที่เกิดจากการติดเชื้อ SARS-CoV-2 สามารถกระตุ้นให้เกิดไพโรโทซิสในเซลล์ข้างเคียงได้ ที่มีศักยภาพในการตอบสนองต่อการอักเสบและความรุนแรงของโรค [64] สารยับยั้งที่กำหนดเป้าหมายไปที่ส่วนประกอบของวิถีการอักเสบ ซึ่งรวมถึงแคสเปส-1 และ NLRP3 ลดพยาธิสภาพในแบบจำลองเมาส์ที่ปรับให้เข้ากับมนุษย์ของการติดเชื้อ SARS-CoV-2 [65] การแนะนำการกำหนดเป้าหมายในการรักษาโรคของการอักเสบของ NLRP3 อาจให้ประโยชน์ในเชิงการแปลในขณะที่สังคมดำเนินไป ที่จะอยู่ร่วมกับ SARSCoV-2 อย่างไรก็ตาม สิ่งสำคัญคือต้องจำไว้ว่าการศึกษาส่วนใหญ่เกี่ยวกับผู้ป่วยในมนุษย์อาศัยเนื้อเยื่อหลังการชันสูตรศพ และดังนั้นจึงแสดงถึงรูปแบบที่รุนแรงที่สุดของโรค ด้วยเหตุนี้ จะต้องดูต่อไปว่าการยับยั้งการอักเสบสามารถให้ผลลัพธ์ที่มีประสิทธิผลในรูปแบบที่ไม่รุนแรงของโควิดหรือไม่-19 การตอบสนองทางภูมิคุ้มกันโดยธรรมชาติต่อการติดเชื้อ SARS-CoV-2 ไม่ได้จำกัดอยู่เพียงมาโครฟาจและโมโนไซต์ และมักเกี่ยวข้องกับการกระตุ้นและการรับนิวโทรฟิลที่ผิดปกติ มีรายงานว่ามีการเพิ่มขึ้นอย่างมากในเซลล์คล้ายไมอีลอยด์ (คล้าย MDSC) [69] [69] โดยเฉพาะอย่างยิ่งในเซลล์ที่มีอาการรุนแรงของโควิด{104}} ซึ่งมีส่วนทำให้เกิดโรค SARS-CoV{ {106}} การติดเชื้อ MDSC อาจชะลอการกวาดล้างไวรัส SARS-CoV{108}} และยับยั้งการแพร่กระจายและการทำงานของทีเซลล์ เป็นที่ทราบกันว่านิวโทรฟิลปล่อย NET และความไม่สมดุลระหว่างการสร้าง NET และความเสื่อมสลายมีบทบาทสำคัญในพยาธิสรีรวิทยาผ่านการดักจับเซลล์อักเสบ และป้องกันการสรรหาเซลล์ซ่อมแซมเนื้อเยื่อ กลยุทธ์ที่ควบคุมการก่อตัวของ NET หรือทำลาย NET ด้วยสารเช่น DNase อาจเป็นตัวแทนของการรักษาแบบใหม่สำหรับผู้ป่วยโรคโควิด-19 โดยเฉพาะผู้ที่ป่วยเป็นโรคร้ายแรง [2] ดูด้านล่าง
การอุดตันของหลอดเลือดที่ขับเคลื่อนด้วยเน็ต ขับเคลื่อนพยาธิวิทยาในภาวะวิกฤตที่รุนแรงของโควิด-19
ในระหว่างการแตกของเมมเบรนของแกรนูโลไซต์ในกระบวนการสร้าง NET ไซโตไคน์ที่ก่อให้เกิดการอักเสบที่เตรียมไว้ล่วงหน้า (เช่น IL-6) และคีโมไคน์ (เช่น IL-8, CCL3) เช่นเดียวกับเพปไทด์ต้านจุลชีพ (เช่น โปรตีนและฮิสโตนที่เพิ่มการซึมผ่านของแบคทีเรีย/การซึมผ่าน) ซีรีนโปรตีเอส (เช่น นิวโทรฟิลอีลาสเทสและโปรตีเอส 3) เอนไซม์อื่นๆ (เช่น ไมอีโลเพอออกซิเดส แลคโตเฟอร์ริน ไลโซไซม์ และฟอสโฟไลเปส A2) และสายพันธุ์ออกซิเจนปฏิกิริยา (ROS) จะถูกปล่อยออกสู่บริเวณใกล้เคียง ของเน็ต กิจกรรมของผู้ไกล่เกลี่ยที่ละลายน้ำได้จะจางหายไปเมื่อ NET ก่อตัวขึ้นในความหนาแน่นของนิวโทรฟิลสูงมีแนวโน้มที่จะรวมตัวกัน มวลรวมเหล่านี้ทำหน้าที่ต้านการอักเสบเนื่องจากโปรตีเอสที่เกิดจาก NET สลายตัวของผู้ไกล่เกลี่ยการอักเสบและฮิสโตนที่เป็นพิษในทางโปรตีโอไลต์ [70, 71] ที่สำคัญโปรตีเอสที่จับกับ DNA จะไม่ถูกต่อต้านโดยแอนตี้โปรตีเอส [72] ดังนั้นการก่อตัวของ NET จึงถือเป็นดาบสองคมที่เริ่มมีอาการอักเสบและช่วยแก้ไขความละเอียดในภายหลัง ความไม่สมดุลระหว่างการก่อตัวของ NET และการย่อยสลายยังสามารถทำให้เกิดการอักเสบได้ เช่น โดยการอุดตันหลอดเลือดและท่อ [73] รายงานแรกเกี่ยวกับบทบาทของ NET ในผู้ป่วยโรคโควิด{-19 ได้รับการเผยแพร่แล้วไม่นานหลังจากเริ่มมีการระบาดใหญ่ โดยบรรยายถึงระดับที่สูงขึ้นของเครื่องหมาย NET เช่น DNA ไร้เซลล์, ซิทรูลลิเนตฮิสโตน H3 (citH3) และไมอีโลเพอออกซิเดส-DNA (MPO-DNA) เชิงซ้อนในซีรั่มของผู้ป่วยเหล่านี้ [74] การจัดลำดับเซลล์เดียวของนิวโทรฟิลที่ได้มาจากเลือดจากเลือดที่อยู่รอบข้างสนับสนุนการเขียนโปรแกรมใหม่ของเซตย่อยของนิวโทรฟิลไปสู่โปรแกรมการถอดรหัสที่เกี่ยวข้องกับการก่อตัวของ NET โดยเฉพาะอย่างยิ่งในโรคโควิดที่รุนแรง-19 [27] มีรายงานว่าเซรั่มจากผู้ป่วยโรคโควิด-19 รวมถึงตัวไวรัสเองสามารถกระตุ้นการสร้าง NET ได้พร้อมกับระดับ ROS ในเซลล์ที่เพิ่มขึ้น [74–76] วิถีทาง ROS-NET นี้ร่วมกับการกระตุ้นนิวโทรฟิล การก่อตัวของการรวมตัวของเกล็ดเลือดนิวโทรฟิล และการรวมตัวภายในหลอดเลือดของ NET ที่เสริมด้วยปัจจัยเสริมและเนื้อเยื่อทำให้เกิดลิ่มเลือดอุดตันของอิมมูโนอุดตันที่ได้มาจาก NET รูปที่ 2 สิ่งนี้เป็นอันตรายอย่างยิ่งในหลอดเลือดขนาดเล็ก ซึ่งความเสียหายของอวัยวะอย่างรุนแรงเกิดขึ้นเนื่องจากการหยุดชะงักของจุลภาค [72, 77–79] เนื่องจากมีบทบาทสำคัญในพยาธิสรีรวิทยาของโควิด-19 NET จึงเป็นเป้าหมายสำคัญสำหรับการแทรกแซงทางการรักษา ปริมาณเฮปารินที่ใช้ในการรักษาได้รับการแสดงเพื่อป้องกันการรวมตัวของ NET ด้วยนาโนและอนุภาคขนาดเล็ก และประสิทธิภาพของการรักษานี้ในผู้ป่วยโควิด-19 ก็แสดงให้เห็นเมื่อเร็วๆ นี้ [80, 81] นอกจากนี้ เฮปารินยังเป็นที่รู้จักในการเร่งการย่อยสลาย NET ที่เป็นสื่อกลางของ DNase I และมีการทดลองครั้งแรกกับ Dornase Alfa ซึ่งเป็น DNase ชนิดรีคอมบิแนนท์ [82, 83] มีรายงานว่า Disulfiram ประสบความสำเร็จในการลด NET เพิ่มอัตราการรอดชีวิต และปรับปรุงการให้ออกซิเจนในเลือดในสัตว์ทดลอง ซึ่งทำให้ Disulfiram เป็นตัวเลือกใหม่ที่มีแนวโน้มในการรักษาโรคที่เกี่ยวข้องกับ NET ในผู้ป่วยโควิด-19 [84 ] สุดท้ายนี้ มีการกล่าวถึงสารยับยั้ง peptidyl-arginine deiminases (PADs) เพื่อเป็นการบำบัดเพื่อรักษาภาวะแทรกซ้อนที่เกิดจากลิ่มเลือดอุดตันที่เกี่ยวข้องกับ NET ในผู้ป่วยโรคโควิด-19 อย่างไรก็ตาม ยังไม่มีการทดลองทางคลินิก [85]
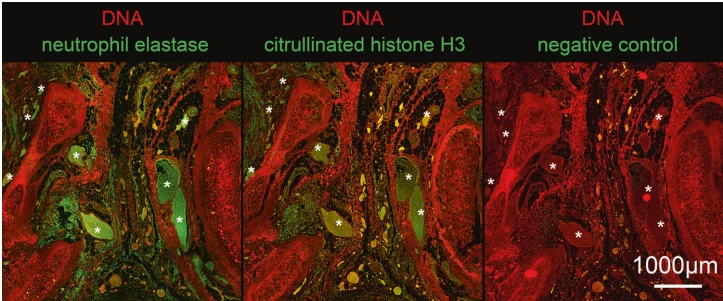
รูปที่ 2 NETosis ภูมิคุ้มกันเรืองแสงตรวจพบส่วนประกอบ NET citrullinated Histone H3 และนิวโทรฟิลอีลาสเทส (สีเขียวทั้งคู่) รวมถึง DNA นอกนิวเคลียร์ (DAPI; สีแดง) ในหลอดเลือดของปอดส่วนกลางของมนุษย์ โปรดทราบว่าคอมเพล็กซ์ DNA-enzyme-histone ในหลอดเลือดจะเติมเต็มรูของหลอดเลือดจำนวนมาก (หลอดเลือดที่อุดตันบางส่วนจะมีเครื่องหมายดอกจันกำกับไว้)
การกำหนดเป้าหมายประเภทที่ 1 หากผลิตโดย SARS-COV-2
ในขณะที่ภูมิคุ้มกันโดยธรรมชาติถือเป็นบรรทัดแรกของการป้องกันโฮสต์ต่อการติดเชื้อไวรัส การตอบสนองของ IFN ประเภท I นั้นเป็นแกนหลักที่มอบกิจกรรมต้านไวรัสให้กับเซลล์เจ้าบ้าน ซึ่งประกอบด้วยสองขั้นตอนหลักต่อเนื่องกัน รวมถึงการผลิต IFN และการแสดงออกของ ISG [{{1 }}] ในที่นี้ เรามุ่งเน้นเป็นพิเศษไปที่การควบคุมการผลิต IFN ประเภท I ซึ่งเป็นขั้นตอนแรกและสำคัญสำหรับการตอบสนองทางภูมิคุ้มกันโดยกำเนิดที่มีประสิทธิผล ดังนั้นจึงมุ่งเป้าไปที่โปรตีน SARS-CoV-2 เป็นหลักในการปราบปราม
ดังที่บรรยายไว้ในรูปที่ 3 การผลิตอินเตอร์เฟอรอนประเภท I เริ่มต้นโดยการรับรู้ RNA แบบสายคู่ (dsRNA) ที่สร้างขึ้นระหว่างวงจรชีวิตของไวรัสโดย RIG-1-like receptors (RLR) ซึ่งรวมถึง RIG -1 และ/หรือยีนสร้างความแตกต่างเมลาโนมา 5 (MDA5) ในไซโตพลาสซึม หรือ TLR ในเอนโดโซม [87] เมื่อโหลดด้วย dsRNA, RIG-1 และ MDA5 สามารถโต้ตอบกับโปรตีนส่งสัญญาณต้านไวรัสไมโตคอนเดรีย (MAVS) ของอะแด็ปเตอร์ ซึ่งนำไปสู่การก่อรูปของสารเชิงซ้อนในการส่งสัญญาณซึ่งประกอบด้วยไคเนสที่ยึดจับ TANK 1 (TBK1) และไคเนส IκB ที่เหนี่ยวนำไม่ได้ (IKKi) . จากนั้นคอมเพล็กซ์ TBK1/ IKKi จะทำหน้าที่ควบคุมฟอสโฟรีเลทอินเตอร์เฟอรอน 3/7 (IRF3/7) ซึ่งส่งเสริมการโยกย้ายไปยังนิวเคลียสเพื่อขับเคลื่อน IFN- / การแสดงออก ในขณะเดียวกัน TLR เช่น TLR3 ยังสามารถจดจำ PAMP ในเอนโดโซมเพื่อกระตุ้นการผลิตไซโตไคน์และคีโมไคน์ เพิ่มการตอบสนองของระบบภูมิคุ้มกันโดยธรรมชาติ [87]
ในระหว่างกระบวนการนี้ มีรายงานว่า SARS-CoV-2 เข้ารหัสโปรตีนอย่างน้อย 14 ชนิด ซึ่งคิดเป็นประมาณครึ่งหนึ่งของโปรตีนทั้งหมดที่ถูกเข้ารหัสโดยไวรัส เพื่อรบกวนการผลิต IFN [88–90] โปรตีนเหล่านี้รวมถึงเมมเบรนโครงสร้าง (M), โปรตีนนิวคลีโอแคปซิด (N), โปรตีนเสริม (3, 6, 8 และ 9b) และโปรตีนที่ไม่ใช่โครงสร้าง (NSP1, 3, 5, 6, 12,13, 14 และ 15) ที่สร้างจากการเข้ารหัสเฟรมการอ่านแบบเปิดขนาดใหญ่ (ORF) 1ab โดยโปรตีเอสคล้ายปาเปน (NSP3, NLpro) และโปรตีเอสคล้าย 3C (NSP5, 3CLpro) - การตัดแยกที่มีสื่อกลาง การปราบปรามการผลิต IFN โดยโปรตีน SARS-CoV-2 ดำเนินการผ่านกลไกสี่ประเภทเป็นหลัก ซึ่งรวมถึงการหลีกเลี่ยงการรับรู้ RNA ของไวรัส (โดย N, ORF9b, NSP1 และ NLpro) ซึ่งส่งผลต่อ RIG-1 หรือ TLR การส่งสัญญาณ (โดย M, N, 3CLpro, NSP12, ORF3b, ORF6, ORF7b และ ORF9b) การกำหนดเป้าหมายคอมเพล็กซ์ TBK1 (โดย M, N, NSP13, ORF9b,) และรบกวนการเปิดใช้งาน IRF3 (โดย M, N, NLpro, 3CLpro, NSP1, NSP12–15, ORF3b, ORF6 และ ORF8), รูปที่ 3 สอดคล้องกับการแทรกแซงอย่างกว้างขวางของการผลิต IFN โดยโปรตีนที่เข้ารหัส SARS-CoV{-2- ผู้ป่วยที่เป็นโรคโควิด-19 มักแสดงอาการ การตอบสนอง IFN แบบที่ 1 ที่ล่าช้า [90] กล่าวคือ การผลิต IFN ถูกยับยั้งในระยะแรกของการติดเชื้อ SARS-CoV-2 ซึ่งช่วยให้ไวรัสสามารถจำลองแบบในเซลล์เจ้าบ้านได้สำเร็จ โดยบ่อนทำลายการติดเชื้อที่ไม่มีอาการ การปรับปรุงการตอบสนองของ IFN ในขั้นตอนนี้กลับกลายเป็นว่าช่วยจำกัดการติดเชื้อ SARS-CoV-2 [91–93]

ประโยชน์ของ Cistanche สำหรับระบบภูมิคุ้มกันของผู้ชาย
ภายหลังการตอบสนองของ IFN ที่แฝงอยู่ ผู้ป่วยโรคโควิด-19 โดยเฉพาะอย่างยิ่งผู้ที่อยู่ในรูปแบบที่รุนแรง แสดงการตอบสนองของ IFN ที่เกินจริงอย่างมาก ซึ่งแสดงออกด้วยพายุไซโตไคน์ที่ไม่สามารถควบคุมได้และการอักเสบ ซึ่งสอดคล้องกับแขนอีกข้างหนึ่งของการตอบสนอง IFN ประเภท I ที่ล่าช้าที่ ระยะปลาย [90] ซึ่งการศึกษาเมื่อเร็ว ๆ นี้ให้ความกระจ่าง จ้าว และคณะ รายงานว่าบทบาทสองบทบาทตามระดับการแสดงออกของโปรตีน N โครงสร้างอาจมีความรับผิดชอบบางส่วน โดยที่โปรตีน N ขนาดต่ำถูกปราบปรามในขณะที่ขนาดสูงได้รับการส่งเสริม สำหรับการกระตุ้นการส่งสัญญาณ IFN สิ่งนี้ได้ผลโดยการควบคุมฟอสโฟรีเลชั่นและการโยกย้ายนิวเคลียร์ของ IRF3 แบบคู่กัน อีกทางหนึ่ง Ren และคณะ พบว่า SARS-CoV-2 อาจกระตุ้นการตอบสนองของ IFN โดยไม่คาดคิดผ่านทางเส้นทางการส่งสัญญาณ cGAS-STING ซึ่งเกิดจากไมโครนิวเคลียสของไซโตพลาสซึมที่สร้างขึ้นใน multinucleate syncytia ระหว่างเซลล์ที่แสดงการขัดขวางและ ACE2 [95] ผลลัพธ์ได้รับการยืนยันเพิ่มเติมโดยอิสระโดย Zhou และคณะ ซึ่งแสดงให้เห็นว่าฟิวชั่นของเซลล์และเซลล์นั้นเพียงพอที่จะกระตุ้นโครมาตินของไซโตพลาสซึม และทางเดินของไซโตพลาสซึม โครมาติน-cGAS-STING แต่ไม่ใช่เส้นทางการตรวจจับ RNA ของไวรัสที่ใช้สื่อกลาง MAVS ก่อให้เกิดอินเตอร์เฟอรอน และการแสดงออกของยีนที่ทำให้เกิดการอักเสบต่อการรวมตัวของเซลล์ [96] สิ่งที่น่าสนใจคือ โปรตีน SARS-CoV-2 หลายชนิด (3CLpro, ORF3a และ ORF9) ยังสามารถกำหนดเป้าหมาย STING เพื่อควบคุมการตอบสนองของ IFN ได้ [97] ซึ่งมีแนวโน้มบ่งชี้ถึงปฏิกิริยาโต้ตอบที่ซับซ้อนระหว่าง SARSCoV-2 และ ภูมิคุ้มกันโดยธรรมชาติ ดังนั้นการแทรกแซงทางภูมิคุ้มกันที่มีความสมดุลซึ่งมุ่งเป้าไปที่การตอบสนองของ IFN จึงจำเป็นสำหรับการบำบัดโรคโควิด-19
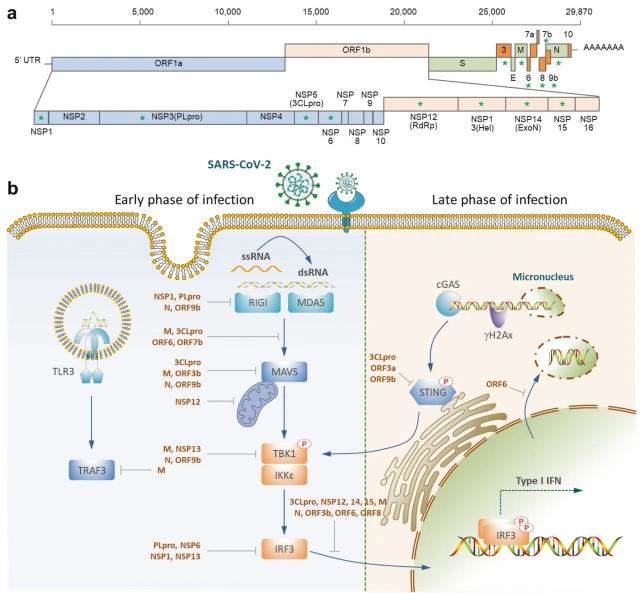
รูปที่ 3 การกำหนดเป้าหมายประเภทที่ 1 การผลิต IFN โดย SARS-CoV-2 การสาธิตแผนผังของโปรตีนของไวรัส มีการรายงานที่มีเครื่องหมายดอกจันเพื่อควบคุมการผลิต IFN b เส้นทางการส่งสัญญาณการผลิต IFN ที่กำหนดเป้าหมายโดยโปรตีน SARS-CoV-2 การติดเชื้อ SARS-CoV-2 ทำให้เกิดการตอบสนอง IFN ประเภท I ที่ล่าช้า ซึ่งอยู่ภายใต้การส่งสัญญาณ RIG-I/MDAS-MAVS ที่ถูกยับยั้งในระยะแรก และการส่งสัญญาณ cGAS-STING ที่กระตุ้นการทำงานของไมโครนิวเคลียสของไซโตพลาสซึมในระยะสุดท้าย .
ภูมิคุ้มกันแบบปรับตัว: ภูมิคุ้มกันของร่างกายต่อ SARS-COV-2
ภูมิคุ้มกันแบบปรับตัวให้ภูมิคุ้มกันที่จำเพาะต่อเชื้อโรค ซึ่งกำจัดการติดเชื้อและให้ความจำที่ยาวนานและการเรียกคืนการตอบสนองของระบบภูมิคุ้มกัน รูปที่ 4 บีเซลล์มีบทบาทสำคัญในภูมิคุ้มกันต่อต้านไวรัสโดยการผลิตแอนติบอดี แอนติบอดีประเภทต่างๆ เช่น IgM, IgA, IgG และ IgE เกี่ยวข้องกับการตอบสนองทางภูมิคุ้มกันของร่างกายต่อการติดเชื้อไวรัส ประเภทของแอนติบอดีเหล่านี้มีลักษณะเฉพาะโดยคุณสมบัติภายใน การทำงาน การกระจายตัวของเนื้อเยื่อ และครึ่งชีวิต เมื่อมีการติดเชื้อหรือการฉีดวัคซีน SARS-CoV{5}} IgD และ IgM จะเป็นแอนติบอดีประเภทแรกที่ผลิตขึ้น การทดสอบแอนติบอดี IgM ในเชิงบวกบ่งชี้ว่าอาจมีไวรัสอยู่หรือผู้ป่วยเพิ่งหายจากการติดเชื้อและการตอบสนองทางภูมิคุ้มกันจำเพาะของไวรัสได้เริ่มขึ้นแล้ว [98] ระหว่างการติดเชื้อ SARS-CoV-2 อาการจะเริ่มประมาณวันที่ 5 และร่างกายเริ่มสร้างแอนติบอดี IgM ประมาณ 7-8 วันหลังการติดเชื้อ [99] เนื่องจากสัมพรรคภาพเจริญเต็มที่ไม่เพียงพอ แอนติบอดี IgM จึงมีความสัมพันธ์ค่อนข้างต่ำเมื่อเปรียบเทียบกับ IgG ในทางกลับกัน เนื่องจากธรรมชาติของเพนทาแมริก แอนติบอดี IgM จึงมีความโลภสูงสำหรับแอนติเจนและมีบทบาทสำคัญในการทำให้เป็นออปโซไนซ์
แอนติบอดี IgG มักจะปรากฏขึ้นในภายหลังในระหว่างการตอบสนองทางภูมิคุ้มกัน เนื่องจากต้องใช้เวลาในการเจริญเติบโตของสัมพรรคภาพเพื่อให้ได้มาซึ่งความอยากสูงและความสามารถที่มีศักยภาพมากขึ้นในการต่อต้านเชื้อโรค กระตุ้นวิถีทางส่วนเติมเต็ม และฆ่าเซลล์ที่ติดเชื้อโดยอาศัยความเป็นพิษต่อเซลล์ของเซลล์ที่ขึ้นกับแอนติบอดี (ADCC) แอนติบอดี IgG มีครึ่งชีวิตในซีรั่มค่อนข้างยาวและสัมพันธ์กับหน่วยความจำเซลล์ B แอนติบอดี IgG ต่อ SARS-CoV-2 จะไม่พัฒนาจนกว่าจะประมาณ 14 วันหลังการติดเชื้อ [100] การทดสอบ IgG ในเชิงบวกเป็นข้อบ่งชี้ที่ดีว่าติดเชื้อหรือฉีดวัคซีนแล้ว สิ่งที่น่าสนใจคือ ในบรรดาผู้ติดเชื้อ SARS-CoV-2 แอนติบอดี IgG ที่ตรวจพบได้ส่วนใหญ่เป็น IgG1 และ IgG3 [101] แอนติบอดี IgA ผลิตขึ้นตาม IgM โดยมีระดับซีรั่มสูงกว่า IgM และเป็นแอนติบอดีหลักในพื้นผิวเยื่อเมือกและสารคัดหลั่ง มีรายงานว่าสามารถตรวจพบ IgA เฉพาะของ SARS-CoV-2- ได้ก่อนการปรากฏตัวของ IgM และควบคุมการตอบสนองการทำให้เป็นกลางตั้งแต่เนิ่นๆ [102] IgA ก่อตัวขึ้นเมื่อมีการหลั่งเพื่อเพิ่มความอยากอาหาร แอนติบอดี IgA ที่หลั่งเข้าไปในทางเดินหายใจมีบทบาทสำคัญในภูมิคุ้มกันของเยื่อเมือกต่อการติดเชื้อ SARSCoV-2 โดยการอำนวยความสะดวกในการรวมตัวและป้องกันการติดเชื้อเริ่มแรกของเซลล์เจ้าบ้าน สิ่งสำคัญที่ควรทราบคือระดับแอนติบอดีที่ทำให้เป็นกลางต่อ SARS-CoV-2 ที่ตรวจพบได้เริ่มลดลงภายในสามเดือนหลังจากการติดเชื้อที่ไม่รุนแรงและไม่มีอาการ สิ่งนี้อาจทำนายภูมิคุ้มกันชั่วคราวและความเสี่ยงที่เพิ่มขึ้นของการติดเชื้อซ้ำ น่าประหลาดใจที่หลายกลุ่มรายงานความสัมพันธ์ที่ชัดเจนระหว่างขอบเขตของภูมิคุ้มกันของ T-cell และการตอบสนองของร่างกายในผู้พักฟื้น [103–105] ผู้ป่วยที่เป็นโรคโควิดขั้นรุนแรง-19 พบว่ามีความถี่ในการกลายพันธุ์ต่ำในยีนบริเวณที่แปรผันของสายโซ่หนักในช่วงสัปดาห์แรกๆ หลังการติดเชื้อ โดยเฉพาะอย่างยิ่งในแอนติบอดีต่อสไปค์โปรตีน [106] ซึ่งบ่งชี้ถึงการเจริญเติบโตของอิมมูโนโกลบุลินที่ต่ำกว่าปกติ นอกจากนี้ ความล่าช้าในการเกิดขึ้นของแอนติบอดี รวมถึงแอนติบอดีที่ต่อต้าน SARSCoV-2 ก็มีข้อสังเกตในรูปแบบที่รุนแรงเมื่อเทียบกับรูปแบบที่เบากว่าของ COVID-19 [107, 108] สิ่งเหล่านี้สอดคล้องกับข้อเท็จจริงที่ว่าทีเซลล์ CD4+ จำเป็นสำหรับการรักษาการก่อตัวของศูนย์กลางเชื้อโรค (GC) และการสร้างความแตกต่างของบีเซลล์อย่างยั่งยืนซึ่งนำไปสู่การเปลี่ยนไอโซไทป์และการเจริญเต็มที่ของอิมมูโนโกลบูลิน ซึ่งเป็นคุณลักษณะสองประการของการตอบสนองทางร่างกายที่ขึ้นกับทีเซลล์ อย่างต่อเนื่อง การสร้าง GC ที่มีข้อบกพร่องสัมพันธ์กับการสูญเสีย CD4+ ทีเซลล์ในต่อมน้ำเหลืองของผู้ป่วยโรคโควิด-19 ขั้นรุนแรง [109] ข้อบกพร่องและความล่าช้าในการพัฒนาแอนติบอดีต่อโปรตีน Spike อาจส่งผลต่อการแพร่กระจายของไวรัสและการคงอยู่ของ SARS-CoV-2 ในผู้ป่วย [110] ได้นานขึ้น นอกจากนี้ การสูญเสีย T-cell ก่อนวัยอันควรเนื่องจากการตายของเซลล์มีความสัมพันธ์กับการตอบสนองของ B-cell ที่ลดลงในบุคคลที่ติดเชื้อ filovirus [111] หรือ retrovirus [112, 113] ดังนั้น การตายของซีดี4+ ทีเซลล์โดยการตายของเซลล์ [114] มากน้อยเพียงใดอาจมีความสัมพันธ์กับความล่าช้าในการเพิ่มการตอบสนองทางร่างกายที่มีประสิทธิภาพ และในการพัฒนาผลที่ตามมาควรได้รับการตรวจสอบเพิ่มเติม

cistanche พืชเพิ่มระบบภูมิคุ้มกัน
ภูมิคุ้มกันแบบปรับตัว: ภูมิคุ้มกันของเซลล์และการต้านทานต่อ SARS-COV-2
ภูมิคุ้มกันของเซลล์จำเพาะต่อ SARS-CoV-2 มีสื่อกลางโดยทีเซลล์ เซลล์เหล่านี้ไร้เดียงสาและไหลเวียนในกระแสเลือดและอวัยวะน้ำเหลืองส่วนปลายจนกระทั่งพบกับแอนติเจนเปปไทด์ที่จำเพาะของพวกมันที่นำเสนอโดย MHC ตัวไวรัส SARS-CoV-2 หรือเปปไทด์ของไวรัสเปล่าๆ ไม่สามารถกระตุ้นทีเซลล์ได้ ปฏิสัมพันธ์ที่มีสัมพรรคภาพสูงระหว่างเปปไทด์ SARS-CoV-2 ที่นำเสนอโดย MHC เองและ TCR ชักนำให้เกิดการเพิ่มจำนวนและการเปลี่ยนสภาพของทีเซลล์ไปเป็นเซลล์ที่มีส่วนช่วยในการกำจัดเซลล์ที่ติดเชื้อไวรัสหรือช่วยในการผลิตแอนติบอดี MHC คลาส I แสดงเปปไทด์แอนติเจนภายนอกที่กระตุ้นทีเซลล์ CD8+ ในขณะที่ MHC คลาส II แสดงเปปไทด์แอนติเจนภายนอกที่กระตุ้นทีเซลล์ CD4+ ทีเซลล์ที่จำเพาะต่อ SARS-CoV-2 มีความสำคัญอย่างยิ่งต่อภูมิคุ้มกันต่อการติดเชื้อ และมีรายงานว่าความไวต่อโรคร้ายแรงมีความสัมพันธ์กับอัลลีล HLA [115] เป็นที่ทราบกันว่าโมโนไซต์และมาโครฟาจที่ทำให้เกิดการอักเสบ รวมถึง DC express ACE2 ซึ่งอนุญาตให้ SARS-CoV-2 เข้าสู่เซลล์ที่สร้างแอนติเจนโดยผู้เชี่ยวชาญเหล่านี้เพื่อกระตุ้นการทำงานของทีเซลล์ โดยเฉพาะเซลล์ CD8+ แม้ว่าการแสดงออกของ ACE2 บนมาโครฟาจและ DC จะอยู่ที่ระดับกลางเท่านั้น แต่การแสดงออกร่วมของ CD209 (DC-SIGN) สามารถอำนวยความสะดวกในการเข้าสู่ DC ของ SARS-CoV-2 ได้อย่างมาก ควรชี้ให้เห็นว่าในกรณีส่วนใหญ่ การติดเชื้อ SARS-CoV-2 ไม่กระตุ้นการตอบสนองการอักเสบอย่างมากในมาโครฟาจและ DC IL-6 แทบจะตรวจไม่พบและไซโตไคน์อื่นๆ เช่น IL-1 นั้นต่ำมาก [117] สิ่งนี้อาจจำกัดการย้ายไปยังเนื้อเยื่อน้ำเหลืองในท้องถิ่น และการสุกแก่ไปยังเซลล์ด้วยการแสดงออกของโมเลกุลกระตุ้นต้นทุนที่มีประสิทธิภาพสูงในการนำเสนอแอนติเจนไปยังทีเซลล์ที่หมุนเวียน ซึ่งบ่งชี้ว่าการตอบสนองของทีเซลล์ที่แข็งแกร่งต่อ SARS-CoV-2 อาจเป็นเรื่องยาก กระตุ้นและจำกัดการพัฒนาภูมิคุ้มกัน สิ่งสำคัญที่ควรทราบก็คือ เซลล์ B ยังสามารถทำหน้าที่เป็นเซลล์ที่สร้างแอนติเจน SARS-CoV-2 ได้อีกด้วย โดยเฉพาะอย่างยิ่งเซลล์ที่มีอิมมูโนโกลบุลินบนพื้นผิวที่จำเพาะต่อแอนติเจนของ SARS-CoV-2 ผู้ป่วยโรคโควิด-19 ในระยะรุนแรงจะแสดงว่ามีลิมโฟไซต์ส่วนปลายลดลง เรียกว่า ลิมโฟพีเนียหรือลิมโฟไซโทพีเนีย ซึ่งเชื่อกันว่าส่งเสริมการลุกลามของโรค [118] เนื่องจากลิมโฟไซต์แทบจะไม่แสดงออกถึง ACE2 จึงไม่น่าจะตกเป็นเป้าหมายโดยตรงของไวรัส SARS-CoV-2 [119] มีการเสนอกลไกทางอ้อมที่สำคัญสองประการเพื่ออธิบายการสูญเสียลิมโฟไซต์ ประการหนึ่งคือการตายของเซลล์โดยอิสระที่เพิ่มขึ้น โดยหลักๆ แล้วเกิดจากการตายของเซลล์ ทีเซลล์ที่แยกได้จากผู้ป่วยโรคโควิดขั้นรุนแรง-19 มีแนวโน้มเพิ่มขึ้นที่จะตายจากการตายของเซลล์ โดยเห็นได้จากระดับการกระตุ้นแคสเปสและการสัมผัสกับฟอสฟาทิดิลซีรีนในระดับที่สูงขึ้น และอัตราการตายของเซลล์ที่เกิดขึ้นเองในระดับสูง [114] สิ่งนี้มีความสัมพันธ์อย่างมากกับ Fas ligand ที่ละลายน้ำได้เพิ่มขึ้นในซีรั่ม และด้วยการแสดงออกของ Fas/ CD95 บนทีเซลล์ที่เพิ่มขึ้น โดยเฉพาะใน CD4+ ทีเซลล์ [114, 120] ในขณะที่พบว่าทั้งการตายของเซลล์จากภายนอกและภายใน แต่ไม่ใช่การตายของเซลล์ การรักษาด้วย Q-VD ซึ่งเป็นตัวยับยั้ง pan-caspase ช่วยปกป้อง T เซลล์ที่แยกออกจากการตายของเซลล์ และเพิ่มการแสดงออกของการถอดเสียง Th1 [114] พบว่ามีการควบคุม TNF และ IFN อย่างต่อเนื่องในกลุ่มผู้ป่วยที่เป็นโรคโควิดขั้นรุนแรง-19 ซึ่งเกี่ยวข้องกับปรากฏการณ์ที่เรียกว่าพายุไซโตไคน์หรือภาวะติดเชื้อจากไวรัส [31] ปรากฏการณ์นี้อย่างน้อยก็ในส่วนหนึ่งที่เกิดจากการตายของเซลล์ที่มีการอักเสบ PANoptosis ซึ่งย่อมาจากการตายของเซลล์ผสมของ pyroptosis, apoptosis และ necroptosis ที่สำคัญ TNF- /IFN{- -สามารถช่วยชีวิตสัตว์ให้ตายได้ พร้อมกับระดับทีเซลล์ที่เพิ่มขึ้นในหนู Ripk3‒/‒ Casp8‒/‒ ซึ่งยับยั้ง PANoptosis ได้ [121] กลไกอีกประการหนึ่งที่รับผิดชอบต่อการสูญเสียลิมโฟไซต์คือสื่อกลางที่ไม่เป็นอิสระโดยซินไซเทีย ซึ่งสามารถกระตุ้นได้อย่างมีประสิทธิภาพโดย SARS-CoV-2 ผ่านทางโปรตีนขัดขวางที่หลอมละลายของมันซึ่งกำหนดโดยโมทีฟไบอาร์จินีนที่ฝังอยู่ [122] พบว่าซินไซเทียที่มีนิวเคลียสหลายนิวเคลียสสามารถแทรกซึมเซลล์เม็ดเลือดขาวที่มีชีวิตที่ถูกแทรกซึมเข้าไปภายใน โดยเฉพาะอย่างยิ่งเซลล์ CD8+ เพื่อสร้างโครงสร้างเซลล์ในเซลล์ ซึ่งเป็นปรากฏการณ์เฉพาะที่แพร่หลายในเนื้อเยื่อเนื้องอก [123] และมีบทบาทสำคัญใน ในการคัดเลือกโคลนและสภาวะสมดุลของภูมิคุ้มกันและสิ่งที่คล้ายกัน [124–126] ตามค่าเริ่มต้น ดังที่เกิดขึ้นในเซลล์มะเร็ง การก่อตัวของโครงสร้างเซลล์ในเซลล์ส่งผลให้ลิมโฟไซต์ที่อยู่ภายในซินไซเทียตายเป็นหลัก ซึ่งนำไปสู่การกำจัดอย่างรวดเร็ว ซึ่งสามารถช่วยชีวิตได้โดยการปิดกั้นการก่อตัวของซินซิเทียหรือเซลล์- การเสียชีวิตโดยอาศัยเซลล์เป็นสื่อกลาง จึงเป็นเป้าหมายใหม่สำหรับการบำบัดโรคโควิด-19 [127–130] สิ่งที่น่าสนใจคือ กลไกของลิมโฟพีเนียทั้งสองดูเหมือนจะแสดงความพึงพอใจต่อลิมโฟไซต์ที่เป็นเป้าหมาย โดยกลไกอิสระสำหรับทีเซลล์ CD4+ ในขณะที่กลไกที่ไม่เป็นอิสระสำหรับทีเซลล์ CD8+ [114, 122] ไม่ว่าการตั้งค่าดังกล่าวจะนำไปใช้กับลิมโฟไซต์ประเภทอื่นหรือไม่ และคุณสมบัติทางชีวภาพและผลกระทบที่อาจเกิดขึ้นนั้นรับประกันว่าจะต้องทำการตรวจสอบเพิ่มเติมหรือไม่ นอกเหนือจากการควบคุมความเป็นเซลล์ของเซลล์เม็ดเลือดขาวโดยตรงแล้ว เมื่อไม่นานมานี้ ซินไซเทียยังแสดงให้เห็นว่าสามารถกระตุ้นการส่งสัญญาณ cGAS-STING ผ่านการกระตุ้นให้เกิดไมโครนิวเคลียสไซโตพลาสซึมเปล่าๆ [95, 96] และเพื่อเริ่มการตายของเซลล์ที่มีการอักเสบ [131] ซึ่งทั้งสองอย่างนี้ แม้ว่าอาจช่วยสร้างภูมิคุ้มกันต่อต้านการติดเชื้อ แต่ในที่สุดก็จะส่งเสริมการอักเสบและความเสียหายของเนื้อเยื่อที่นำไปสู่สภาวะทางคลินิกที่รุนแรงขึ้น โดยบังเอิญ ตัวแปร Omicron ที่ทำให้เกิดโรคน้อยกว่าของ SARS-CoV-2 แสดงความสามารถที่ถูกบุกรุกในการกระตุ้นการก่อตัวของซินไซเทียในเซลล์ที่แสดง ACE2 ของมนุษย์ [132–134] เมื่อรวมกันแล้ว ซินซิเทียและการตายของเซลล์ประเภทต่างๆ อาจทำหน้าที่เป็นศูนย์กลางสำคัญสำหรับการเกิดโรคที่เกิดจากการติดเชื้อ SARS-CoV-2 แม้ว่าจะทราบกันโดยทั่วไปว่าภูมิคุ้มกันของทีเซลล์มีบทบาทสำคัญในการควบคุมโรค SARS-CoV-2 แต่ความสำคัญของมันยังคงถูกประเมินต่ำเกินไปและไม่มีความชัดเจนในเชิงกลไก การตอบสนองของทีเซลล์ที่เหมาะสมเป็นสิ่งสำคัญในการจำกัดการติดเชื้อ ต่างจากแอนติบอดีซึ่งมีความทนทานน้อยกว่าและมีเพียงแอนติบอดีจำเพาะต่อ RBD เท่านั้นที่สามารถทำให้เป็นกลางได้ ทีเซลล์ทำปฏิกิริยากับโปรตีนของไวรัสอย่างน้อย 30 เอพิโทป และแสดงความจำแบบยั่งยืน ซีดี4+ ทีเซลล์นั้นมีแนวโน้มที่จะเกิดอะพอพโทซิสมากกว่าอาจมีส่วนทำให้เกิดการพัฒนาของซีดี8+ ทีเซลล์ที่ "ทำอะไรไม่ถูก" ซึ่งเป็นเซลล์ที่หมดแรงและมีอายุสั้นลง [135, 136] ซึ่งนำไปสู่ ความเป็นพิษของทีเซลล์ที่มีข้อบกพร่อง [137] และการตายของซีดี8+ ทีเซลล์ [114] ในผู้ป่วยโรคโควิดขั้นรุนแรง-19 นอกจากนี้ ซีดี16+ ทีเซลล์ที่ถูกกระตุ้นสูงดังที่กล่าวมาข้างต้นยังมีส่วนช่วยในพยาธิสรีรวิทยาของโควิด-19 [49] ดังนั้น การป้องกันภาวะต่อมน้ำเหลืองอักเสบ การตายของทีเซลล์ และการทำงานที่ไม่เหมาะสมของทีเซลล์ CD{117}} อาจเป็นที่สนใจในการจำกัดการเกิดโรคและอาจเป็นผลสืบเนื่องในระยะยาว การใช้สารยับยั้งแคสเปสอย่างต่อเนื่องในระยะแรกของการติดเชื้อช่วยป้องกันลิงที่เป็นโรคภูมิคุ้มกันบกพร่อง (AIDS) ได้ [138] ดังนั้น กลยุทธ์ที่คล้ายกันอาจเป็นที่สนใจสำหรับการติดเชื้อ SARS-CoV-2 ในขณะเดียวกัน แม้ว่าโรคโควิด-19 ในเด็กจะไม่ค่อยรุนแรง แต่ผู้ป่วยกลุ่มหนึ่งก็มีอาการอักเสบหลายระบบในเด็กที่มีอินเตอร์เฟอรอนประเภท II และการตอบสนอง NF-kB ที่แข็งแกร่ง ซึ่งแสดงออกโดยการขยายตัวชั่วคราวของ TRBV11-2 ทีเซลล์ โคลนโนไทป์และสัญญาณของการกระตุ้นทีเซลล์อักเสบ [139] ความเกี่ยวข้องกับอัลลีล HLA A*02, B*35 และ C*04 บ่งชี้ถึงความบกพร่องทางพันธุกรรม แต่ยังไม่ได้รับการตรวจสอบในกลุ่มประชากรขนาดใหญ่ [139] แม้ว่าความเครียดทางร่างกายและจิตใจ ไม่ว่าจะเฉียบพลันหรือเรื้อรัง มีผลกระทบอย่างมากต่อระบบภูมิคุ้มกัน แต่ส่วนประกอบของภูมิคุ้มกันโดยธรรมชาติและที่ปรับตัวอาจได้รับผลกระทบ มนุษย์และสัตว์ที่อยู่ในสภาวะความเครียดมีการลดลงอย่างมีนัยสำคัญในเซลล์เม็ดเลือดขาว [140] การผลิต IL{131}} เพิ่มขึ้น [141] ลดลงใน IFN- [142] การเพิ่มขึ้นในเซลล์ทีควบคุม [142] และ การเปลี่ยนแปลงของจุลินทรีย์ในลำไส้ [143] การกระตุ้นให้เกิดการแสดงออกของ Fas ต่อลิมโฟไซต์โดยความเครียดเรื้อรัง [144] อาจเป็นสาเหตุให้เกิดการพัฒนาของต่อมน้ำเหลืองในผู้ป่วยโควิด{138}} ที่กล่าวถึงข้างต้น อย่างน้อยก็ในบางส่วน จำเป็นต้องเน้นย้ำว่าไม่ควรมองข้ามความเครียดที่เกิดขึ้นอย่างแพร่หลายที่เกี่ยวข้องกับความวิตกกังวล อาการซึมเศร้า ความกลัว และการสนับสนุนทางสังคมที่ไม่เพียงพอในช่วงการแพร่ระบาดของโควิด{139}} มีความจำเป็นอย่างยิ่งที่จะต้องเข้าใจผลกระทบจากความเครียดที่มีต่อประสบการณ์{140}} ของโควิด และควรรวมการจัดการความเครียดไว้ในการดูแลผู้ป่วย โดยเฉพาะอย่างยิ่งผู้ที่ทุกข์ทรมานจากความผิดปกติทางจิตและจิตใจ
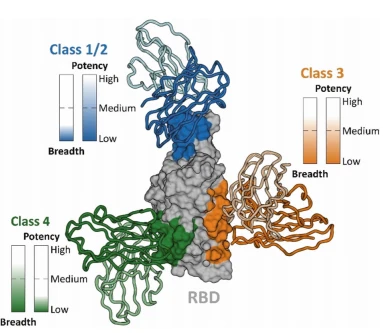
รูปที่ 5 รูปภาพแสดงโดเมนการจับตัวรับโปรตีนขัดขวาง (RBD) ของ SARS-CoV-2 ที่ถูกจับโดยแอนติบอดีที่ทำให้เป็นกลางประเภท 1/2 (สีน้ำเงิน) คลาส 3 (สีส้ม) และคลาส 4 (สีเขียว) ศักยภาพและความกว้างของการทำให้เป็นกลางทั่วทั้งสายพันธุ์ SARS-CoV-2 นั้นแสดงไว้สำหรับแอนติบอดีแต่ละประเภท [171–173]
แอนติบอดีเพื่อการบำบัดต่อโรค SARS-COV-2
โมโนโคลนอลไม่ว่าจะมาจากสัตว์หรือมนุษย์ถูกนำมาใช้เพื่อการพัฒนาการทดสอบวินิจฉัยโดยใช้ปฏิกิริยาลูกโซ่ที่ไม่ใช่โพลีเมอเรส (PCR){0}} ส่วนใหญ่ โดยปกติแล้วจะมุ่งเป้าไปที่นิวคลีโอแคปซิดซึ่งเป็นโปรตีนที่มีมากที่สุดของไวรัส ในช่วงที่มีการระบาดใหญ่ พวกมันถูกใช้ในการทดสอบแบบรวดเร็วหลายร้อยล้านครั้ง ในที่นี้ เราจะมุ่งความสนใจไปที่การใช้โมโนโคลนอลแอนติบอดี (เตา) ของมนุษย์ ก่อนการแพร่ระบาดของ SARS-CoV-2 hmAbs ถูกนำมาใช้กันอย่างแพร่หลายในการรักษาโรคมะเร็ง โรคอักเสบ และโรคแพ้ภูมิตัวเอง [145] ยกเว้นแอนติบอดีต่อไวรัส syncytial ระบบทางเดินหายใจที่ได้รับการอนุมัติให้ใช้ทางคลินิกในปี 1998 [146] hmAbs ไม่ได้ถูกนำมาใช้กับโรคติดเชื้อเนื่องจากจำเป็นต้องส่งทางหลอดเลือดดำในปริมาณมาก และมีราคาแพงเกินไปเมื่อเทียบกับมาตรฐานการดูแลโรคติดเชื้อ เกมดังกล่าวเริ่มเปลี่ยนไปด้วยผลงานบุกเบิกของ Antonio Lanzavecchia ในช่วงการระบาดของโรค SARS-CoV ในปี 2545-2546-1 [147] นับเป็นครั้งแรกที่ห้องทดลองของเขาสามารถโคลนแอนติบอดีที่สร้างเซลล์ B จากผู้ป่วยพักฟื้นเพื่อต่อต้านไวรัส นับตั้งแต่นั้นเป็นต้นมา มีเทคโนโลยีอื่นๆ มากมายที่สามารถแยก hmAbs โดยเริ่มจากเซลล์ B ของผู้บริจาคที่ได้รับการพักฟื้นหรือที่ได้รับวัคซีนแล้ว แอนติบอดีจำนวนมากได้รับการพัฒนาและทดสอบในคลินิกสำหรับเอชไอวี และเทคโนโลยีที่ได้รับการปรับปรุงทำให้สามารถแยกแอนติบอดีที่มีศักยภาพมากกว่า 1000- เท่ามากกว่าแอนติบอดีที่แยกได้ในตอนแรกกับเชื้อโรคนี้ [148] ในสภาพแวดล้อมนี้ Wellcome Trust ได้ตีพิมพ์รายงานในปี 2019 โดยระบุว่าถึงเวลาแล้วในการพัฒนา hmAbs สำหรับโรคติดเชื้อ (Wellcome Trust "การขยายการเข้าถึงผลิตภัณฑ์ที่ใช้โมโนโคลนอลแอนติบอดี" (2020))
ทันทีที่การแพร่ระบาดของ SARS-CoV-2 เริ่มต้นขึ้น ห้องปฏิบัติการทางวิชาการและอุตสาหกรรมหลายแห่งได้แยกเซลล์ B ออกจากผู้พักฟื้น และสร้างสิ่งพิมพ์จำนวนมากในวารสารอันทรงเกียรติที่แสดงให้เห็นว่าการระบุ hmAbs สามารถต่อต้านไวรัสในหลอดทดลองได้ เช่นเดียวกับการปกป้อง และการรักษาหนู หนูแฮมสเตอร์ และไพรเมตที่ไม่ใช่มนุษย์ ในร่างกาย จากความท้าทายของไวรัส [149] แอนติบอดีที่ทำให้เป็นกลางมักจะแบ่งออกเป็นสี่ประเภทซึ่งจับบริเวณต่างๆ ของเดือยแหลม รูปที่ 5 นอกเหนือจากหลักฐานพรีคลินิกแล้ว การศึกษาทางคลินิกหลายชิ้นแสดงให้เห็นว่าเมื่อใช้ในช่วงเริ่มต้นหลังการติดเชื้อ hmAbs มีประสิทธิภาพสูงมากในการป้องกันโรคร้ายแรง [ 150]. เมื่อพิจารณาถึงประสิทธิภาพ และเนื่องจากสิ่งเหล่านี้เป็นโมเลกุลสำหรับการรักษาโรคกลุ่มแรกที่พัฒนาขึ้นในช่วงที่มีการระบาดใหญ่ hmAbs จำนวนมากจึงได้รับการใช้ในกรณีฉุกเฉินในสหรัฐอเมริกาและยุโรป: REGN COV2 (Casirivimab และ Imdevimab), Bamlanivimab (LYCoV555), Sotrovivab (VIR 7831 หรือ S309), Evusheld (tixagevimab และ cilgavimab) และ Bebtelovimab (LY-CoV1404) [150] เป็นเวลากว่าหนึ่งปีแล้วที่ hmAbs ยังคงเป็นเครื่องมือรักษาโรคที่แท้จริงเพียงอย่างเดียวที่เรามีต่อ SARS-CoV-2 น่าเสียดายที่ hmAbs ไม่ได้ผลในสภาพแวดล้อมการรักษาระหว่างโรคร้ายแรงขั้นรุนแรงในผู้ป่วยที่เข้ารับการรักษาในโรงพยาบาล และหลายกรณีล้มเหลวจากการเกิดขึ้นของสายพันธุ์ SARSCoV-2 ที่มีการกลายพันธุ์ที่แตกต่างกันในโปรตีน Spike ซึ่งเป็นเป้าหมายหลักในการทำให้ hmAbs เป็นกลาง ในความเป็นจริง ด้วยการเกิดขึ้นของตัวแปร Omicron ของ SARS-CoV-2 บ้าน 85% ที่ได้รับอนุมัติให้ใช้ทางคลินิกสูญเสียความสามารถในการป้องกันไวรัสนี้ [151] ปัจจุบันเรายังมี hmAbs ที่ได้รับอนุมัติสามตัวซึ่งทำงานได้ดีพอสมควรกับ Omicron และโมโนโคลนอลที่มีศักยภาพใหม่ในการต่อต้านตัวแปรนี้มีการอธิบายไว้ในวรรณกรรม [151] โดยสรุป การแพร่ระบาดของโควิด-19 ได้ชี้ให้เห็นถึงศักยภาพในการป้องกันและรักษาโรคติดเชื้อของ hmAbs และสามารถพัฒนาได้เร็วกว่ายาอื่นๆ นอกจากนี้ ขณะนี้ ยังสามารถพัฒนาสมุนไพรที่มีศักยภาพอย่างยิ่งยวดซึ่งสามารถฉีดเข้ากล้ามแทนที่จะฉีดเข้าเส้นเลือดดำ เพื่ออำนวยความสะดวกในการบริหารยานอกโรงพยาบาล ดังนั้น มนุษย์จึงถือได้ว่าอยู่ในระดับแนวหน้าของการแทรกแซงทางการแพทย์ในด้านโรคติดเชื้อ เนื่องจากลักษณะเฉพาะของพวกมันทำให้มนุษย์เป็นเครื่องมือสำคัญในการรับมือกับเชื้อโรคและโรคระบาดที่กำลังอุบัติใหม่
การฉีดวัคซีน SARS-COV-2
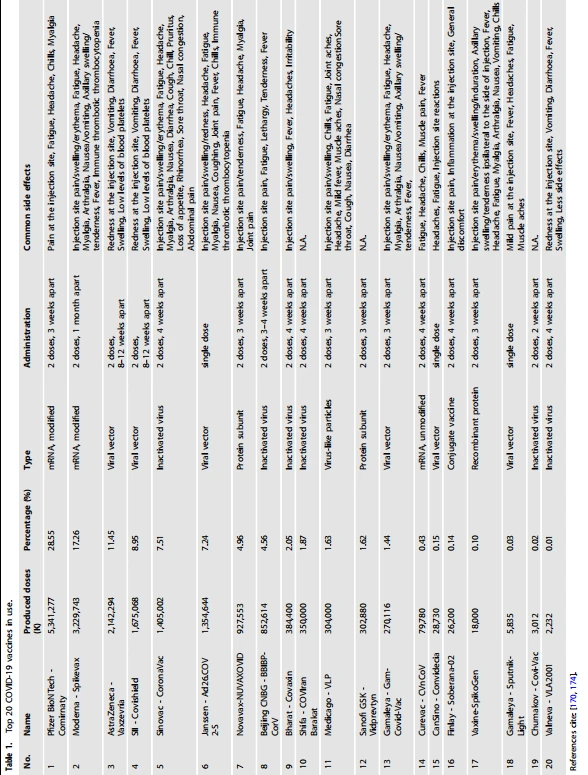
การสัมผัสกับเชื้อโรคที่ถูกทำให้อ่อนฤทธิ์หรือบางส่วนของเชื้อโรคเพื่อกระตุ้นภูมิคุ้มกันจำเพาะต่อเชื้อโรคที่เริ่มต้นจากการเปลี่ยนแปลงของไข้ทรพิษในประเทศจีนเมื่อมากกว่า 1000 ปีที่แล้ว [152] Edward Jenner ใช้โรคฝีดาษเพื่อปกป้องมนุษย์จากไข้ทรพิษในอีก 800 ปีต่อมา เนื่องจากในภาษาละติน คำว่า Vacca มีความหมายว่า วัว คำว่า Vaccination จึงได้รับการดัดแปลงในภายหลังโดย Richard Dunning เพื่อนของ Jenner ในปี 1800 ในช่วง 200 ปีที่ผ่านมา มีการพัฒนาแนวทางต่างๆ เพื่อปกป้องมนุษย์จากการติดเชื้อต่างๆ ผ่านการฉีดวัคซีน ผลลัพธ์ที่น่าประทับใจที่สุดอย่างหนึ่งของการแพทย์แผนปัจจุบันคือการพัฒนาวัคซีนที่มีประสิทธิภาพสูงในการต่อต้าน SARS-CoV-2 ในเวลาไม่ถึงหนึ่งปีนับจากเริ่มมีการระบาด รูปที่ 6 นับตั้งแต่การปรากฏตัวของ SARSCoV{{9} } นักวิทยาศาสตร์ได้ลองใช้วิธีต่างๆ ในการพัฒนาวัคซีน และวิธีที่สำคัญที่สุด ได้แก่ การปรับเปลี่ยน mRNA ที่เข้ารหัส S-protein (Moderna และ BioNTech) ซึ่งเป็นเวกเตอร์ไวรัสที่มีข้อบกพร่องในการจำลองแบบซึ่งมีลำดับ S-protein (Ad5-nCov-CanSino , AZD1222-A-AstraZeneca, GRAd-COV2-Reithera ที่ใช้ ChAdOx1), SARS-CoV ที่ทำให้เกิดโรคที่ไม่ทำงาน-2 (SinoVac, SinoPharm) และโปรตีนหน่วยย่อยของไวรัสชนิดรีคอมบิแนนท์ (โปรตีน S ทั้งหมด หรือ RBD) ตารางที่ 1 ในบรรดาวัคซีนที่ส่งมอบไปแล้ว 1 หมื่นล้านโดส จนถึงขณะนี้ วัคซีน mRNA จาก BioNTech และ Moderna รวมถึงวัคซีนที่ใช้ไวรัสพาหะจาก AstraZeneca และวัคซีนเชื้อตายจาก Sinovac และ Sinopharm ครอบครองมากกว่า 95% ของตลาด
เนื่องด้วยสถานการณ์ฉุกเฉินของการแพร่ระบาดของโควิด-19 นักวิทยาศาสตร์จึงมีเวลาขั้นต่ำเพียงพอในการประเมินประสิทธิภาพของวัคซีนที่พัฒนาขึ้น และมีขอบเขตขนาดใหญ่สำหรับการปรับปรุง ตัวอย่างเช่น ช่วงเวลาระหว่างการให้ยา (21 วันสำหรับ Pfifizer; 28 วันสำหรับ Moderna) ดูเหมือนสั้นเกินไป และความเข้าใจเกี่ยวกับการตอบสนองของแอนติบอดีที่มีอายุสั้น (6 เดือน) ยังคงเป็นเรื่องที่เข้าใจยาก ปฏิกิริยาข้ามกับ SARS และ MERS อาจบ่งบอกถึงความเป็นไปได้ของวัคซีน pan-coronavirus สากล เช่นเดียวกับการฉีดวัคซีนอื่นๆ มีความเป็นไปได้ที่จุลินทรีย์ร่วมเฉพาะ พยาธิ สารอาหาร (กรดน้ำดี บิวเทรต) หรือยาปฏิชีวนะ โดยไม่ต้องพูดถึงสถานะกดภูมิคุ้มกัน อาจทำให้การตอบสนองของระบบภูมิคุ้มกันลดลง จนถึงขณะนี้ มีสองวิธีที่ได้รับความนิยมมากที่สุด ได้แก่ ระดับแอนติบอดี และการป้องกันการติดเชื้อในโลกความเป็นจริง เพื่อประเมินประสิทธิภาพของวัคซีน เห็นได้ชัดว่าแอนติบอดีเป็นตัวทำนายที่ดีและมีข้อมูลทางระบาดวิทยาที่สนับสนุนความสัมพันธ์ที่ดีระหว่างระดับแอนติบอดีและความไวต่อโรค [153] โดยเฉพาะอย่างยิ่งเมื่อพิจารณาถึงความซับซ้อนของประเภทแอนติบอดีและจลนพลศาสตร์ของพวกมัน เนื่องจากวัคซีนสามารถช่วยลดความรุนแรงได้เท่านั้น จึงไม่มีแบบจำลองและข้อมูลเฉพาะเจาะจงที่ดีในการวิเคราะห์เชิงปริมาณและกำหนดความสามารถในการป้องกันได้อย่างแม่นยำ
We have previously hypothesized that "there are many types or subtypes of coronavirus" -or variants. Thus, if vaccines directly targeting SARS-CoV-2 prove to be difficult to develop, the Edward Jenner approach should be considered [154]. It has been noted that a subset of T cells primed against seasonal coronaviruses cross-react with SARS-CoV-2, and this is believed that it may contribute to clinical protection, particularly in early life. The coronaviruses belong to a family of enveloped single-stranded positive-sense RNA viruses. Available information on cellular immunity to other human coronaviruses (HCoVs), especially those causing the common cold, could be valuable for elucidating immunity to SARS-CoV-2. It is estimated that >90% ของผู้ใหญ่เคยสัมผัสเชื้อไวรัสไข้หวัดมาก่อน ภูมิคุ้มกันของเซลล์ต่อโคโรนาไวรัสอื่นๆ เช่น SARS-CoV-1 จะคงอยู่ยังคงเป็นคำถามหรือไม่ แม้ว่าจะแสดงให้เห็นว่าการตอบสนองของทีเซลล์สามารถเกิดขึ้นได้หลังจากผ่านไป 17 ปี [155] การตอบสนองของ T-cell อย่างต่อเนื่องพบได้ในผู้ป่วยบางรายที่ติดเชื้อ MERS แต่ยังคงต้องได้รับการตรวจสอบด้วยการศึกษาระยะยาวในผู้ป่วยจำนวนมากขึ้น เมื่อพิจารณาถึงการแพร่กระจายของค้างคาวเกือกม้าอย่างกว้างขวางในเอเชียตะวันออกเฉียงใต้ และอัตราการติดเชื้อ SARS-CoV-2 ที่ต่ำในพื้นที่ (3.1% ในเอเชียตะวันออกเฉียงใต้, 14.9% ในอเมริกา และ 22.5% ในยุโรป ตามข้อมูลของ WHO แดชบอร์ดโควิด-19 ณ เดือนกุมภาพันธ์ 2022) มีข้อเสนอแนะว่าไวรัสโคโรนาจากค้างคาวบางชนิดอาจให้ภูมิคุ้มกันตามธรรมชาติแก่ผู้อยู่อาศัยในท้องถิ่น เช่นเดียวกับที่ Edward Jenner ทำกับไวรัสโรคฝีดาษเพื่อปกป้องมนุษย์จากไข้ทรพิษ เราอาจพยายามระบุไวรัสโคโรนาในค้างคาวเพื่อปกป้องมนุษย์จาก SARS-CoV-2 วัคซีนที่ประสบความสำเร็จจะขึ้นอยู่กับปัจจัยต่างๆ เช่น การระบุเอพิโทปหรือส่วนประกอบของไวรัสที่มีประสิทธิผล พาหะนำส่ง ยาเสริมที่เหมาะสม เส้นทางการให้ยา และสภาพร่างกายและการแพทย์ของผู้รับวัคซีน [156] แม้ว่าเราจะมีวัคซีนที่มีประสิทธิภาพ แต่อัตราการฉีดวัคซีนในช่วงเวลาที่กำหนด การยอมรับ/การต่อต้านทางสังคม และระยะห่างทางสังคมที่ไม่เพียงพออาจทำให้ไวรัสปรากฏอยู่ในประชากรได้นานพอที่จะกลายพันธุ์ [157] ในขณะนี้ ดูเหมือนว่าไม่มีสูตรวัคซีนใดที่มีอยู่ที่สามารถป้องกันการติดเชื้อไวรัสได้อย่างสมบูรณ์ อย่างน้อยก็ในกรณีของสายพันธุ์ที่มีการติดเชื้อสูง เช่น ตัวแปร Omicron สิ่งที่ต้องพิจารณาภายใต้สถานการณ์เหล่านี้ซึ่งมักมีเงื่อนไขการป้องกันภูมิคุ้มกันเพียงบางส่วนเท่านั้นก็คือ ไวรัสตกอยู่ในสถานการณ์ที่ไม่เอื้ออำนวยซึ่งอาจบังคับให้ไวรัสกลายพันธุ์
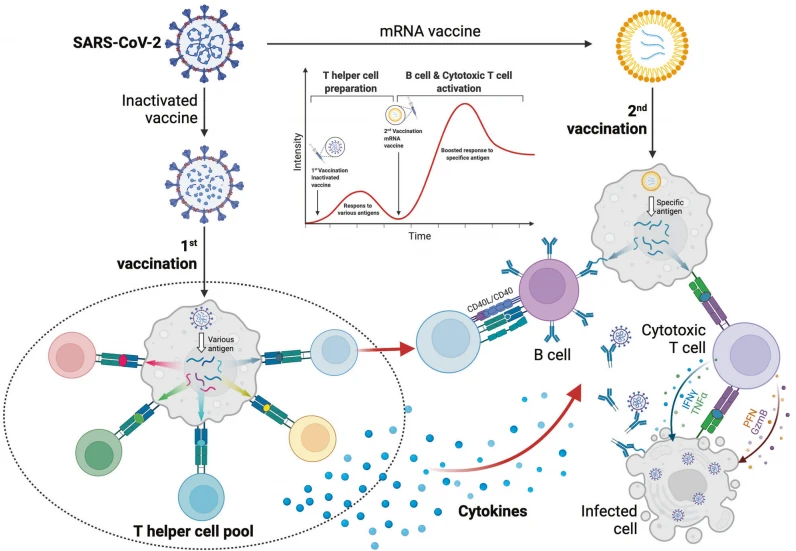
รูปที่ 6 กลยุทธ์การกระตุ้นไพรม์ต่างกันด้วยวัคซีนเชื้อตาย (ที่ 1) และวัคซีน mRNA (ที่ 2) ให้การป้องกันที่แข็งแกร่งต่อ SARS-CoV-2 วัคซีนเชื้อ SARS-CoV-2 เชื้อตายจะสงวนโปรตีนของไวรัสทั้งหมดไว้เพื่อการจดจำภูมิคุ้มกัน เมื่อสร้างภูมิคุ้มกันแล้ว แอนติเจนเหล่านี้สามารถกระตุ้นกลุ่ม T helper ที่มุ่งเป้าหมายกว้างไปที่โปรตีน SARS-CoV-2 ในทางกลับกัน วัคซีน mRNA กระตุ้นการตอบสนองทางภูมิคุ้มกันของร่างกายและเซลล์ที่แข็งแกร่งต่อสายพันธุ์ SARS-CoV-2 ในบุคคลที่เคยได้รับวัคซีนเชื้อตายก่อนหน้านี้ เราตั้งสมมติฐานว่ากลุ่ม T helper ที่เตรียมไว้ด้วยวัคซีนเชื้อตายสามารถเปิดใช้งานได้เมื่อได้รับวัคซีน mRNA ซึ่งเอื้อต่อการสร้างการตอบสนองของภูมิคุ้มกันและความจำที่แข็งแกร่งขึ้น
อะไรจะตามมาด้วย OMICRON
ในบรรดาสายพันธุ์ต่างๆ ของ SARS-CoV-2 นั้น Omicron ก่อให้เกิดความกังวล ความสับสน และความคาดหวังมากที่สุด อัตราการแพร่กระจายที่รวดเร็วของตัวแปร Omicron ทำให้เกิดความกังวลอย่างมากในหมู่นักระบาดวิทยา นักการเมือง และผู้เชี่ยวชาญด้านการควบคุมโรค นับตั้งแต่มีรายงานครั้งแรกจากแอฟริกาใต้เมื่อวันที่ 24 พฤศจิกายน พ.ศ. 2564 [158] มีหลายปัจจัยที่ทำให้เกิดการแพร่กระจายอย่างรวดเร็ว เป็นไปได้ว่าไวรัสเริ่มแพร่กระจายไม่นานหลังจากการติดเชื้อครั้งแรกและนานก่อนที่จะแสดงอาการ Omicron ติดต่อได้ง่ายกว่า SARS-CoV ชนิด wild-2 ประมาณ 10 เท่า หรือแพร่เชื้อได้ประมาณ 2.8 เท่าของ Delta Omicron BA.2 ที่เพิ่งเกิดขึ้นใหม่สามารถแพร่เชื้อได้มากขึ้น [159] การวิเคราะห์การกลายพันธุ์ของ Omicron และตัวแปร BA.2 บ่งชี้ว่าโปรตีนขัดขวางของพวกมันมีการกลายพันธุ์จำนวนมากมากกว่า VoC ก่อนหน้ามาก รูปที่ 1 จากการกลายพันธุ์ D614G เป็นการกลายพันธุ์ที่รู้จักกันดีซึ่งช่วยเพิ่มการติดเชื้อโดยกลไกหลายอย่าง รวมถึง ผลกระทบแบบสองโมดูลต่อความเสถียรของตัวตัดแต่งเข็ม [160, 161]; เชื่อกันว่าการกลายพันธุ์ใน K417 และ E484 ของภูมิภาค RBD จะเปลี่ยนแปลงความสัมพันธ์ของขัดขวางกับ ACE2 [162]; การกลายพันธุ์ของ N501Y แสดงให้เห็นว่าเปลี่ยนเขตร้อนของไวรัสโดยการแพร่เชื้อข้ามสายพันธุ์ไปยังหนู [163] ดังนั้นการสร้างโฮสต์ระดับกลางที่มีศักยภาพที่ช่วยการแพร่กระจายของไวรัส [164] อันที่จริง การศึกษาล่าสุดระบุการติดเชื้อ Omicron ในหนูและหนูเมาส์ [165–167] ซึ่งสนับสนุนการแพร่เชื้อจากสัตว์สู่คนของ SARS-CoV-2 รูปแบบใหม่ที่น่ากังวล คาดว่าการกลายพันธุ์ใน Omicron RBD ร่วมกันจะเปลี่ยนความสัมพันธ์กับ ACE2 อย่างไรก็ตาม การวิเคราะห์โครงสร้างโปรตีนไม่พบความสัมพันธ์ที่สูงกว่า [168] ปัจจัยที่มีส่วนทำให้เกิดโรคติดต่อร้ายแรงยังคงเป็นปริศนา อย่างไรก็ตาม ความสามารถในการแพร่กระจายในระดับสูงและการก่อโรคที่ดูเหมือนจะน้อยลงได้จุดประกายความหวังในการสร้างภูมิคุ้มกันหมู่และการสิ้นสุดของการระบาดใหญ่ คำถามก็คือว่า Omicron มีเชื้อโรคน้อยลงหรือไม่ แต่สามารถทำให้เกิดโรคเพิ่มขึ้นได้จากการกลายพันธุ์เพิ่มเติม
ไม่มีการรับประกันว่ารุ่นถัดไปจะเบาลง สิ่งที่น่าเป็นห่วงที่สุดคือการปรากฏตัวของ Deltacron ซึ่งเป็นกระดูกสันหลังของตัวแปร Delta และการเพิ่มขึ้นของ Omicron จำเป็นต้องมีข้อมูลเกี่ยวกับความเร็วในการส่งข้อมูลและการเกิดโรคของ Deltacron อย่างเร่งด่วน มีการถกเถียงกันมากมายเกี่ยวกับประสิทธิภาพของวัคซีนป้องกันโอไมครอนที่มีอยู่ ภูมิคุ้มกันที่เกิดจากวัคซีนเกือบทั้งหมดอาจถูกบุกรุกโดยตัวแปร Omicron เนื่องจากความสามารถในการกระตุ้นแอนติบอดีต่ำกว่า วัคซีนเชื้อตายจึงเชื่อกันว่าไม่มีประสิทธิผลในการป้องกันการติดเชื้อ นักวิทยาศาสตร์กำลังรอข้อมูลล่าสุดเกี่ยวกับความรุนแรงของโรคของผู้ป่วยที่ติดเชื้อ Omicron จากจีนแผ่นดินใหญ่ ซึ่งเกือบ 90% ได้รับวัคซีนเชื้อตาย และจากฮ่องกง ซึ่งคนส่วนใหญ่ได้รับการฉีดวัคซีน RNA ควรสังเกตว่าการศึกษาข้ามชาติแสดงให้เห็นว่าผู้รับที่สร้างภูมิคุ้มกันโรคก่อนด้วยวัคซีนเชื้อตาย ตามด้วยวัคซีน RNA แสดงให้เห็นแอนติบอดีจำเพาะ RBD และทีเซลล์จำเพาะ Omicron สูงที่สุด เมื่อเปรียบเทียบกับการฉีดวัคซีนสองครั้งด้วยวัคซีนประเภทเดียว วัคซีนเชื้อตายจะกระตุ้นให้เกิดเซลล์ T helper มากขึ้นเนื่องจากมีการนำเสนอโดย MHC คลาส II, รูปที่ 6 มีรายงานว่าการสร้างภูมิคุ้มกันแบบต่างกันด้วยวัคซีนเชื้อตายตามด้วยตัวกระตุ้น mRNA จะกระตุ้นการตอบสนองทางภูมิคุ้มกันของร่างกายและเซลล์ที่แข็งแกร่งต่อ SARS-CoV{ {6}} แวเรียนต์ของโอไมครอน [169] สุดท้ายนี้ การแพร่ระบาดของโควิด-19 จะจบลงอย่างไร? Omicron จะเป็นรุ่นสุดท้ายหรือไม่? ถ้าไม่เช่นนั้น ตัวแปรต่อไปจะมีคุณสมบัติอะไรบ้าง? คำถามที่ใหญ่ที่สุดก็คือว่าโควิด-19 จะกลายเป็นโรคประจำถิ่นหรือไม่ เราแค่หวังว่า ด้วยภูมิคุ้มกันที่สร้างขึ้นจากการฉีดวัคซีนและการติดเชื้อในประชากร โรคประจำถิ่นจะไม่เป็นอันตรายถึงชีวิต เห็นได้ชัดว่าเราต้องเรียนรู้กิจวัตรใหม่ของ SARS-CoV-2
ข้อมูลอ้างอิง
1. Chen J, Lu H, Melino G, Boccia S, Piacentini M, Ricciardi W และคณะ การติดเชื้อโควิด-19: มุมมองของจีนและอิตาลี โรคการตายของเซลล์ 2020;11:438.
2. แอคเคอร์มันน์ เอ็ม, แอนเดอร์ส เอชเจ, บิลลี่ อาร์, โบว์ลิน จีแอล, แดเนียล ซี, เด ลอเรนโซ อาร์ และคณะ ผู้ป่วยโรคโควิด-19: ใน dark-NETs ของนิวโทรฟิล การตายของเซลล์แตกต่างกัน 2021;28:3125–39.
3. Goubet AG, Dubuisson A, Geraud A, Danlos FX, Terrisse S, Silva CAC และอื่นๆ การแพร่กระจายของไวรัส SARS-CoV-2 RNA เป็นเวลานานและภาวะต่อมน้ำเหลืองเป็นลักษณะเด่นของเชื้อ COVID-19 ในผู้ป่วยมะเร็งที่มีการพยากรณ์โรคที่ไม่ดี การตายของเซลล์แตกต่างกัน 2021;28:3297–315.
4. มัตสึยามะ ที, คุบลี เอสพี, โยชินากะ เอสเค, เฟฟเฟอร์ เค, มัก ทีดับบลิว. เส้นทาง STAT ที่ผิดปกติเป็นศูนย์กลางของโควิด-19 การตายของเซลล์แตกต่างกัน 2020;27:3209–25.
5. มัตสึยามะ ที, โยชินากะ เอสเค, ชิบุเอะ เค, หมาก ทีดับบลิว. การขาดกลูตามีนที่เกี่ยวข้องกับโรคร่วมคือแนวโน้มที่จะทำให้เกิดโรคโควิดที่รุนแรง-19 การตายของเซลล์แตกต่างกัน 2021;28:3199–213.
6. Verkhratsky A, Li Q, Melino S, Melino G, Shi Y การระบาดใหญ่ของโควิด-19 ช่วยเพิ่มการแพร่ระบาดของโรคเกี่ยวกับความเสื่อมของระบบประสาทได้หรือไม่ ไบโอล ไดเร็คท์. 2020;15:28.
7. Murray CJL, Piot P. อนาคตที่เป็นไปได้ของการแพร่ระบาดของโควิด-19: SARSCoV-2 จะกลายเป็นการติดเชื้อตามฤดูกาลซ้ำหรือไม่ จามา. 2021;325:1249–50.
8. Buonvino S, Melino S. รูปแบบฉันทามติใหม่ใน Spike CoV-2: ผลกระทบที่อาจเกิดขึ้นในกระบวนการแข็งตัวของเลือดและการรวมตัวระหว่างเซลล์และเซลล์ ดิสโก้เซลล์ตาย 2020;6:134.
9. Colson P, Fournier PE, Delerce J, ล้าน M, Bedotto M, Houhamdi L, และคณะ การเพาะเลี้ยงและการจำแนกเชื้อ SARS-CoV "เดลตามิครอน"-2 ในกลุ่มผู้ป่วย 3 รายทางตอนใต้ของฝรั่งเศส เจเมด วิโรล. 2022 ออนไลน์ก่อนพิมพ์
10. Forni G, Mantovani A. Covid-19 คณะกรรมการของ Accademia Nazionale dei Lincei R. COVID-19 วัคซีน: จุดยืนของเราและความท้าทายที่อยู่ข้างหน้า การตายของเซลล์แตกต่างกัน 2021;28:626–39.
11. Lin L, Wang Y, Li Q, Hu M, Shi Y. เป้าหมายการรักษานวนิยาย SARS-CoV-2: RNA พิสูจน์อักษรการชราภาพที่ซับซ้อนและเกิดจากไวรัส การตายของเซลล์แตกต่างกัน 2022;29:263–5.
12. Shi Y, Wang Y, Shao C, Huang J, Gan J, Huang X และคณะ การติดเชื้อโควิด-19: มุมมองต่อการตอบสนองของภูมิคุ้มกัน การตายของเซลล์แตกต่างกัน 2020;27:1451–4.
13. เมาริเอลโล เอ, สซิเมก้า เอ็ม, อเมลิโอ ไอ, มาสซูด อาร์, โนเวลลี เอ, ดิ ลอเรนโซ เอฟ และอื่นๆ วัคซีนลิ่มเลือดอุดตันหลังโควิด-19 ในผู้ป่วยที่มีภาวะเกล็ดเลือดต่ำอยู่แล้ว โรคการตายของเซลล์ 2021;12:762.
14. Telenti A, Arvin A, Corey L, Corti D, Diamond MS, Garcia-Sastre A, และคณะ หลังการแพร่ระบาด: มุมมองเกี่ยวกับเส้นทางอนาคตของโควิด-19 ธรรมชาติ. 2021;596:495–504.
15. Sacco G, Briere O, Asfar M, Guerin O, Berrut G, Annweiler C. อาการของโควิด-19 ในผู้สูงอายุ: การทบทวนวรรณกรรมชีวการแพทย์อย่างเป็นระบบ ผู้สูงอายุ Psychol Neuropsychiatr Vieil. 2020;18:135–9.
16. Dehingia N, Raj A. ความแตกต่างทางเพศในการเสียชีวิตจากผู้ป่วยโควิด-19: เรารู้เพียงพอหรือไม่ มีดหมอ สุขภาพโลก. 2021;9:e14–e5.
17. Flaherty GT, Hession P, Liew CH, Lim BCW, Leong TK, Lim V และอื่นๆ โควิด-19 ในผู้ป่วยผู้ใหญ่ที่เป็นโรคหัวใจ ระบบทางเดินหายใจ และโรคทางเมตาบอลิซึมเรื้อรังที่มีอยู่แล้ว: การทบทวนวรรณกรรมที่สำคัญพร้อมคำแนะนำทางคลินิก วัคซีน Trop Dis Travel Med 2020;6:16.
18. คาริม SSA, คาริม คิวเอ. ตัวแปร Omicron SARS-CoV-2: บทใหม่ของการแพร่ระบาดของโควิด-19 มีดหมอ 2021;398:2126–8.
19. การโจมตีปอดอย่างอ่อนแอของ Kozlov M. Omicron อาจทำให้อันตรายน้อยลง ธรรมชาติ. 2022;601:177.
20. วอลเตอร์ เอ็น, จัสซัต ดับเบิลยู, วาลาซา เอส, เวลช์ อาร์, มูลตรี เอช, กรูม เอ็ม และคณะ การประเมินความรุนแรงทางคลินิกตั้งแต่เนิ่นๆ ของตัวแปร omicron ของ SARS-CoV-2 ในแอฟริกาใต้: การศึกษาการเชื่อมโยงข้อมูล มีดหมอ 2022;399:437–46.
21. เออร์วิง เอที, อาห์น เอ็ม, โกห์ จี, แอนเดอร์สัน เดอ, หวัง แอลเอฟ บทเรียนจากการป้องกันโฮสต์ของค้างคาว ซึ่งเป็นแหล่งกักเก็บไวรัสที่ไม่เหมือนใคร ธรรมชาติ. 2021;589:363–70.
22. บูร์กิ ทีเค. วัคซีนป้องกันโควิดแบบสายพันธุ์โอไมครอนและบูสเตอร์-19 มีดหมอ Respir Med 2022;10:e17.
23. Junqueira C, Crespo A, Ranjbar S, de Lacerda LB, Lewandrowski M, Ingber J, และคณะ การติดเชื้อ SARS-CoV-2 ที่ใช้ FcgammaR ของโมโนไซต์จะกระตุ้นการอักเสบ ธรรมชาติ. 2022 ออนไลน์ก่อนพิมพ์
24. Moncunill G, นายกเทศมนตรี A, Santano R, Jimenez A, Vidal M, Tortajada M, และคณะ ความชุกของ SARSCoV-2 และจลนพลศาสตร์ของแอนติบอดีในบุคลากรทางการแพทย์ในโรงพยาบาลสเปน หลังจากการติดตามผลเป็นเวลา 3 เดือน เจ โรคติดเชื้อ 2021;223:62–71.
25. ซิเปโต ดี, ปาลไมรา เจดีเอฟ, อาร์กานาราซ จีเอ, อาร์กานาราซ เออาร์. การทำงานร่วมกันของ ACE2/ADAM17/TMPRSS2 อาจเป็นปัจจัยเสี่ยงหลักสำหรับโควิด-19 อิมมูนอลด้านหน้า 2020;11:576745.
26. คัลลาเวย์ อี. นักวิทยาศาสตร์จงใจให้โควิดแก่ผู้คน - นี่คือสิ่งที่พวกเขาเรียนรู้ ธรรมชาติ. 2022;602:191–2.
27. Schulte-Schrepping J, Reusch N, Paclik D, Bassler K, Schlickeiser S, Zhang B, และคณะ ภาวะโควิดระดับรุนแรง-19 ถูกทำเครื่องหมายโดยช่องเซลล์ไมอีลอยด์ที่ไม่ได้รับการควบคุม เซลล์ 2020;182:1419–40 จ23.
28. Zhang Q, Bastard P, Liu Z, Le Pen J, Moncada-Velez M, Chen J และคณะ ข้อผิดพลาดแต่กำเนิดของภูมิคุ้มกัน IFN ประเภท 1 ในผู้ป่วยโรคโควิดที่คุกคามถึงชีวิต-19 ศาสตร์. 2020;370:eabd4570.
29. เอลลิงเฮาส์ ดี, เดเกนฮาร์ด เอฟ, บูจันดา แอล, บูติ เอ็ม, อัลบิลลอส เอ, อินเวอร์นิซซี พี, และคณะ การศึกษาความสัมพันธ์ทั่วทั้งจีโนมของโควิดระดับรุนแรง-19 ที่มีภาวะหายใจล้มเหลว N ภาษาอังกฤษ J Med 2020;383:1522–34.
30. Delorey TM, Ziegler CGK, Heimberg G, Normand R, Yang Y, Segerstolpe A และคณะ แผนที่เนื้อเยื่อ COVID-19 เปิดเผยพยาธิวิทยาของ SARS-CoV-2 และเป้าหมายของเซลล์ ธรรมชาติ. 2021;595:107–13.
31. ชูลท์เซ่ เจแอล, แอสเชนเบรนเนอร์ เอซี. โควิด-19 และระบบภูมิคุ้มกันโดยธรรมชาติของมนุษย์ เซลล์ 2021;184:1671–92.
32. ซัลวี วี, เหงียน โฮ, โซซิโอ เอฟ, สคิออปปา ที, เกาเดนซี ซี, ลาฟฟรานชี เอ็ม และคณะ SARSCoV-2-ssRNA ที่เกี่ยวข้องจะกระตุ้นการอักเสบและภูมิคุ้มกันผ่าน TLR7/8 เจซีไอ อินไซท์. 2021;6:e150542.
33. ฟาน เดอร์ เมด CI, ไซมอนส์ เอ, ชูร์ส-โฮเอจเมกเกอร์ เจ, ฟาน เดน ฮอยเวล จี, มันเทเร ที, เคิร์สเตน เอส, และคณะ การมีอยู่ของความแปรปรวนทางพันธุกรรมในชายหนุ่มที่เป็นโรคโควิดขั้นรุนแรง-19 จามา. 2020;324:663–73.
34. หลู่ คิว, หลิว เจ, จ้าว เอส, โกเมซ คาสโตร MF, โลรองต์-โรล เอ็ม, ตง เจ และคณะ SARS-CoV-2 ทำให้การตอบสนองต่อการอักเสบในเซลล์ไมอีลอยด์รุนแรงขึ้นผ่านตัวรับเลคตินชนิด C และสมาชิกในครอบครัว Tweety 2 ภูมิคุ้มกัน 2021;54:1304–19 จ.9.
35. เลมป์ เอฟเอ, โซริอาก้า แอลบี, มอนเทียล-รุยซ์ เอ็ม, เบนิกนี่ เอฟ, โนแอค เจ, ปาร์ค วายเจ, และคณะ เลคตินช่วยเพิ่มการติดเชื้อ SARS-CoV-2 และมีอิทธิพลต่อการทำให้แอนติบอดีเป็นกลาง ธรรมชาติ. 2021;598:342–7.
36. Stravalaci M, Pagani I, Paraboschi EM, Pedotti M, Doni A, Scavello F, และคณะ การรับรู้และการยับยั้ง SARS-CoV-2 โดยโมเลกุลการจดจำรูปแบบภูมิคุ้มกันโดยธรรมชาติของร่างกายมนุษย์ แนท อิมมูนอล. 2022;23:275–86.
37. คิโอโด เอฟ, บรูจินส์ เอส, โรดริเกซ อี, เอเวลีน ลี อาร์เจ, โมลินาโร เอ, ซิลิโป เอ, และคณะ นวนิยาย ACE2-ที่จับกับคาร์โบไฮเดรตอย่างอิสระของ SARS-CoV-2 ขัดขวางโปรตีนเพื่อโฮสต์เลคตินและไมโครไบโอตาในปอด พิมพ์ล่วงหน้าได้ที่ https://www.biorxiv.org/content/ 10.1101/2020.05.13.092478v1 2020.
38. Muus C, Luecken MD, Eraslan G, Sikkema L, Waghray A, Heimberg G, และคณะ การวิเคราะห์เมตาเซลล์เดี่ยวของยีน SARS-CoV-2 ทั่วทั้งเนื้อเยื่อและข้อมูลประชากร แนท เมด. 2021;27:546–59.
39. ให้ RA, Morales-Nebreda L, Markov NS, Swaminathan S, Querrey M, Guzman ER และคณะ วงจรระหว่างมาโครฟาจที่ติดเชื้อและทีเซลล์ในโรคปอดบวม SARS-CoV-2 ธรรมชาติ. 2021;590:635–41.
40. ฟาน บีค เอเอ, ฟาน เดน บอสเช เจ, มาสโตรเบราดิโน พีจี, เดอ วินเธอร์ เอ็มพีเจ, ลีเนน พีเจเอ็ม การเปลี่ยนแปลงทางเมตาบอลิซึมในแมคโครฟาจที่แก่ชรา: ส่วนผสมสำหรับการอักเสบ? เทรนด์อิมมูนอล 2019;40:113–27.
41 Locati M, Curtale G, Mantovani A. ความหลากหลาย กลไก และความสำคัญของความเป็นพลาสติกขนาดใหญ่ อนุ เศรษฐพล. 2020;15:123–47.
42. Xue J, Schmidt SV, Sander J, Draffehn A, Krebs W, Quester I และคณะ การวิเคราะห์เครือข่ายแบบถอดเสียงเผยให้เห็นแบบจำลองสเปกตรัมของการกระตุ้นแมคโครฟาจของมนุษย์ ภูมิคุ้มกัน 2014;40:274–88.
43. มานโตวานี เอ, เนเทีย เอ็มจี. ฝึกฝนภูมิคุ้มกันโดยธรรมชาติ อีพิเจเนติกส์ และโควิด-19 N ภาษาอังกฤษ J Med 2020;383:1078–80.
44. Habibzadeh F, Sajadi MM, Chumakov K, Yadollahie M, Kottilil S, Simi A และคณะ การติดเชื้อโควิด-19 ในกลุ่มผู้หญิงในอิหร่านที่สัมผัสเทียบกับที่ไม่สัมผัสกับเด็กที่ได้รับไวรัสโปลิโอชนิดลดทอนที่ใช้ในวัคซีนโปลิโอชนิดรับประทาน JAMA เน็ตโอเพ่น 2021;4:e2135044.
45. Wendisch D, Dietrich O, Mari T, von Stillfried S, Ibarra IL, Mittermaier M, และคณะ การติดเชื้อ SARS-CoV-2 กระตุ้นให้เกิดการตอบสนองของโปรไฟโบรติกมาโครฟาจและการเกิดพังผืดในปอด เซลล์ 2021;184:6243–61 จ27.
46. เครเมอร์ บี, โนลล์ อาร์, โบนากูโร แอล, โทวินห์ เอ็ม, ราเบะ เจ, แอสตาบูรูอากา-การ์เซีย อาร์, และคณะ ลายเซ็น IFN-alpha ในระยะเริ่มแรกและความผิดปกติอย่างต่อเนื่องเป็นคุณลักษณะที่โดดเด่นของเซลล์ NK ในโรคโควิดที่รุนแรง-19 ภูมิคุ้มกัน 2021;54:2650–69 จ.14.
47. วิทโคว์สกี้ เอ็ม, ทิเซียน ซี, เฟอร์เรรา-โกเมส เอ็ม, นีเมเยอร์ ดี, โจนส์ TC, ไฮน์ริช เอฟ, และคณะ การตอบสนองของ TGFbeta ที่ไม่เหมาะสมในโรคโควิด-19 จะจำกัดการทำงานของไวรัสของเซลล์ NK ธรรมชาติ. 2021;600:295–301.
48. Bernardes JP, Mishra N, Tran F, Bahmer T, Best L, Blase JI และคณะ การวิเคราะห์มัลติโอมิกส์ตามยาวระบุการตอบสนองของเมกะคาริโอไซต์ เซลล์เม็ดเลือดแดง และพลาสมาบลาสต์ ซึ่งเป็นจุดเด่นของเชื้อโควิดชนิดรุนแรง-19 ภูมิคุ้มกัน 2020;53:1296–314 จ.9.
49. จอร์จ พี, แอสตาบูรูอากา-การ์เซีย อาร์, โบนากูโร แอล, บรูฮาร์ด เอส, มิชาลิค แอล, ลิเพิร์ต แอลเจ และคณะ การกระตุ้นส่วนเติมเต็มทำให้เกิดความเป็นพิษต่อเซลล์ของทีเซลล์มากเกินไปใน COVID ขั้นรุนแรง-19 เซลล์ 2022;185:493–512 จ.25.
50. Bottazzi B, Doni A, Garlanda C, Mantovani A. มุมมองแบบบูรณาการของภูมิคุ้มกันโดยกำเนิดของร่างกายมนุษย์: Pentraxins เป็นกระบวนทัศน์ อนุ เรฟ อิมมูนอล. 2010;28:157–83.
51. Garlanda C, Bottazzi B, Magrini E, Inforzato A, Mantovani A. PTX3 ซึ่งเป็นโมเลกุลการจดจำรูปแบบของร่างกาย ในภูมิคุ้มกันโดยธรรมชาติ การซ่อมแซมเนื้อเยื่อ และมะเร็ง Physiol Rev. 2018;98:623–39.
52. บรูเนตตา อี, โฟลซี เอ็ม, บอตตาซซี บี, เด ซานติส เอ็ม, กริตติ จี, พรอตติ เอ และอื่นๆ การแสดงออกของมาโครฟาจและความสำคัญเชิงพยากรณ์ของเพนทราซิน PTX3 แบบยาวในโรคโควิด-19 แนท อิมมูนอล. 2021;22:19–24.
53. กริตติ จี, ไรมอนดิ เอฟ, บอตตาซซี บี, ริปามอนติ ดี, ริวา 1, แลนดิ เอฟ, และคณะ Siltuximab ปรับลดอินเตอร์ลิวคิน-8 และเพนทราซิน-3 เพื่อปรับปรุงสถานะการช่วยหายใจและการอยู่รอดในภาวะโควิดขั้นรุนแรง-19 มะเร็งเม็ดเลือดขาว 2021;35:2710–4.
54. Gutmann C, Takov K, Burnap SA, Singh B, Ali H, Theofifilatos K, และคณะ ซาร์ส-CoV-2 อาร์เอ็นเอเมียและวิถีโปรตีโอมิกแจ้งการพยากรณ์โรคในผู้ป่วยโควิด-19 ที่เข้ารับการรักษาในห้องไอซียู แนทคอม. 2021;12:3406.
55. ฮันเซ่น เอฟซี, นาดีม เอ, บราวนิ่ง เคแอล, คัมปาน่า เอ็ม, ชมิดท์เชน เอ, ฟาน เดอร์ พลาส เอ็มเจเอ การทำให้เป็นภายในที่แตกต่างกันของเปปไทด์ป้องกันโฮสต์ที่ได้มาจากทรอมบินเป็นโมโนไซต์และแมคโครฟาจ เจอินเนท อิมมูน. 2021:1–15.
56. ชิรินซี เอ, เพสเช เอฟ, ลาเทร์ซา อาร์, ดาลิส เอ็มจี, โลเวโร อาร์, ฟอนทานา เอ, และคณะ Pentraxin 3: บทบาทในการพยากรณ์โรคที่อาจเกิดขึ้นในผู้ป่วย SARS-CoV-2 ที่เข้ารับการรักษาในแผนกฉุกเฉิน เจ ติดเชื้อ. 2021;82:84–123.