

Gossypitrin สารฟลาโวนอยด์ที่เกิดขึ้นตามธรรมชาติ ช่วยลดความเสียหายของเส้นประสาทและไมโตคอนเดรียที่เกิดจากธาตุเหล็ก: ตอนที่ 2
Mar 16, 2022
โปรดติดต่อoscar.xiao@wecistanche.comสำหรับข้อมูลเพิ่มเติม
2.5. Gos-Fe(I) คอมเพล็กซ์การตรวจจับ
สมมติฐานที่เป็นไปได้ในการอธิบายผลลัพธ์ข้างต้นคือ Gos ก่อตัวเป็นคอมเพล็กซ์ชั่วคราวด้วย Fe(ll) ที่เอื้อต่อการเกิดออกซิเดชันด้วยออกซิเจน คอมเพล็กซ์เฉพาะกาลนี้สามารถส่งอิเล็กตรอนได้เร็วกว่า Fe()-citrate ทำให้เกิดคอมเพล็กซ์ที่เสถียรมากขึ้นด้วย Fe (Ill) รูปที่ 6A แสดงสเปกตรัมทั่วไปของ Gos ที่มีการดูดกลืนสูงสุดที่ 276, 332 และ 380 นาโนเมตร (เส้นสีดำ) การเพิ่ม Fe() ทำให้เกิดการลดลงที่ขึ้นกับความเข้มข้นในพีคการดูดกลืนสูงสุดและการปรากฏตัวของใหม่ใกล้กับ 500 นาโนเมตร (รูปที่ 6A) การเกิดขึ้นของอาร์เรย์ของสเปกตรัมที่เกิดจากสเปกตรัม Gos ได้รับการยืนยันโดยการมีอยู่ของจุดไอโซเบสิกที่ λiso=405 นาโนเมตร (ดูจุดสีดำ) ซึ่งบ่งชี้ถึงสมดุลทางเคมี (ความซับซ้อน) ระหว่าง Gos อิสระและเชิงซ้อน สิ่งที่ใส่เข้าไป (รูปที่ 6A)แสดงการก่อรูปของสารเชิงซ้อนที่มีปริมาณสัมพันธ์ 2:1(Gos-iron) ปริมาณสัมพันธ์ของสารเชิงซ้อน Gos-iron ดังกล่าวถูกกำหนดโดยวิธีของ Job ซึ่งแสดงจุดแตกหักที่อัตราส่วนโมลาร์ที่ 0.5
กรุณาคลิกที่นี่เพื่อทราบข้อมูลเพิ่มเติม
หลักฐานเพิ่มเติมเกี่ยวกับความสัมพันธ์ระหว่างธาตุเหล็กและ Gos ได้จากอินฟราเรดสเปกโตรสโคปี (รูปที่ 6B) สำหรับ Gos ฟรีและสารเชิงซ้อนของเหล็ก บรอดแบนด์ที่อยู่ในช่วง 3000-4000 ซม.-ถือเป็นการยืดตัวของไฮโดรเจน- พันธะหมู่ไฮดรอกซิลเนื่องจากการมีอยู่ของโมเลกุลของน้ำ โหมดการยืดตัว v(C=O) ของ Gos อิสระเกิดขึ้นที่ 1654 cm-I ซึ่งถูกเปลี่ยนไปสู่รูปแบบที่ซับซ้อน 1636 cm-Iupon ผลลัพธ์นี้ชี้ให้เห็นว่า Fe(Ⅱ) มีความสัมพันธ์กับคาร์บอนิลออกซิเจน [31] ยิ่งไปกว่านั้น การมีอยู่ของการสั่นสะเทือนแบบยืด v(Fe-O) ที่ 630 cm-I ยืนยันการก่อตัวของคอมเพล็กซ์ iron-Gos เนื่องจาก Gos ฟรีไม่ได้แสดงแถบดังกล่าว

รูปที่ 6.(A)ผลกระทบของ Fe(II) ต่อสเปกตรัม Gos UV-VIS (200-600 นาโนเมตร) ของผสมในการฟักไข่ที่ประกอบด้วยซูโครส 125 mM, KCl 65 mM, บัฟเฟอร์ HEPES 10 mM (pH 7.2), ซิเตรต 2 mM และ Gos 1.6 μM ความเข้มข้นของ Fe (I) จากบนลงล่างคือ {{12 }}, 0.16, 0.32, 0.48, {{20}}.64,0.8,0.96 และ 1.12 μM.Inset∶ แผนผังของงานสำหรับคอมเพล็กซ์ Gos-Fe(II) ที่ความเข้มข้นรวมคงที่ 【Fe(D)】 บวก 【Gos】=1.6 μM จุดสีดำแสดงถึงจุดไอโซเบสิก ลูกศรชี้ขึ้นและลงบ่งชี้ค่าการดูดกลืนแสงที่ลดลงและเพิ่มขึ้นที่ 380 และ 500 นาโนเมตรตามลำดับ ทำการทดลองที่ 28 องศา ความเร็วในการสแกนอยู่ที่ 2nm/sA พื้นฐานถูกสร้างขึ้นด้วยส่วนผสมของการฟักไข่บวก 1.6 μM Fe(I).(B)Infrared spectra of Gos และ Gos-Fe(I) ตัวอย่างทั่วไปจะแสดง
2.6. Gos ป้องกันการลด Fe (III) โดย Ascorbate
สถานะเฟอร์ริกของธาตุเหล็กที่ได้รับการส่งเสริมโดย Gos แสดงถึงกลไกการต้านอนุมูลอิสระที่เป็นไปได้ เนื่องจากเป็นอุปสรรคต่อกิจกรรมการเร่งปฏิกิริยาของ Fe(II) อย่างไรก็ตาม Fe(III) ยังคงสามารถถูกรีดิวซ์อีกครั้งให้อยู่ในรูปของเหล็กได้โดยใช้สารรีดิวซ์ตามธรรมชาติ เช่น แอสคอร์เบต อย่างหลังสามารถบรรจุระบบชีวภาพด้วย Fe(II) ซึ่งมีส่วนร่วมในปฏิกิริยา Fenton-Haber-Weiss ทำให้เกิดปฏิกิริยารุนแรง·OH รุนแรง เพื่อตรวจสอบความเป็นไปได้เหล่านี้ เราใช้ 1,10-phenanthroline เพื่อวัดระดับของการเกิด Fe(II) จากสารละลาย Gos (100 μM) ที่บำบัดด้วยสารแอสคอร์เบต 2 mM และความเข้มข้นของ Fe(II) ที่แตกต่างกัน ({{6} } ไมโครโมลาร์) รูปที่ 7 แสดงให้เห็นว่าการไม่มี Gos ทำให้อัตราการลดลงสูงสุดของ Fe(II) ถึง Fe(II) (เส้นสีดำที่มีความชัน 5.85×10⁻³); อย่างไรก็ตาม กระบวนการนี้ช้าลงโดยการปรากฏตัวของ Gos (ระยะฟักตัวขั้นต่ำ 1- สายสีเขียว) และหลังจากฟักตัวด้วย Gos เป็นเวลา 5 นาที อัตราการลดลงของ Fe(I) โดย ascorbate ลดลงเกือบ 3 เท่า (เส้นสีแดง ด้วยความชัน 2.04× 10⁻³) ผลลัพธ์นี้แสดงความสามารถของ Gos ในการยับยั้งการลด Fe() ที่อาศัยแอสคอร์เบตเป็น Fe(I)
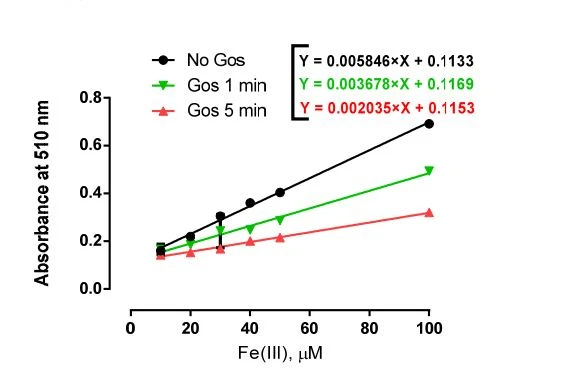
รูปที่ 7 Gos ยับยั้ง Fe(ⅢI)-reduction โดย ascorbate ในกรณีที่ไม่มี mitochondria ตับของหนูแรท เงื่อนไขการทดลอง: ซูโครส 125 mM, KCl 65 mM, บัฟเฟอร์ HEPES 10 mM (pH7.2), ซิเตรต 1 mM, Gos 100μM ทำการทดลองที่ 28 องศา แอสคอร์เบต(4 มิลลิโมลาร์) และ 5 มิลลิโมลาร์ 1,10-ฟีแนนโทรลีนถูกเติมหลังจากการบ่ม Gos-Fe(I) 1 นาทีหรือ 5 นาที เส้นเป็นตัวแทนของการทดสอบสามชุด
2.7. Gos ป้องกัน 2-Deoxyribose Oxidative Degradation
เพื่อบันทึกความสามารถของ Gos ในการออกฤทธิ์เหนือธาตุเหล็กแทนที่จะเป็นอนุมูลอิสระ ได้ทำการศึกษาการแข่งขันเพื่อประเมินประสิทธิภาพของ Gos และตัวเก็บขยะ 2·OH (DMSO และซาลิไซเลต) ในการปกป้อง 2.8 หรือ 28 mM 2-ดีออกซีไรโบสจากธาตุเหล็ก - ความเสียหายจากปฏิกิริยาออกซิเดชันที่เป็นสื่อกลาง (รูปที่ 8) ตัวเก็บขยะของ The·OH ที่ 20 mM ได้รับการปกป้อง 28 mM 2-ดีออกซีไรโบสน้อยกว่า 2.8 mM2-ดีออกซีไรโบสอย่างมีนัยสำคัญ (p<0.05), as="" expected.="" gos="" was="" equally="" effective="" in="" preventing="" oxidative="" degradation="" of="" both="" 2.8="" and="" 28="">
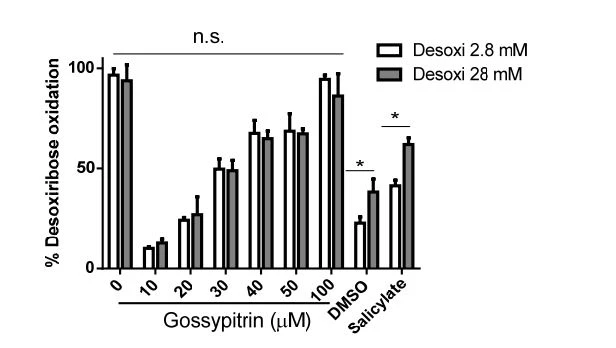
รูปที่ 8 ผลของ Gos และ·OH scavengers dimethyl sulfoxide(DMSO) และ salicylate ต่อความเสียหายจากปฏิกิริยาออกซิเดชันต่อ 2.8 หรือ 28 mM 2-ดีออกซีไรโบสที่เหนี่ยวนำโดย Fe(II)-EDTA บวกกับแอสคอร์เบต สารละลายถูกบ่มเป็นเวลา 30 นาทีที่ 37 องศาและมีบัฟเฟอร์ฟอสเฟต 10 มิลลิโมลาร์ (pH7.2),2-ดีออกซีไรโบส (2.8 หรือ 28 มิลลิโมลาร์), 150 ไมโครโมลาร์ EDTA และ 50 ไมโครโมลาร์ Fe(ⅢI) ปฏิกิริยาเริ่มต้นโดยการเพิ่มแอสคอร์เบตไปยังความเข้มข้นสุดท้ายที่ 2 มิลลิโมลาร์ แท่งแสดงค่าเฉลี่ย±SD (n=3) ส่วนควบคุมประกอบด้วย DMSO เท่านั้น (0.001 เปอร์เซ็นต์ ) ซึ่งเป็นความเข้มข้นของตัวทำละลายในตัวอย่าง Gos การทดสอบ t แบบด้านเดียวใช้สำหรับ*p<0.05, n.s.,="">
3. อภิปราย
ธาตุเหล็กที่ปล่อยออกมาภายใต้สภาวะต่างๆ ของระบบประสาท รวมทั้งโรคหลอดเลือดสมองขาดเลือดและหลอดเลือด กระตุ้นให้เกิดสภาวะสมดุลของเหล็กในสมอง ซึ่งนำไปสู่พยาธิสรีรวิทยาของการบาดเจ็บทางระบบประสาท [4,32-34] ที่ระดับเซลล์ย่อย การด้อยค่าของยลดูเหมือนว่าจะเกี่ยวข้องกับการตายของเซลล์ประสาทที่มีธาตุเหล็ก [10,15,35-38] หลักฐานทางคลินิกสนับสนุนข้อดีของการใช้ธาตุเหล็ก คีเลเตอร์ ซึ่งส่วนใหญ่เป็นดีเฟอรอกซามีน เมไซเลต ในการต่อต้านการเสื่อมของระบบประสาท รวมถึงโรคหลอดเลือดสมองทุกประเภท [7,16] อย่างไรก็ตาม ค่าใช้จ่ายสูงและความไม่พร้อมใช้งาน และผลกระทบที่หลากหลายของตัวคีเลเตอร์เหล็กแบบคลาสสิก ได้นำไปสู่การใช้คีเลเตอร์ตามธรรมชาติสำหรับการจัดการธาตุเหล็กในภาวะ dyshomeostasis [39,40]

Cistanche สามารถปรับปรุงภูมิคุ้มกัน
การป้องกันของ Gos แสดงให้เห็นในเซลล์ HT-22 และไมโตคอนเดรียของหนูและสมองที่ถูกฟักด้วยส่วนผสมของธาตุเหล็ก/ซิเตรต ซึ่งเราพบว่ามีการป้องกันที่แข็งแกร่งต่อความเสียหายที่เกิดจากธาตุเหล็ก เซลล์ HT ฮิปโปแคมปัล HT-22 ของหนูเมาส์ที่สัมผัสกับธาตุเหล็กเกินพิกัด (24 ชั่วโมง) แสดงความมีชีวิตที่ลดลง ซึ่งมีความสัมพันธ์อย่างใกล้ชิดกับการกระจายศักยภาพของเยื่อหุ้มไมโตคอนเดรียในระยะเริ่มต้นและการลด ATP (รูปที่ 2A-C ตามลำดับ) นี่แสดงให้เห็นว่าการด้อยค่าของไมโตคอนเดรียมีส่วนทำให้เกิดการตายของเซลล์ประสาท ภายใต้เงื่อนไขของเรา อย่างน้อยส่วนหนึ่งของ Fe(II) ที่อัปโหลดไปยังเซลล์ประสาทคาดว่าจะไปถึงออร์แกเนลล์ เนื่องจากการตายของเซลล์ประสาทที่เกิดจากธาตุเหล็กนำหน้าด้วยการสูญเสียการทำงานของไมโตคอนเดรีย ดังนั้นจึงแสดงให้เห็นว่าภาวะเหล็กเกินพิกัดทำให้เกิดการตายของเซลล์หนูเมาส์ hippocampal HT-22 และการแตกตัวของไมโตคอนเดรีย [41,42] ในทำนองเดียวกัน การได้รับธาตุเหล็กอย่างต่อเนื่องจะเพิ่มระดับ ROS ของ mitochondrial ในเซลล์ dopaminergic neuroblastoma SHSY5Y [43] นอกจากนี้ การไหลเข้าของธาตุเหล็กอย่างกว้างขวางในเซลล์ประสาทของฮิปโปแคมปัส เช่นเดียวกับความเสียหายของไมโตคอนเดรีย ได้รับการตรวจสอบหลังจากการสัมผัสกับเหล็กเฟอร์รัส 100 ไมโครโมลาร์ [36] ที่นี่เราสังเกตว่าการคงสภาพของเซลล์ประสาท hippocampal ที่ได้รับผลกระทบจากธาตุเหล็กโดย Gos มีความสัมพันธ์อย่างใกล้ชิดกับการอนุรักษ์ศักยภาพของเยื่อหุ้มไมโตคอนเดรียและระดับ ATP
เช่นเดียวกับในเซลล์ที่ไม่บุบสลาย การสัมผัสไมโตคอนเดรียโดยตรงต่อธาตุเหล็กกระตุ้นการบวมอย่างกว้างขวางของออร์แกเนลล์ การสลายตัวของศักยภาพของเมมเบรน และการสูญเสีย ATP (รูปที่ 3A-C ตามลำดับ) ในการทดลองนี้ Gos สามารถปกป้อง ไมโตคอนเดรียที่มีธาตุเหล็กมากเกินไปซึ่งแสดงโดยการรักษาพารามิเตอร์ที่กล่าวถึงข้างต้น ในแง่นี้ เป็นที่สังเกตว่าไมโตคอนเดรียที่มีความเข้มข้นระดับไมโครโมลาร์ของธาตุเหล็กได้รับการเปิดรูพรุนการเปลี่ยนผ่านของไมโตคอนเดรียและการสลายตัวของ △Y ในลักษณะที่ไวต่อการขับธาตุเหล็กแต่ไม่ขึ้นอยู่กับปฏิกิริยาของสารต้านอนุมูลอิสระของ catalase |44] สิ่งที่น่าสนใจคือ มีรายงานสารต้านอนุมูลอิสระ Mito-Tempo เพื่อป้องกันความเสียหายที่เกิดจากภาวะเหล็กเกินในเซลล์ประสาทฮิปโปแคมปัสโดยการกำจัดอนุมูลอิสระของไมโตคอนเดรียลซูเปอร์ออกไซด์และรักษาความสมบูรณ์ทางสัณฐานวิทยาของไมโตคอนเดรียและศักยภาพของเมมเบรน [36] เมื่อเร็ว ๆ นี้เราได้อธิบายผลกระทบของสารต้านอนุมูลอิสระของฟลาโวนอยด์นี้และความสามารถในการปกป้องเซลล์ PC12 จากการตายจากสารเคมีที่เกิดจากการขาดออกซิเจน [29] ซึ่งสรุปได้ว่าการขับอนุมูลอิสระและความสามารถในการต้านอนุมูลอิสระของ Gos มีส่วนในการป้องกันจากธาตุเหล็ก HT-22 และความเสียหายของไมโตคอนเดรีย อย่างไรก็ตาม ประสิทธิภาพที่ดีขึ้นของ Gos ในการต่อต้าน lipoperoxidation ที่เกิดจากธาตุเหล็ก เทียบกับ lipoperoxidation ที่อาศัย tertbutyl hydroperoxide (รูปที่ 4A,B ตามลำดับ) แสดงให้เห็นอย่างชัดเจนว่าความสามารถในการทำปฏิกิริยากับเหล็กเป็นกลไกหลักในการต่อต้านความเสียหายที่เกิดจากธาตุเหล็ก

เพื่ออธิบายลักษณะปฏิสัมพันธ์ของ Gos-Fe เพิ่มเติม ได้ทำการทดลองที่ปราศจากเซลล์และไมโตคอนเดรียหลายครั้ง เราสังเกตว่าเมื่อโพลีฟีนอลถูกฟักตัวร่วมกับ Fe (II) ความเข้มข้นของไอออนของโลหะจะลดลง ในขณะที่อัตราการใช้ออกซิเจนเพิ่มขึ้นที่สอดคล้องกัน (รูปที่ 5A-C) ผลกระทบเหล่านี้ชี้ให้เห็นว่า Gos กำจัด Fe(II) ออกจากซิเตรตคอมเพล็กซ์ และออกซิไดซ์ให้อยู่ในรูปแบบเฟอริกในกระบวนการที่ต้องใช้ O2 เป็นตัวรับอิเล็กตรอน ดังนั้น Gos ส่งเสริมการลดลงของความเข้มข้น Fe(II) ที่อาจขัดขวางอนุมูลไฮดรอกซิลผ่านปฏิกิริยาเฟนตัน เนื่องจาก Gos-Fe(II)complex ช่วยให้เกิดปฏิกิริยาออกซิเดชันของตัวรีดิวซ์ที่เกี่ยวข้อง เช่น แอสคอร์เบต ส่งผลให้เกิดการก่อตัว/การสร้างใหม่ของ Fe(II) เราจึงสามารถแสดงให้เห็นว่า Gos ยับยั้งการรีดิวซ์ของ Fe(II) ที่อาศัยแอสคอร์เบตเป็นสื่อกลาง ถึง Fe(II)
สมมติฐานที่ว่า Gos มีปฏิสัมพันธ์อย่างรุนแรงกับธาตุเหล็กยังได้รับการยืนยันผ่านเทคนิคทางสเปกโตรสโกปี และยืนยันผลลัพธ์ก่อนหน้านี้ที่อาร์เรย์ต่างๆ ของ
Gos-iron complex stoichiometry มีลักษณะเฉพาะโดย electron spin ionization mass spectroscopy [45]
ผลลัพธ์เหล่านี้พิสูจน์ให้เห็นถึงผลในการป้องกันของ Gos ต่อความเสียหายของเส้นประสาทที่อาศัยธาตุเหล็ก ซึ่งอาจเกิดจากการมีปฏิสัมพันธ์กับไอออนของธาตุเหล็ก ซึ่งขัดขวางการมีส่วนร่วมในการสร้างสปีชีส์ของออกซิเจนปฏิกิริยาตัวเร่งปฏิกิริยา นอกจากนี้ สิ่งนี้ชี้ให้เห็นถึงการก่อตัวของคอมเพล็กซ์การถ่ายโอนประจุชั่วคราวระหว่าง Fe(Ⅱ) และ Gos ซึ่งเร่งปฏิกิริยาออกซิเดชันของ Fe(II) และการก่อตัวของ Fe(III)-Gos complex ที่เสถียรกว่าซึ่งไม่สามารถมีส่วนร่วมในระยะการขยายพันธุ์ของลิพิด เปอร์ออกซิเดชัน นอกจากนี้ สารรีดิวซ์ที่เกี่ยวข้องทางชีวภาพ เช่น แอสคอร์เบตไม่สามารถลดธาตุเหล็กเฟอร์ริกเมื่อมี Gos ได้ ซึ่งจำกัดคุณสมบัติโปรออกซิแดนท์ของฟลาโวนอยด์บางชนิดที่เกี่ยวข้องกับการหมุนเวียนไอออนของเฟอร์รัส [30]. Gos ที่ความเข้มข้นระดับไมโครโมลาร์นั้นมีประสิทธิภาพมากกว่าตัวเก็บขยะแบบคลาสสิกในการก่อนระบายออกซิเดชันที่อาศัยเหล็กเป็นสื่อกลางของ 2-ดีออกซีไรโบส ประสิทธิภาพสูงนี้อาจถูกกำหนดถึงการก่อตัวของ Gos-Fe(II)/() ที่ออกฤทธิ์รีดอกซ์ดังที่เราได้สังเกตก่อนหน้านี้สำหรับโพลีฟีนอลชนิดอื่นๆ ที่ปรับปรุงประสิทธิภาพการทำงานของพวกมันในฐานะสารต้านอนุมูลอิสระเมื่อมีปฏิสัมพันธ์กับธาตุเหล็กในกระบวนทัศน์ภายนอกร่างกายที่แตกต่างกันของความเสียหายจากปฏิกิริยาออกซิเดชัน [ 22,46-48].
มีการพิสูจน์แล้วว่าสารคีเลตที่มีออกซิเจนเป็นลิแกนด์ (oxo ligand, O2-) สามารถคีเลตเหล็กและส่งเสริมการเกิดออกซิเดชันของ Fe(I) การทำให้เสถียรของ Fe(II) และทำให้ลดลงใน ศักยภาพที่ลดลง49] ที่ pH ทางสรีรวิทยา catechols สามารถสร้างสารเชิงซ้อน bis ที่มีความเสถียรทางเทอร์โมไดนามิกได้อย่างง่ายดายด้วยเหล็กเฟอร์ริก ซึ่งได้รับการสนับสนุนจากลิแกนด์ที่มีความเข้มข้นต่ำ การปรากฏตัวของ catechol moiety ในโครงสร้าง Gos แสดงให้เห็นถึงกลไกการทำงานร่วมกันที่คล้ายคลึงกันกับธาตุเหล็ก ซึ่งสามารถอธิบายการป้องกันที่ได้รับจากความเสียหายที่เกิดจากธาตุเหล็กของเซลล์ประสาทและไมโตคอนเดรีย ในเรื่องนี้ เรายังได้แสดงให้เห็นก่อนหน้านี้ว่า mangiferin และ guttiferone A กระตุ้นการเกิดออกซิเดชันของเหล็กและขัดขวางการลดลงของธาตุเหล็กเฟอร์ริก [23,24,26-28]

ความสามารถของ Gos ในการคีเลตธาตุเหล็กอาจกระตุ้นเส้นทางการส่งสัญญาณที่ส่งผลต่อการป้องกันระบบประสาท ตัวอย่างเช่น เอนไซม์ prolyl hydroxylase domain enzyme (PHD), Hypoxia Inducible Factor-lalpha(HIF-1}o) hydroxylation-modifying enzymes แบบคลาสสิกภายใต้ normoxia ได้รับการระบุว่าเป็นเป้าหมายสำคัญของตัวคีเลเตอร์ธาตุเหล็กที่เป็นประโยชน์ทางคลินิกในหลาย ๆ ความผิดปกติของระบบประสาท [50,51] เป็นที่เข้าใจได้เนื่องจาก PHD ขึ้นอยู่กับธาตุเหล็กไดวาเลนต์เป็นปัจจัยการมีเพศสัมพันธ์ [52] ยีนหลายตัวที่เกี่ยวข้องกับการป้องกันระบบประสาทถูกควบคุมโดย HIF-la เช่น eNOS, VEGF และ EPO[53] นอกจากนี้ การกระตุ้น HIF ที่เป็นผลมาจากการยับยั้ง PHD สามารถป้องกันการด้อยค่าของไมโตคอนเดรียที่อาศัยความเครียดจากปฏิกิริยาออกซิเดชันและการตายของเซลล์ โดยไม่ขึ้นกับบทบาทของปัจจัยการถอดรหัส [54]
Ferroptosis ซึ่งเป็นลักษณะการตายของเซลล์ที่ควบคุมโดยอาศัยธาตุเหล็กเมื่อเร็ว ๆ นี้ได้รับการเสนอให้เป็นกลไกที่เซลล์ประสาทที่ได้รับความเสียหายจากเลือดออกตาย [8] ความผิดปกติของไมโตคอนเดรียเกี่ยวข้องกับการตายของเซลล์เฟอร์รอปโตซิสเมื่อเร็วๆ นี้ [55] ดังนั้น การยับยั้งการเกิดเฟอร์รอปโตซิส ซึ่งช่วยรักษาการทำงานของไมโตคอนเดรียจากความเสียหายของธาตุเหล็ก อาจเป็นกลไกที่น่าเชื่อถือสำหรับการป้องกันระบบประสาทจากความผิดปกติทางระบบประสาทที่เกิดจากเหล็กซึ่งได้รับการปกป้องโดย Gos ซึ่งสมควรได้รับความสนใจเพิ่มเติม ต้องทำการวิจัยเพิ่มเติมเกี่ยวกับผลประโยชน์ที่สันนิษฐานของ Gos on ในสัตว์ทดลอง ที่เกี่ยวข้องกับการเสื่อมสภาพของระบบประสาทที่เกี่ยวข้องกับธาตุเหล็ก เพื่อเสนอให้ฟลาโวนอยด์นี้เป็นวิธีการรักษาต่อความเสียหายของเนื้อเยื่อสมองที่เกิดจากการปรับสภาวะสมดุลของเหล็ก


