การโคลนยีน การจำแนกหน้าที่ การวิเคราะห์โครงสร้างและการแสดงออกของซูโครสซินเทสจากซิสตานเช ทูบูโลซา
Sep 06, 2024
เชิงนามธรรม:ซูโครสซินเทสมีบทบาทสำคัญในวิถีเมแทบอลิซึมของน้ำตาลในพืช โดยการเร่งการผลิตยูริดีนไดฟอสเฟต (UDP)-กลูโคส ซึ่งทำหน้าที่เป็นผู้บริจาคไกลโคซิลที่ออกฤทธิ์ทางชีวภาพสำหรับกระบวนการเมตาบอลิซึมต่างๆ ในการศึกษานี้ ได้ทำการโคลนยีนซูโครสซินเทสชื่อ CtSusซิสตันเช ทูบูโลซาซึ่งเป็นยาแผนโบราณของจีนที่ขึ้นชื่อในเรื่องความร่ำรวยเนื้อหาของไกลโคไซด์ที่หลากหลายอิงตามผลการวิเคราะห์การถอดเสียง เฟรมการอ่านแบบเปิดของ CtSus มีความยาว 2 418 bp ซึ่งเข้ารหัสกรดอะมิโน 805 ตัว การวิเคราะห์ลำดับเผยให้เห็นโดเมนที่ได้รับการอนุรักษ์ซึ่งสัมพันธ์กับตระกูลซูโครสซินเทสของพืชที่บริเวณปลาย N และปลาย C ของโปรตีน CtSus การวิเคราะห์สายวิวัฒนาการแสดงให้เห็นว่า CtSus มีความสัมพันธ์เชิงวิวัฒนาการที่ใกล้ชิดกับการสังเคราะห์ซูโครสจากพืชอื่นๆ ในลำดับเดียวกัน การระบุการทำงานของ CtSus ดำเนินการผ่านการเร่งปฏิกิริยาทั้งเซลล์ร่วมกับ UGT71BD1 ซึ่งเป็นเอนไซม์ไกลโคซิลทรานสเฟอเรสที่มีลักษณะเฉพาะ ผลลัพธ์แสดงให้เห็นว่าการนำ CtSus เพิ่มอัตราการแปลงของไกลโคซิเลชันที่ถูกเร่งปฏิกิริยาโดย UGT71BD1 อย่างมีนัยสำคัญ การแสดงออกที่ละลายได้ของ CtSus ใน Escherichia coli ทำได้สำเร็จเพิ่มเติมโดยใช้เวกเตอร์การแสดงออก pCold™ TF การทดสอบเอนไซม์ ในหลอดทดลอง บ่งชี้การทำงานของ CtSus เพื่อกระตุ้นการก่อตัวของ UDP-กลูโคสเมื่อมีซูโครสและ UDP ผลปฏิกิริยาลูกโซ่โพลีเมอเรสเชิงปริมาณแบบเรียลไทม์แสดงให้เห็นว่ารูปแบบการแสดงออกของยีน CtSus ในส่วนต่างๆ ของ C. tubulosa และการเพาะเลี้ยงเซลล์แขวนลอยของ C. tubulosa ภายใต้ความเครียดจากภัยแล้งมีความสัมพันธ์กับรูปแบบการสะสมที่สังเกตได้จากฟีนิลเอธานอลไกลโคไซด์ ตามลำดับ นอกจากนี้ กรดอะมิโนที่สำคัญและปฏิกิริยาระหว่างเอนไซม์และสารตั้งต้นได้รับการสำรวจตามการทำนายโครงสร้างโปรตีนและผลลัพธ์การเชื่อมต่อระดับโมเลกุล โดยรวมแล้ว การค้นพบของเราระบุถึงซูโครสซินเทส CtSus ที่รับผิดชอบการจัดหาไกลโคซิลผู้บริจาค UDP-กลูโคสที่ใช้งานอยู่ในระหว่างการสังเคราะห์ทางชีวภาพของผลิตภัณฑ์ไกลโคไซด์ใน C. tubulosa และยังจัดให้มีองค์ประกอบยีนที่สามารถนำไปใช้ในการสร้างสายพันธุ์ทางวิศวกรรมสำหรับการผลิตผลิตภัณฑ์ไกลโคไซด์
คำสำคัญ: ซิสตันเช ทูบูโลซา- ซูโครสสังเคราะห์; ไกลโคไซด์; UDP-กลูโคส; การเร่งปฏิกิริยาด้วยเอนไซม์

DICHEN CISTANCHE ปลูกฝังฐานใน YUTIAN,HOTAN,XINJIANG
บริการสนับสนุนของ Wecistanche - ผู้ส่งออก cistanche ที่ใหญ่ที่สุดในประเทศจีน:
อีเมล:wallence.suen@wecistanche.com
Whatsapp/โทรศัพท์:+86 15292862950
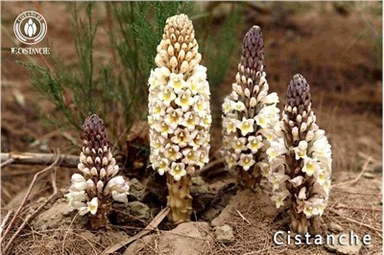
Cistanche tubulosa (Schenk) R. Wightเป็นไม้ล้มลุกยืนต้นในสกุล Cistanche ในวงศ์ Orobanchaceae เป็นยาจีนโบราณที่หายากและล้ำค่า มีถิ่นกำเนิดในซินเจียงและมองโกเลียใน มีรสหวาน เค็ม และอุ่น โดยธรรมชาติ และมีหน้าที่บำรุงไตหยาง, ประโยชน์แก่แก่นแท้และเลือดและทำให้ลำไส้ชุ่มชื้นและบรรเทาอาการท้องผูก- เป็นที่รู้จักกันในชื่อ "โสมทะเลทราย[1] การวิจัยสมัยใหม่พบว่าซิสตันเช ทูบูโลซาประกอบด้วยส่วนประกอบทางเคมีที่หลากหลายเช่นฟีนิลธานอยด์ไกลโคไซด์, อิริดอยด์ อีเทอร์ เทอร์พีนและไกลโคไซด์ ลิกแนนและไกลโคไซด์ของพวกมัน โอลิโกแซ็กคาไรด์เอสเทอร์ โพลีแซ็กคาไรด์ โพลิออล โอลิโกแซ็กคาไรด์ สเตอรอลและไกลโคไซด์ โมโนเทอร์พีนอยด์ไกลโคไซด์ น้ำตาล กรดอะมิโน และน้ำมันหอมระเหย [2,3]โดยเฉพาะสารประกอบไกลโคไซด์เป็นสารออกฤทธิ์ที่สำคัญที่สุด สารประกอบฟีนิลทานอยด์ไกลโคไซด์มีปริมาณสูงสุดในวัสดุยาดั้งเดิมและมีฤทธิ์ทางเภสัชวิทยาที่หลากหลาย เช่น การป้องกันระบบประสาทและการต่อต้านวัย [4] การสังเคราะห์ทางชีวภาพของสารประกอบไกลโคไซด์ที่กล่าวมาข้างต้นเกี่ยวข้องกับปฏิกิริยาไกลโคซิเลชันหลายขั้นตอน ซึ่งถูกเร่งปฏิกิริยาโดยไกลโคซิลทรานสเฟอเรสในพืชและการจัดหาผู้บริจาคไกลโคซิลที่ใช้งานอยู่เป็นสิ่งจำเป็นในกระบวนการนี้ ผู้บริจาคน้ำตาลที่ออกฤทธิ์ทั่วไปในสิ่งมีชีวิต ได้แก่ ยูริดีนไดฟอสเฟต (UDP), ไทมิดีนไดฟอสเฟต (TDP) และกัวโนซีนไดฟอสเฟต (GDP) ในหมู่พวกเขา UDP-กลูโคสเป็นผู้บริจาคไกลโคซิลที่พบมากที่สุดในพืช ไม่เพียงแต่สามารถรับรู้โดยตรงโดยกลูโคซิลทรานสเฟอเรสเพื่อกระตุ้นปฏิกิริยาการถ่ายโอนกลูโคซิล แต่ยังสามารถใช้เป็นสารตั้งต้นในการมีส่วนร่วมในการสังเคราะห์ผู้บริจาคไกลโคซิลประเภทอื่น ๆ ตัวอย่างเช่น UDP-กลูโคสสามารถใช้เป็นซับสเตรตเพื่อสร้าง UDP-แรมโนสภายใต้การเร่งปฏิกิริยาของ 4,6-ดีไฮดราเตส, 3,5-ไอโซเมอเรสและ 4-รีดักเตส[5]; UDP-กลูโคสสามารถใช้เป็นสารตั้งต้นเพื่อกระตุ้นการสังเคราะห์ UDP-xylose ผ่าน UDP-glucose dehydrogenase และ UDP-xylose synthase; UDP-xylose สามารถเร่งปฏิกิริยาเพิ่มเติมได้โดย UDP-xylose epimerase เพื่อสร้าง UDP-arabinose [6]; UDP-กลูโคสและ UDP-กาแลคโตสเป็นไดสเตอริโอเมอร์และสามารถแปลงเป็นกันและกันได้ผ่านเอพิเมอเรส[7,8] ดังนั้นการสังเคราะห์ UDP-กลูโคสจึงมีอิทธิพลสำคัญต่อการจัดหาผู้ให้ไกลโคซิลที่ออกฤทธิ์ในพืชและการดัดแปลงไกลโคซิเลชันของสารทุติยภูมิ
การสังเคราะห์ UDP-กลูโคสในพืชสามารถทำได้ผ่านวิถีทางซินเทส วิถีทางฟอสโฟรีเลส และวิถีไคเนส ซูโครสซินเทสสามารถกระตุ้นปฏิกิริยาระหว่าง UDP และซูโครสได้โดยตรงเพื่อสร้าง UDP-กลูโคสและฟรุกโตส เช่นเดียวกับปฏิกิริยาย้อนกลับ [9] ในความหมายกว้างๆ ซูโครสซินเทสอยู่ในวงศ์ย่อยไกลโคซิลทรานสเฟอเรส-4 ซึ่งรวมถึงไกลโคซิลทรานสเฟอเรสหลากหลายชนิด เช่น ฟอสฟาเตสการสังเคราะห์ซูโครส ทรีฮาโลส ซินเทส และทรีฮาโลส ฟอสโฟรีเลส [10] ซูโครสซินเทสถูกระบุครั้งแรกในจมูกข้าวสาลี [11] ตั้งแต่นั้นมา นักวิจัยได้ระบุยีนซูโครสซินเทสหลายร้อยยีนจากพืชหลากหลายชนิด เช่น ถั่วเขียว (Vigna radiata), ข้าว (Oryza sativa), ข้าวโพด (Zea mays), ถั่วเหลือง (Glycine max) และลูกพีช (Amygdalus persica) พวกมันมีส่วนร่วมในกระบวนการเมแทบอลิซึมหลายอย่างในพืช รวมถึงการขนส่งและการกระจายซูโครส การสังเคราะห์แป้ง การสังเคราะห์เซลลูโลสและองค์ประกอบของผนังเซลล์ ความเครียดจากสิ่งมีชีวิตและสิ่งมีชีวิต ฯลฯ และมีบทบาทสำคัญในการกำกับดูแลในการจัดสรรแหล่งคาร์บอนของพืช [12] นอกจากนี้ จากการศึกษาการทำงานทางสรีรวิทยา นักวิจัยยังใช้ซูโครสซินเทสที่ได้รับเป็นองค์ประกอบของยีนในการสังเคราะห์เอนไซม์ของสารประกอบไกลโคไซด์ และได้ผลลัพธ์ในอุดมคติ ตัวอย่างเช่น Masada และคณะ [13] ร่วมแสดงยีนซูโครสซินเทส AtSus-1 จาก Arabidopsis thaliana และยีน glycosyltransferase CaUGT2 จาก Catharanthus roseus ในหลอดทดลอง และใช้ระบบเอนไซม์คู่แบบหม้อเดียวเพื่อกระตุ้นปฏิกิริยาไกลโคซิเลชันของเคอร์คูมิน ซึ่งเพิ่ม ผลผลิตเคอร์คูมินไกลโคไซด์ 7 เท่า ในเวลาเดียวกัน ปริมาณของผู้บริจาค UDP-กลูโคสที่ใช้เป็นเพียงหนึ่งในสิบของจำนวนเงินเริ่มต้นเท่านั้น
บุญเรือง และคณะ [14] สร้างระบบเร่งปฏิกิริยาคู่โดยใช้ซูโครสซินเทส GmSuSy จากถั่วเหลืองและไกลโคซิลทรานสเฟอเรส OsUGT จากข้าว พวกเขาบรรลุการปรับเปลี่ยนไกลโคซิเลชันของโนโธฟาจินโดยการเติม UDP (1.{2}} มิลลิโมล·L-1) และซูโครสเพียงเล็กน้อย เมื่อเปรียบเทียบกับการเร่งปฏิกิริยาด้วยเอนไซม์เดี่ยวของ OsUGT การผลิตผลิตภัณฑ์ไกลโคซิเลชันเพิ่มขึ้นสามระดับจากขนาด μmol·L-1 ถึง mol·L-1
ความสมบูรณ์และความหลากหลายของสารประกอบไกลโคไซด์ใน Cistanche tubulosa แนะนำว่าควรมีซูโครสซินเทสที่มีประสิทธิภาพซึ่งเกี่ยวข้องกับการดัดแปลงไกลโคซิเลชันของสารทุติยภูมิ แต่ยังไม่มีรายงานเอนไซม์นี้ในพืชในสกุล Cistanche ในบทความนี้ มีการใช้ Cistanche tubulosa ซึ่งเป็นวัสดุยาที่รวมอยู่ในเภสัชตำรับเป็นวัสดุ ด้วยการวิเคราะห์ทรานสคริปโตมและการวิเคราะห์ทรานสคริปโตมเชิงเปรียบเทียบของส่วนต่างๆ เทคนิคอณูชีววิทยาถูกนำมาใช้ในการขุดและระบุยีนซูโครสซินเทส CtSus การวิเคราะห์ทางชีวสารสนเทศศาสตร์ การเปลี่ยนรูปทางชีวภาพทั้งเซลล์ การแสดงออกและการทำให้บริสุทธิ์ของโปรคาริโอต การวิเคราะห์กิจกรรมการเร่งปฏิกิริยาของเอนไซม์ ในหลอดทดลอง และการวิเคราะห์การแสดงออกของยีนในส่วนต่างๆ ของ Cistanche tubulosa และระบบเพาะเลี้ยงเนื้อเยื่อพืชภายใต้ความเครียดจากภัยแล้งได้ดำเนินการเพื่อสำรวจการทำงานของ CtSus และความสัมพันธ์ของมันกับ การสังเคราะห์ทางชีวภาพของสารประกอบไกลโคไซด์ใน Cistanche tubulosa ซึ่งเป็นการวางรากฐานสำหรับการศึกษาวิถีการสังเคราะห์ทางชีวภาพของสารประกอบไกลโคไซด์ใน Cistanche tubulosa
วัสดุและวิธีการ
วัสดุ พืช Cistanche tubulosa สดถูกรวบรวมจากเมือง Hotan ซินเจียง ประเทศจีน และทำการจำแนกทางชีวภาพโดยศาสตราจารย์ Tu Pengfei จากมหาวิทยาลัยปักกิ่ง ระบบเพาะเลี้ยงเซลล์แขวนลอย Cistanche tubulosa ก่อตั้งขึ้นโดยกลุ่มวิจัยของเราในระยะแรก [15]; ซื้อ E. coliFast-T1 จาก Nanjing Novozymes Biotech Co., Ltd.; ซื้อ E. coli BL21 (DE3) จาก Beijing Quanshijin Biotechnology Co., Ltd.; ซื้อเวกเตอร์ pCold™ I และ pCold™ TF จาก Bio-Tech (Beijing) Co., Ltd.; ซื้อการควบคุม UDP-กลูโคสจาก Xi'an Qiyue Biotechnology Co., Ltd. และซื้อซับสเตรต aesculin และ resveratrol จาก Shanghai Yuanye Biotechnology Co., Ltd.

DICHEN CISTANCHE ปลูกฝังฐานใน HOTAN, XINJIANG
การสกัด RNA และการสังเคราะห์ cDNA RNA ถูกสกัดตามคำแนะนำของ OMEGA RNA Plant Kit (Cat R6827-01, Omega Bio-Tek) มีการใช้ Agarose gel electrophoresis และ Nanodrop 2000 spectrophotometer เพื่อตรวจจับความบริสุทธิ์ ความเข้มข้น และความสมบูรณ์ของ RNA ตัวอย่าง RNA ที่ผ่านการรับรองถูกคัดลอกแบบย้อนกลับโดยใช้ชุดการถอดรหัสแบบย้อนกลับ TransScript® OneStep gDNA Removal และ cDNA Sification SuperMix (Cat AT311-02, Beijing Quanshijin Biotechnology Co., Ltd.) เพื่อสังเคราะห์สายโซ่แรกของ cDNA
การทำเหมืองยีนซูโครสซินเทสและการโคลนยีน CtSus ลำดับกรดอะมิโนของ Arabidopsis thaliana sucrose synthase AtSus1 ที่ระบุตามหน้าที่การใช้งาน (หมายเลขภาคยานุวัติของ GenBank: AED92894.1) [16] ถูกใช้เป็นเทมเพลต ยีนซูโครสซินเทสได้รับการคัดเลือกจากข้อมูลการถอดเสียงของ C. tubulosa โดยการจัดลำดับ Blastp ในพื้นที่รวมกับคำอธิบายประกอบของยีนการถอดเสียง, การวิเคราะห์ FPKM (ความอุดมสมบูรณ์ของการแสดงออกของยีน) และการวิเคราะห์ข้อมูลการถอดเสียงเชิงเปรียบเทียบ ไพรเมอร์เฉพาะได้รับการออกแบบตามข้อมูลลำดับยีนของผู้สมัครที่ได้รับจากข้อมูลการถอดเสียงรุ่นที่สองของ C. tubulosa (ตารางที่ 1) C. tubulosa cDNA ถูกใช้เป็นเทมเพลตและการขยาย PCR ของยีนเป้าหมายดำเนินการโดยใช้เอนไซม์ PCR ความเที่ยงตรงสูง (Cat P505-d1, Nanjing Novozymes Biotech Co., Ltd.) ผลิตภัณฑ์ขยายสัญญาณ PCR ได้รับการทำให้บริสุทธิ์โดยใช้ FastPure Gel DNA Extraction Mini Kit (Cat DC201-01, Nanjing Novozymes Biotech Co., Ltd.) จากนั้นจึงทำการโคลนตามชุดการโคลนนิ่งแบบเร็ว (Cat C112-01 Nanjing Novogene Biotech Co., Ltd.) เชื่อมต่อกับเวกเตอร์การโคลน pCE2 TA/Blunt-Zero ตามคู่มือการใช้งาน ถ่ายโอนไปยังเซลล์ที่มีความสามารถ Fast-T1 และเพาะเลี้ยงข้ามคืนที่ 37 องศา พลาสมิดถูกสกัดและส่งไปยัง Beijing Liuhe BGI Genomics Co., Ltd. เพื่อระบุลำดับ
ตารางที่ 1 ลำดับนิวคลีโอไทด์ของไพรเมอร์ที่ใช้ในการศึกษานี้ qPCR: ปฏิกิริยาเชิงปริมาณ-พอลิเมอเรสเชนแบบเรียลไทม์

การวิเคราะห์ทางชีวสารสนเทศของซูโครสซินเทส CtSus จาก Cistanche tubulosa
ซอฟต์แวร์ออนไลน์ ProtParam (//web.expasy.org/protparam/) ถูกนำมาใช้ในการวิเคราะห์คุณสมบัติทางเคมีฟิสิกส์ของโปรตีน ซอฟต์แวร์ออนไลน์ TMHMM (//services.healthtech.dtu.dk/services/TMHMM {{0}}.0/) ถูกนำมาใช้เพื่อทำนายโครงสร้างเมมเบรนของโปรตีน ซอฟต์แวร์ออนไลน์ SOPMA (https://npsa-rabi.ibcp.fr/cgi-bin/npsa_automat.pl?page=npsa_sopma.html) ถูกนำมาใช้เพื่อ ทำนายโครงสร้างรองของโปรตีน ซอฟต์แวร์ออนไลน์ SMART (//smart.embl.de/) ใช้เพื่อทำนายโดเมนอนุรักษ์ของลำดับกรดอะมิโนโปรตีน ซอฟต์แวร์ DANMAN ใช้เพื่อเปรียบเทียบลำดับกรดอะมิโนของ CtSus กับลำดับของการสังเคราะห์ซูโครสจากสายพันธุ์อื่น ต้นไม้สายวิวัฒนาการถูกสร้างขึ้นโดยการวิเคราะห์คลัสเตอร์โดยใช้วิธีการรวมเพื่อนบ้านโดยใช้ซอฟต์แวร์ MEGA11 โดยมีการบูตสแตรปซ้ำ 1,000 ครั้ง
การวิเคราะห์การแสดงออกของ CtSus ในส่วนต่างๆ ของ Cistanche tubulosa และภายใต้ความเครียดจากภัยแล้ง
ไพรเมอร์ PCR เชิงปริมาณเรืองแสงแบบเรียลไทม์สำหรับ CtSus และยีนอ้างอิงภายใน DNAj ได้รับการออกแบบโดยใช้ซอฟต์แวร์ DNAMAN [17] (ตารางที่ 1) ระดับการแสดงออกสัมพัทธ์ของยีน CtSus ในเซลล์แขวนลอยของ Cistanche tubulosa ในส่วนต่างๆ ของ Cistanche tubulosa และภายใต้ความเครียดจากภัยแล้งได้รับการวิเคราะห์โดย PCR เชิงปริมาณเรืองแสงแบบเรียลไทม์ การวิเคราะห์ PCR เชิงปริมาณเรืองแสงแบบเรียลไทม์ดำเนินการโดยใช้ชุด TransStart® Top Green qPCR SuperMix (Cat AQ131-01, Beijing Quanshijin Biotechnology Co., Ltd.) โปรแกรมขยายเสียงใช้วิธีการสองขั้นตอน: 94 องศาเป็นเวลา 30 วินาที; 94 องศาเป็นเวลา 5 วินาที, 60 องศาเป็นเวลา 30 วินาที, ทำซ้ำเป็นเวลา 40 รอบ; ทำงานบนระบบตรวจจับ PCR แบบเรียลไทม์ Bio-Rad CFX Connect™ (ห้องปฏิบัติการ Bio-Rad, Hercules, CA, USA) ใช้วิธี 2 – ΔΔCTเพื่อวิเคราะห์การแสดงออกสัมพัทธ์ของยีน CtSus ในกลุ่มการทดลองต่างๆ GraphPadPrism 9 ใช้สำหรับการวิเคราะห์นัยสำคัญและวาดกราฟแท่ง
การสร้างเวกเตอร์การแสดงออกของโปรคาริโอตและการแสดงออกที่แตกต่างกันของยีน CtSus จากผลการจัดลำดับยีน ไพรเมอร์เฉพาะที่มีแขนที่คล้ายคลึงกันของเวกเตอร์และไซต์จำกัด (ตารางที่ 1) ได้รับการออกแบบมาเพื่อการขยาย PCR ยีนเป้าหมาย CtSus ถูกสร้างขึ้นเป็นเวกเตอร์การแสดงออก pET-28a, pET-24b, pCold™ I และ pCold™ TF โดยใช้เทคโนโลยีการโคลนนิ่งที่ไร้รอยต่อโดยใช้ ClonExpress Ultra One Step Cloning Kit (CatC115-01 , หนานจิง โนโวจีน ไบโอเทค บจก.) พลาสมิดของเวกเตอร์การแสดงออกรีคอมบิแนนท์ที่สร้างขึ้นสำเร็จถูกสกัดและแปลงร่างเป็นเซลล์ที่มีความสามารถในการแสดงออกของ Escherichia coli Transetta (DE3) เซลล์ถูกเพาะเลี้ยงในตัวกลางของเหลว LB ที่มีคานามัยซิน ซัลเฟต 50 µg·mL-1 (โดยมี pET-28a และ pET-24b เป็นเวกเตอร์สำหรับการแสดงออก) หรือ 1{{ 22}}0 µg·mL-1 แอมพิซิลิน (โดยมี pCold™ I และ pCold™ TF เป็นเวกเตอร์การแสดงออก) และ 50 ug·mL-1 คลอแรมเฟนิคอล ตามลำดับ ที่ 37 องศา และ 200 r·นาที{{ 15}} โดยเขย่าจนกระทั่งค่า A600 ของสารละลายแบคทีเรียถึง 0.4-0.6 เติม isopropyl-beta-Dthiogalactopyranoside (IPTG) ที่ความเข้มข้นสุดท้าย 0.5 มิลลิโมล·ลิตร-1 เพื่อกระตุ้นการแสดงออกของโปรตีน บ่มในเครื่องเขย่าอุณหภูมิคงที่ที่ 23 องศา (โดยมี pET-28a และ pET-24b เป็นเวกเตอร์การแสดงออก) หรือ 15 องศา (โดยมี pCold™ I และ pCold™ TF เป็นเวกเตอร์การแสดงออก) 180 r· ต่ำสุด-1 เป็นเวลา 16 ชั่วโมง (โดยมี pET28a และ pET-24b เป็นเวกเตอร์การแสดงออก) หรือ 24 ชั่วโมง (โดยมี pCold™ I และ pCold™ TF เป็นเวกเตอร์การแสดงออก) จากนั้นรวบรวมแบคทีเรียโดยการหมุนเหวี่ยง
บัฟเฟอร์สลาย (20 มิลลิโมล·L-1 NaH2PO4-Na2HPO4, 0.5 โมล·L-1 NaCl, 20 มิลลิโมล·L{{10} } อิมิดาโซล, กลีเซอรอล 3%, ฟีนิลเมทิลซัลโฟนิล ฟลูออไรด์ 100 มิลลิโมล·L-1, ไลโซไซม์ 1 มก.·มิลลิลิตร-1, pH 7.4) ถูกเติมเข้าไป และเซลล์ถูกทำลายเป็นเวลา 8 นาทีและปั่นเหวี่ยง ส่วนลอยเหนือตะกอนและตะกอนถูกนำมาใช้ตามลำดับ ส่วนลอยเหนือตะกอนถูกดูดซับโดยคอลัมน์สัมพรรคภาพ HisTrap FF (Cat 17531901, Cytiva) ที่เต็มไปด้วยสารตัวเติม Ni Sepharose 6 Fast Flow เพื่อดูดซับโปรตีนเป้าหมายที่มีแท็ก His หลังจากการชะด้วยอิมิดาโซลที่มีความเข้มข้นต่างกัน แต่ละเศษส่วนจะถูกนำไปตรวจหา SDS-PAGE (โซเดียมโดเดซิลซัลเฟต-โพลีอะคริลาไมด์เจลอิเล็กโตรโฟรีซิส) เศษส่วนที่มีโปรตีนเป้าหมายถูกนำมารวมกัน ทำให้เข้มข้นโดยการปั่นเหวี่ยงและแยกเกลือออกด้วยหลอดอัลตราฟิลเตรชัน (มิลลิพอร์) และเก็บไว้ในบัฟเฟอร์ [ที่มี 50 มิลลิโมล·L-1 Tris-HCl (pH 7.5), 0.2 โมล·ลิตร{{ 30}}NaCl, 1 มิลลิโมล·L-1 ไดไทโอไทรอิทอล, กลีเซอรอล 3%] สำหรับปฏิกิริยาเร่งปฏิกิริยาของเอนไซม์ ในหลอดทดลอง ในเวลาต่อมา
การเร่งปฏิกิริยาทั้งเซลล์ของ CtSus พลาสมิด pCold™ I-CtSus และพลาสมิดการแสดงออก pET-28a-UGT71BD1[18] ของไกลโคซิลทรานสเฟอเรส UGT71BD1 ซึ่งได้รับการระบุโดยกลุ่มวิจัยก่อนหน้านี้ ได้รับการเปลี่ยนให้เป็นการแสดงออกที่มีความสามารถไปพร้อมๆ กัน อี. โคไล ทรานเซตตา (DE3) แบคทีเรียรีคอมบิแนนท์เชิงบวกที่มีทั้งยีน CtSus และ UGT71BD1 ถูกเลือกและปลูกเชื้อไปในตัวกลาง LB (ตัวกลางการเจริญเติบโต) ที่มีคานามัยซินซัลเฟต 50 ไมโครลิตร-1 ซัลเฟต 100 ไมโครกรัม ·มิลลิลิตร-1 แอมพิซิลินและ 50 ไมโครกรัม·มิลลิลิตร{-1 คลอแรมเฟนิคอลที่อัตราส่วน 1:100 (V/V) เพาะเลี้ยงที่ 37 องศาจนกระทั่งค่า A600 ของสารละลายแบคทีเรียเป็น 0.4-0.6 และจากนั้น IPTG ถูกเติมที่ความเข้มข้นสุดท้ายที่ 1 มิลลิโมล·ลิตร-1 เพาะเลี้ยงต่อที่ 15 องศาและ 180 r·นาที-1 เป็นเวลา 24 ชั่วโมง การเพาะเลี้ยงถูกหมุนเหวี่ยงที่ 4 องศาและ 4 000 r·นาที-1 รวบรวมเซลล์ ปลูกเซลล์ที่รวบรวมไว้ในอาหารเลี้ยงเชื้อ M9 (อาหารหมัก) ในอัตราส่วนอาหารเลี้ยงเชื้อ 40 มล. ต่อแบคทีเรีย 1 กรัม และเติมซูโครส 75 μmol·L-1 และเอสคูเลติน 25 μmol·L-1 (1) หรือสารตั้งต้นเรสเวอราทรอล (2) ให้กับกลุ่มปฏิกิริยา เขย่าวัฒนธรรมต่อไปเป็นเวลา 24 ชั่วโมง ปั่นแยกที่ 4000 × g 4 องศาเป็นเวลา 30 นาที เติมเมทานอลเพื่อทำลายตะกอนด้วยอัลตราโซนิก เติมปริมาตรของเมธานอล 2 เท่าลงในส่วนลอยเหนือตะกอน หมุนเหวี่ยงที่ 4000 × g 4 องศา เป็นเวลา 30 นาที นำส่วนลอยเหนือตะกอนมารวมกัน ระเหยตัวทำละลายภายใต้ความดันที่ลดลง ละลายอีกครั้งในเมทานอล กรองผ่านเมมเบรนกรอง 0.22 μm และตรวจจับผลิตภัณฑ์ที่เกิดปฏิกิริยาโดยใช้โครมาโตกราฟีของเหลวประสิทธิภาพสูง Agilent 1260 คอลัมน์ CAPCELL PAK C18 (250 มม.×4.6 มม., 5 ไมโครเมตร) ถูกใช้เป็นคอลัมน์การวิเคราะห์, น้ำกรดฟอร์มิก 0.1% (A) และเมทานอล (B) ถูกใช้เป็นเฟสเคลื่อนที่ และการไล่ระดับของการชะคือ: {{61 }} นาที 30%-90% B; 25-27 นาที 90%-100% B; 27-33 นาที, 100% B พารามิเตอร์แมสสเปกโตรเมทรีคือโหมดไอออนบวกและลบ และการสแกนแบบเต็มอัตโนมัติแบบหลายขั้นตอน MS1, MS2 และ MS3

การตรวจหากิจกรรมการเร่งปฏิกิริยาของเอนไซม์ CtSus ในหลอดทดลอง โปรตีนรีคอมบิแนนท์ที่ได้รับจากโครมาโตกราฟีความสัมพันธ์ของคอลัมน์ HisTrap FF ที่กล่าวมาข้างต้น จะถูกกำจัดแท็กเทอร์มินัลโดยใช้ Factor Xa ระบบย่อยของเอนไซม์เป็นดังนี้: รีคอมบิแนนท์โปรตีนถูกปรับไปที่ความเข้มข้น 1 มก.·มล.-1 และแฟกเตอร์ Xa 1 ไมโครลิตรถูกเติมลงในโปรตีนรีคอมบิแนนท์ 50 ไมโครลิตรในบัฟเฟอร์ของ 20 มิลลิโมล·L-1 Tris-HCl (pH 8.0), 100 มิลลิโมล·L{-1 NaCl และ 2 มิลลิโมล·L-1
CaCl2 ที่ 23 องศา เป็นเวลา 6 ชั่วโมง ระบบปฏิกิริยาคือ 100 ไมโครลิตร ผลิตภัณฑ์ของระบบการย่อยด้วยเอนไซม์ต้องผ่านการแยกโปรตีนทุติยภูมิโดย HisTrap FF affinity chromatography เพื่อให้ได้โปรตีนเป้าหมายพร้อมการกำจัดแท็กสำหรับปฏิกิริยาเร่งปฏิกิริยาของเอนไซม์ ในหลอดทดลอง ในภายหลัง ระบบปฏิกิริยาของเอนไซม์มีดังนี้: 10 มิลลิโมล·L-1 UDP, 100 มิลลิโมล·L-1 ซูโครส, 50 มิลลิโมล·L-1 MgCl2, โปรตีน 60 ไมโครกรัม CtSus, Tris-HCl (pH 7.0) เสริมด้วย 100 ไมโครลิตร ทำปฏิกิริยาในอ่างน้ำที่ 30 องศาเป็นเวลา 6 ชั่วโมง และวิธีการหลังการบำบัดและการวิเคราะห์ HPLC ถูกดำเนินการตามที่อธิบายไว้ในข้อมูลอ้างอิง [19]
การทำนายโครงสร้างสามมิติและการวิเคราะห์การเชื่อมต่อระดับโมเลกุลของโปรตีน CtSus AlphaFold2 ถูกนำมาใช้เพื่อทำนายโครงสร้างสามมิติของโปรตีน CtSus [20] โมเลกุลลิแกนด์ถูกเติมไฮโดรเจนและชาร์จโดยใช้ซอฟต์แวร์ AutoDock Tools 1.5.6 ช่องการจับซับสเตรตได้มาโดยการจัดตำแหน่งกับโปรตีนเทมเพลต AtSus1 (PDBID 3S28) สายโซ่ด้านข้างของเรซิดิวกรดอะมิโนรอบๆ ช่องถูกกำหนดให้มีความยืดหยุ่น
กล่องกริดถูกตั้งค่าเป็น 40 × 40 × 40 Å3 และระยะห่างของกริดคือ 0.375 Å การทำการเชื่อมต่อระดับโมเลกุลใน AutoDock Vina [21] ซอฟต์แวร์ PyMOL 2.0 ถูกใช้เพื่อแสดงภาพโมเดลด้วยความสัมพันธ์ที่ดีที่สุด (kcat·mol-1
).

การวิเคราะห์ทางสถิติ GraphPad Prism 9 ใช้สำหรับการวิเคราะห์ทางสถิติ ข้อมูลการทดลองแสดงเป็นค่าเฉลี่ย ± ส่วนเบี่ยงเบนมาตรฐาน การทดสอบทีใช้สำหรับการเปรียบเทียบระหว่างสองกลุ่ม และใช้การวิเคราะห์ความแปรปรวนทางเดียวเพื่อการเปรียบเทียบระหว่างหลายกลุ่ม ความแตกต่างถูกพิจารณาว่ามีนัยสำคัญทางสถิติเมื่อ P < 0.05