การรวมหน่วยความจำเฉพาะประเภทเซลล์ที่ขับเคลื่อนโดยการควบคุมการแปล
Apr 17, 2023
กลุ่มของ Dr. Sonenberg มีส่วนสำคัญในการทำความเข้าใจเกี่ยวกับการควบคุมการแปลในการเรียนรู้และความจำ ในบทความ Nature เมื่อเร็ว ๆ นี้ พวกเขารายงานเพิ่มเติมเกี่ยวกับการควบคุมการแปลเฉพาะประเภทเซลล์ที่อยู่ภายใต้การรวมหน่วยความจำ 1 ศักยภาพระยะยาว (LTP) ได้รับการยอมรับอย่างกว้างขวางว่าเป็นหนึ่งในแบบจำลองหลักของการเรียนรู้และหน่วยความจำของเซลล์
คลิกเพื่อcistanche งose สำหรับการปรับปรุงหน่วยความจำ
โดยทั่วไปแล้ว LTP มีสององค์ประกอบที่ขับเคลื่อนโดยการกระตุ้นและกลไกที่แตกต่างกัน ช่วงแรกของ LTP (E-LTP) และความจำระยะสั้น (STM) จะเกิดขึ้นในช่วงเวลาสั้น ๆ และเกิดขึ้นชั่วคราว อาศัยการดัดแปลงโปรตีนที่มีอยู่ก่อนเป็นหลัก ช่วงท้ายของ LTP (L-LTP) และความจำระยะยาวที่ตามมา (LTM) ถูกกระตุ้นโดยการกระตุ้นที่รุนแรงและซ้ำๆ และคงอยู่ได้นาน โดยต้องมีการสังเคราะห์โปรตีนใหม่2
การลดเกณฑ์สำหรับการเหนี่ยวนำ LTP สามารถอำนวยความสะดวกในการเปลี่ยนจาก E-LTP เป็น L-LTP และนำไปสู่การรวมหน่วยความจำ ดังนั้น การถอดรหัสเครื่องจักรระดับโมเลกุลเฉพาะที่ขับเคลื่อนการก่อตัวของ LLTP จึงเป็นสิ่งจำเป็นสำหรับการทำความเข้าใจการเรียนรู้และความจำ ก่อนหน้านี้ กลุ่มของ Dr. Sonenberg ค้นพบว่าปัจจัยการเริ่มต้นยูคาริโอต 2 (eIF2) ซึ่งเป็นตัวควบคุมหลักของการสังเคราะห์โปรตีน เป็นการสลับระดับโมเลกุลระหว่าง STM และ LTM3
ในฉบับล่าสุดของ Nature ที่ชื่อว่า "eIF2 ควบคุมการรวมหน่วยความจำผ่านเซลล์ประสาท excitatory และ somatostatin" กลุ่มเดียวกันได้อธิบายเพิ่มเติมเกี่ยวกับกลไกเฉพาะประเภทเซลล์ของการรวมหน่วยความจำที่ขับเคลื่อนโดย eIF2.1 eIF2 เป็นองค์ประกอบ phosphorylatable ของ eIF2 ternary complex ซึ่งขับเคลื่อนการเริ่มต้นการแปล
ในยูคาริโอตที่สูงขึ้น หน่วยย่อย eIF2 สามารถถูกสร้างฟอสโฟรีเลตโดยไคเนสสี่ตัวภายใต้การตอบสนองต่อความเครียดในตัว (ISR) ได้แก่ PERK, PKR, HRI และ GCN2 (รูปที่ 1a) Phosphorylated eIF2 (p-eIF2 ) ที่ Ser51 ยับยั้งการแปลทั่วไปอย่างมาก ในขณะที่ควบคุมชุดย่อยของ mRNAs อย่างขัดแย้งกับเฟรมการอ่านแบบเปิดต้นน้ำ เช่น Atf4
ในทางกลับกัน ฟอสฟาเตสเช่นคอมเพล็กซ์ GADD34/PP1c และ CReP/PP1c สามารถกำจัดฟอสโฟรีเลต eIF2 ได้ 4 การเรียนรู้สามารถลดระดับ p-eIF2 ได้ โดยอาจผ่านแบบจำลองกลไกที่เกี่ยวข้องกับการควบคุมกิจกรรมไคเนส เช่น GCN2 ซึ่งเป็นไคเนส eIF2 หลักในสมอง (รูปที่ 1a) การวิจัยโดยใช้ GCN2−/− หนูแสดงการถอดความของยีนที่เพิ่มขึ้นและ L-LTP ที่ปรับปรุงแล้ว ซึ่งนำไปสู่ LTM หลังจากดำเนินการฝึกที่อ่อนแอ

ในระหว่างกระบวนการเรียนรู้ โดยการลด GCN2 และตามมาด้วยการลด p-eIF2 อาจมีการยับยั้งการถอดรหัสยีนที่ขึ้นกับ CREB น้อยลง อำนวยความสะดวก L-LTP และส่งผลให้เกิดการรวมหน่วยความจำ 5 สอดคล้องกับแนวคิดที่ว่า L-LTP ขึ้นอยู่กับโปรตีนใหม่ การสังเคราะห์ และ p-eIF2 นั้นยับยั้งการแปล กลุ่มของ Dr. Sonenberg ยังพบอีกว่า p-eIF2 ทำให้ LTM ด้อยลง ในทางตรงกันข้าม การยับยั้ง p-eIF2 ช่วยเพิ่ม LTM,3 ซึ่งโต้แย้งว่า eIF2 เป็นสวิตช์ระดับโมเลกุลสำหรับหน่วยความจำ
อย่างไรก็ตาม หนูที่มีการกลายพันธุ์ Eif2a แบบโฮโมไซกัสที่ไม่ใช่ฟอสโฟรีลาเทเบิล Ser51Ala เสียชีวิตภายใน 1 วันหลังคลอด3 ดังนั้นจึงจำเป็นอย่างยิ่งที่จะต้องกำหนดเป้าหมาย p-eIF2 โดยเฉพาะเพื่อหลีกเลี่ยงผลข้างเคียงที่ไม่พึงประสงค์ ในบทความเกี่ยวกับธรรมชาติเมื่อเร็วๆ นี้ ชาร์มาและคณะ เปิดเผยว่า eIF2 อำนวยความสะดวกในการรวมหน่วยความจำ โดยเฉพาะอย่างยิ่งใน excitatory neurons และ somatostatin (SST) ที่แสดงเซลล์ประสาทยับยั้ง1
ในตอนต้นของบทความนี้ ผู้เขียนพบว่า p-eIF2 ลดลงโดยการเรียนรู้แบบแอคทีฟในลักษณะเฉพาะประเภทเซลล์ ซึ่งเกิดขึ้นในเซลล์ประสาทยับยั้ง excitatory และ SST-expressing ดังนั้นพวกเขาจึงทดสอบสมมติฐานที่ว่า eIF2 ควบคุมการรวมหน่วยความจำผ่านการควบคุมการแปลใน excitatory และ SST บวกกับเซลล์ประสาทที่ยับยั้งผ่านการกำจัด p-eIF2 เฉพาะประเภทเซลล์
เพื่อให้ได้การกำจัด peIF2 อย่างมีประสิทธิภาพโดยไม่ทำให้เสียชีวิต การศึกษานี้ใช้หนูดัดแปรพันธุกรรมที่มี Ser กลายพันธุ์ Eif2a ชนิดไม่มีฟอสโฟรีเลตแบบโฮโมไซกัส 51- Ala และทรานส์ยีน Eif2a ชนิดป่าที่ขนาบข้างด้วยไซต์ lox (Eif2aA/ A fTg plus ) โดยการผสมข้าม Eif2aA/AfTg บวกกับหนูที่มีหนูที่แสดงออก Cre ต่างกัน p-eIF2 ถูกกำจัดอย่างเลือกในเซลล์ประสาทกระตุ้น (ในหนู Eif2a cKICamk2a), เซลล์ประสาทที่ยับยั้ง (ในหนู Eif2a cKIGad2), SST บวกเซลล์ประสาทที่ยับยั้ง (ในหนู Eif2a cKISst), และพาร์วาลบูมิน (PVALB บวก ) เซลล์ประสาทยับยั้ง (ในหนู Eif2a cKIPvalb) ตามลำดับ
ผู้เขียนได้ตรวจสอบผลกระทบของการกำจัด p-eIF2 ต่อการรวมหน่วยความจำในเซลล์ประสาทกระตุ้น แม้ว่า STM จะไม่ได้รับผลกระทบที่ระดับพฤติกรรม แต่ LTM ได้รับการปรับปรุงอย่างมากในหนู Eif2a cKICamk2a การทดลองเพื่อยืนยันโดยฉีด AAV9-Camk2a-Cre เข้าไปในฮิปโปแคมปีของ Eif2aA/AfTg และหนู ยังได้ปรับปรุง LTM
การวิจัยก่อนหน้านี้แสดงให้เห็นว่า p-eIF2 ยับยั้งการสังเคราะห์โปรตีนที่ระดับการแปล4 ตามที่คาดไว้ การกำจัด p-eIF2 ในเซลล์ประสาทกระตุ้นเพิ่มการสังเคราะห์โปรตีนและส่งผลให้มีรูปแบบการแปลที่คล้ายคลึงกันในกระบวนการเรียนรู้ การสังเคราะห์โปรตีนเป็นข้อกำหนดเบื้องต้นสำหรับ L-LTP ซึ่งเป็นกลไกสมมุติฐานของ LTM

สอดคล้องกับการค้นพบก่อนหน้านี้ที่ p-eIF2 บั่นทอน L-LTP, 3 p-eIF2 กำจัดในเซลล์ประสาทกระตุ้น excitatory อินพุต excitatory ที่เพิ่มขึ้นในขณะที่ลดอินพุตยับยั้ง อำนวยความสะดวกในการเปลี่ยนจาก E-LTP เป็น L-LTP ผลรวมจากสามด้านข้างต้นแสดงให้เห็นว่าการกำจัด p-eIF2 ในเซลล์ประสาทกระตุ้นช่วยเพิ่มการแปลโปรตีนที่อยู่ภายใต้การเหนี่ยวนำของ L-LTP ดังนั้นจึงช่วยอำนวยความสะดวกในการรวม LTM (รูปที่ 1b)
เมื่อใช้วิธีการที่คล้ายกัน ผู้เขียนได้ตรวจสอบเพิ่มเติมถึงผลกระทบของการกำจัด p-eIF2 ในเซลล์ประสาทที่ยับยั้ง พวกเขาพบว่าการระเหยของ p-eIF2 ในเซลล์ประสาทที่ยับยั้ง (ในหนู Eif2a cKIGad2) หรือเซลล์ประสาทที่ยับยั้ง SST บวก (ในหนู Eif2a cKISst) ช่วยอำนวยความสะดวกในการรวมหน่วยความจำอย่างมีนัยสำคัญ
นอกจากนี้ พวกเขาเปิดเผยผ่านการทดลองทางสรีรวิทยาทางไฟฟ้าว่าการกำจัด p-eIF2 ใน SST บวกกับเซลล์ประสาทที่ยับยั้งอาจส่งเสริมการรวมหน่วยความจำโดยสองกลไก: การยับยั้งเซลล์ประสาทกระตุ้น ซึ่งช่วยอำนวยความสะดวกในการเหนี่ยวนำ LTP และการปราบปรามอินพุตจากคอร์เทกซ์เอนโทรฮินอล แม้ว่าการกำจัด p-eIF2 ใน PVALB บวกกับเซลล์ประสาทที่ยับยั้งยังปรับปรุงการแปลโปรตีนทั่วไป แต่ก็ไม่ส่งผลต่อ LTP หรือ LTM
โดยรวมแล้ว นี่เป็นการศึกษาครั้งแรกที่ถอดรหัสกลไกเฉพาะประเภทเซลล์ของการรวมหน่วยความจำที่ควบคุมโดย eIF2 phosphorylation การแปลทั่วไปที่ได้รับการปรับปรุงในเซลล์ประสาทกระตุ้นช่วยอำนวยความสะดวกในการแสดงออกของ L-LTP ในขณะที่การเปลี่ยนแปลงใน SST บวกกับเซลล์ประสาทที่ยับยั้งจะส่งเสริมหน่วยความจำในระดับวงจร

เซลล์ประสาททั้งสองประเภทนี้อาจทำงานร่วมกันเพื่ออำนวยความสะดวกในการรวมหน่วยความจำ (รูปที่ 1b) นอกจากนี้ eIF2 phosphorylation ยังเกิดขึ้นในสภาวะความเครียดและความผิดปกติทางระบบประสาทต่างๆ ดังนั้น การทำความเข้าใจเพิ่มเติมเกี่ยวกับการแสดงออกเฉพาะประเภทเซลล์ระหว่างการเรียนรู้และความจำอาจส่งผลทางคลินิกได้ ตัวอย่างเช่น p-eIF2 และไคเนสที่ตอบสนองต่อความเครียดสามตัว (PKR, PERK, GCN2) ถูกเปิดใช้งานในโรคอัลไซเมอร์ เนื่องจากการตอบสนองของโปรตีนที่ไม่ถูกกระตุ้นโดยมวลรวม A และ tau oligomers4
p-eIF2 ที่เพิ่มขึ้นอาจทำให้สูญเสียความจำมากขึ้น ก่อตัวเป็นวงจรอุบาทว์ อย่างไรก็ตาม ฟอสโฟรีเลชั่นของ eIF2 เป็นกระบวนการแบบไดนามิกที่สามารถย้อนกลับได้ด้วยการเรียนรู้แบบแอคทีฟ (รูปที่ 1a) มันเกี่ยวข้องกับวงจรการเรียนรู้และความจำในเชิงบวก: ในแง่หนึ่ง การเรียนรู้ต่อตนเองส่งเสริมการก่อตัวของ LTM; ในทางกลับกัน ในทางกลไก การเรียนรู้จะลด p-eIF2 ทำให้รวม LTM ได้ง่ายขึ้น การศึกษานี้บ่งชี้ว่าการควบคุมการแปลเฉพาะประเภทเซลล์โดย eIF2 phosphorylation เป็นพื้นฐานของการรวมหน่วยความจำ
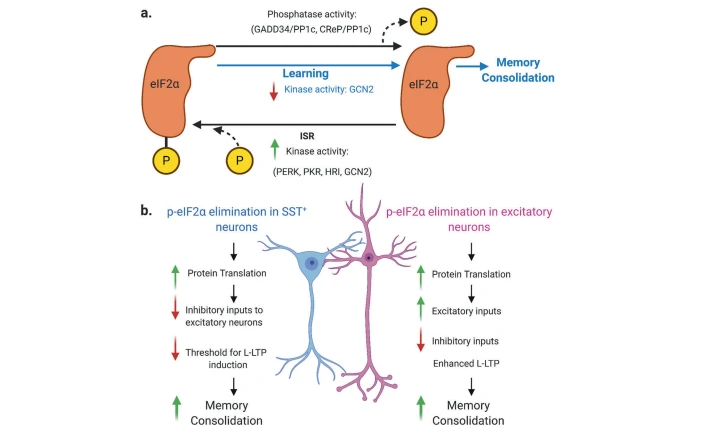
รูปที่ 1 บทบาทของ eIF2 phosphorylation ในการรวมหน่วยความจำ ไคเนส PERK, PKR, HRI และ GCN2 สามารถ phosphorylate eIF2 ในระหว่างการตอบสนองต่อความเครียดในตัว (ISR); ในขณะที่กิจกรรมฟอสฟาเตสของคอมเพล็กซ์ GADD34/PP1c และ CReP/PP1c ทำให้เกิดภาวะฟอสโฟรีเลชั่น การเรียนรู้สามารถลด eIF2 phosphorylation ซึ่งนำไปสู่การแปลโปรตีนทั่วไปที่เพิ่มขึ้นและอำนวยความสะดวกในการรวมหน่วยความจำ การปรับกิจกรรมไคเนส เช่น การลดกิจกรรม GCN2 เป็นกลไกหนึ่งที่เสนออยู่เบื้องหลังการลด p-eIF2 ที่เกี่ยวข้องกับการเรียนรู้ 5 b การกำจัด phosphorylated eIF2 (p-eIF2) ในเซลล์ประสาท somatostatin (SST) และเซลล์ประสาท excitatory นำไปสู่การรวมหน่วยความจำผ่านเส้นทางอิสระที่แตกต่างกัน ใน SST บวกเซลล์ประสาท การระเหยของ p-eIF2 ส่งผลให้เกิดการแปลโปรตีนทั่วไปเพิ่มขึ้น สัญญาณการยับยั้งน้อยลงไปยังเซลล์ประสาทเสี้ยมของฮิบโปแคมปัส ซึ่งสามารถลดเกณฑ์ที่จำเป็นสำหรับการเหนี่ยวนำ L-LTP ซึ่งนำไปสู่การเพิ่มหน่วยความจำระยะยาวในที่สุด การระเหยของ p-eIF2 ในเซลล์ประสาทกระตุ้นของฮิปโปแคมปัสยังช่วยเพิ่มการแปลโปรตีน ส่งผลให้อินพุตกระตุ้นเพิ่มขึ้นและสารยับยั้งลดลง ซึ่งช่วยเพิ่ม L-LTP และนำไปสู่การรวมหน่วยความจำ ภาพที่สร้างด้วย Biorender.com
Cistanche ช่วยเพิ่มความจำได้อย่างไร?
Cistanche เป็นอาหารเสริมสมุนไพรที่ใช้กันทั่วไปในการแพทย์แผนจีนเพื่อส่งเสริมสุขภาพโดยรวมและพลานามัย รวมถึงการทำงานของสมอง การศึกษาพบว่า Cistanche มีสารประกอบที่อาจช่วยปรับปรุงความจำและการทำงานของสมองโดยเพิ่มการไหลเวียนของเลือดและออกซิเจนไปเลี้ยงสมอง ลดการอักเสบ และปกป้องเซลล์สมองจากความเสียหายที่เกิดจากอนุมูลอิสระ
นอกจากนี้ Cistanche ยังอุดมไปด้วยสารต้านอนุมูลอิสระ ซึ่งสามารถช่วยลดความเครียดจากอนุมูลอิสระและปรับปรุงการทำงานของสมอง สารต้านอนุมูลอิสระช่วยต่อต้านอนุมูลอิสระและโมเลกุลที่ไม่เสถียรซึ่งอาจทำให้เยื่อหุ้มเซลล์และโครงสร้างอื่น ๆ ในสมองเสียหายได้ โดยรวมแล้ว ยังไม่เข้าใจกลไกที่แน่นอนซึ่ง Cistanche ช่วยเพิ่มความจำ แต่เชื่อกันว่าเป็นเพราะความสามารถในการเสริมสร้างสุขภาพและการทำงานของสมอง
Rอ้างอิง
1. Sharma, V. และคณะ eIF2 ควบคุมการรวมหน่วยความจำผ่านเซลล์ประสาท excitatory และ somatostatin ธรรมชาติ 586, 412–416 (2020)
2. Kandel, ER อณูชีววิทยาของหน่วยเก็บข้อมูลหน่วยความจำ: บทสนทนาระหว่างยีนและไซแนปส์ วิทยาศาสตร์ 294, 1030–1038 (2544)
3. Costa-Mattioli, M. et al. eIF2 phosphorylation ควบคุมการเปลี่ยนจากพลาสติกและหน่วยความจำ synaptic ในระยะสั้นเป็นระยะยาว เซลล์ 129, 195–206 (2550)
4. Moon, SL, Sonenberg, N. & Parker, R. การควบคุมการทำงานของระบบประสาท eIF2 ในสุขภาพและความผิดปกติทางระบบประสาท เทรนด์โมล ยา 24, 575–589 (2018).
5. Costa-Mattioli, M. et al. การควบคุมการแปลของฮิปโปแคมปัส synaptic พลาสติกและหน่วยความจำโดย eIF2 kinase GCN2 ธรรมชาติ 436, 1166–1173 (2548).